

Kosttilskudd av arsen induserer oksidativt stress ved å undertrykke kjernefysisk faktor erytroid 2-relatert faktor 2 i leveren og nyrene til verpehøns
Mar 28, 2022
Ta kontakt med:joanna.jia@wecistanche.com/ WhatsApp: 008618081934791
ABSTRAKT
Denne studien undersøkte effekten av kosttilskudd av arsen på verpeytelse, eggkvalitet, lever- og nyrehistopatologi, og oksidativt stress i leveren ognyrene til verpehøns. Videre ble den kjernefysiske faktor erytroid {{0}}relatert faktor 2 (Nrf2)-Kelch-lignende ECH-assosiert protein 1(Keap1) banen utforsket for å avsløre den molekylære mekanismen til stresset. Fem hundre og tolv 40-uker gamle Hyline White verpehøner ble tilfeldig fordelt på 4 grupper med 8 binger per gruppe og 16 høner per bås. Dosene av arsen som ble administrert til de 4 gruppene var 0.95, 20.78, 40.67 og 60,25 mg/kg. Resultatene viste at kosttilskudd av arsen reduserte produksjonen av høne-dag egg signifikant (P, 0,05), gjennomsnittlig eggvekt (P, 0,05), Haugh-enheter (P, 0,05), albuminhøyde (P, 0,05) og eggeskallstyrke (P, 0,05). Kosttilskudd av arsen induserte også akkumulering av arsen og histopatologiske skader i leveren ognyre. I samsvar med kosttilskudd av arsen økte serumalaninaminotransferase (P, {{0}}.05), aspartataminotransferase (P, 0) signifikant.05) , ureanitrogen i blodet (P, {{10}}.05), og urinsyre (P, 0.05) nivåer. Etter arseneksponering var aktivitetene til superoksiddismutase (SOD) (P , 0,05), katalase (P , 0,01), glutationreduktase (P, 0,05), glutationperoksidase (P, 0,05) og glutationinnhold (P, 0,05) signifikant redusert, mens malondialdehydnivået var signifikant økt (P, 0,05) i lever og nyre. Positive korrelasjoner forekom mellom antioksidantenzymaktiviteter og antioksidantenzymgenekspresjon i lever og nyre, bortsett fra renal mangansuperoksiddismutase-genekspresjon og SOD-aktivitet. I tillegg var hepatisk og nyre Nrf2 mRNA-ekspresjon positivt korrelert med antioksidant-genekspresjon og negativt korrelert med Keap1 mRNA-ekspresjon. Oppsummert induserte kosttilskudd av arsen oksidativt stress ved å undertrykke Nrf2-Keap1-banen i leveren og nyrene til verpehøns.
Nøkkelord:arsen, verpehøne, Nrf2-Keap1 pathway, oksidativt stress, nyrer
INTRODUKSJON
De siste årene har det vist seg at miljøfarer forekommer i økende konsentrasjoner. Arsen er et svært metalloid giftig stoff, selv i svært lav konsentrasjon i fjørfefôr. Dens fysiologiske rolle i fjærfe er godt definert, da den er nødvendig for syntesen av metioninmetabolitter inkludert cystein. De anbefalte konsentrasjonene av arsen i fjørfefôr er mellom {{0}},012 og 0,050 mg/kg (Balo s et al., 2019). En tidligere undersøkelse viste imidlertid at arsenkonsentrasjonene i fjørfefôr sannsynligvis er høyere enn toleransenivåene til dyr når fjørfefôret inneholder tang, kobber(III)karbonat, kobber(II)sulfatpentahydrat, dikobberkloridtrihydroksid eller jern(II)karbonat (Adamse et al.), 2017. . Kazi et al. (2013) rapporterte at det er stor mulighet for at arsen i fjørfefôr påvirker helsen til slaktekyllinger. De for store mengder arsen i fjørfefôr og dets toksikologiske effekter på fjørfe er fortsatt alvorlige problemer. Når overflødig arsen kommer inn i et dyr, kan det indusere en rekke uønskede helseeffekter, som immunotoksisitet, respiratorisk toksisitet, kardiovaskulær toksisitet, levertoksisitet, levertoksisitet, nefrotoksisitet, nevrovirulens, reproduksjonstoksisitet og genotoksisitet. De toksikologiske effektene av arsen på viscerale organer er først og fremst dokumentert i pattedyrstudier, noe som tyder på at arsen utgjør en risiko for lever- og nyrefunksjoner (Waalkes et al., 2004; Mazumder, 2005; Zheng et al., 2014). Likevel er de toksikologiske effektene av arseneksponering i kosten på leveren og nyrene til verpehøns fortsatt uklare. Toksisiteten til arsen hos dyr er nært knyttet til oksidativt stress, som forstyrrer pro/antioksidantbalansen (Flora, 2011). Når arsen kommer inn i en celle, binder det seg til intracellulært glutation (GSH) eller oksiderer det, noe som fører til frie radikaler. Som vi vet, kan cytobeskyttende gener reguleres av en rekke intracellulære transkripsjonsfaktorer, inkludert nukleær faktor erytroid 2-relatert faktor 2 (Nrf2), aktivatorprotein 1 og nukleær faktor kappa-B (Kwak et al., 2001) ). Transkripsjonsfaktoren Nrf2 er et viktig molekyl som regulerer stressnivået i cellene. Under rolige forhold interagerer Nrf2 med Kelch-lignende ECH-assosiert protein 1 (Keap1), som for det meste er lokalisert i cytoplasmaet. Når oksidativt stress utløses, translokerer Nrf2 fra cytoplasmaet til kjernen etter å ha separert fra Keap1-molekylet og aktiverer deretter uttrykkene til cytobeskyttende gener (Motohashi og Yamamoto, 2004). Deretter regulerer cytobeskyttende gener aktivitetene til nedstrøms antioksidantenzymer, inkludert superoksiddismutase (SOD), glutationreduktase (GR), glutationperoksidase (GSH-Px) og katalase (CAT). En tidligere studie har vist at transkripsjonsfaktoren Nrf2 deltar i arsenindusert stress hos pattedyr (Sinha et al., 2013). De nøyaktige effektene av arseneksponering på oksidativt stresseffekter hos verpehøner forblir imidlertid unnvikende. I denne studien undersøkte vi effekten av kosttilskudd av arsen på verpeytelse, eggkvalitet, biokjemiske serumindekser, lever- og nyrehistopatologiske endringer og oksidativt stress hos verpehøner. Videre ble Nrf2-Keap1-banen utforsket for å identifisere den molekylære mekanismen i leveren ognyrerav verpehøner. Denne studien gir noen innsikt i den biologiske teorien om kosttilskudd overskudd av arsen toksisitet i leveren ognyreav verpehøner.

cistanche reddittillindre nyresmerter
MATERIALER OG METODER
Denne studien ble godkjent av Institutional Animal Care and Use Committee. Alle eksperimentelle prosedyrer utført på dyr ble implementert i samsvar med Chinese Association for Laboratory Animal Sciences.
Dyr, dietter og eksperimentell design
Fem hundre og tolv {{0}}uker gamle Hyline White verpehøner med lignende kroppsforhold ble tilfeldig valgt og delt inn i 4 grupper. Hver gruppe inneholdt 8 replikater av 16 fugler. Arsen ble tilsatt til basal mais-bønne-dietten i 4 forskjellige konsentrasjoner (0, 20, 40 og 60 mg/kg; i form av arsanilsyre) (tilleggstabell 1). Konsentrasjonene av arsen i fôret ble målt ved hydridgenerering atomabsorpsjonsspektrometri i henhold til tidligere metodikk (Dos Passos et al., 2012). De faktiske konsentrasjonene av arsen i de 4 gruppene var 0,95, 20,78, 40,67 og 60,25 mg/kg. Fuglene ble holdt i bur (60 ! 50 ! 50 cm3) utstyrt med 1 fôr og 2 brystvorter, og 2 høner ble holdt per bur. Gjennom hele forsøksperioden hadde hønene fri tilgang til fôr og drikke. Hele eksperimentet varte i 10 uker, inkludert en 1-ukers justeringsperiode og en 9-ukes formell eksperimentell periode.
Leggingsytelse og eggkvalitet
Gjennom hele forsøksperioden ble leggingsytelsesindekser registrert daglig, inkludert fôrforbruk, høne-dag eggproduksjon og eggvekt (EW). Bestemmelser av fôropptak og EW i hver gruppe ble utført ved bruk av en sensitiv vektskala (XS2002S, Mettler Toledo, Zürich, Sveits). Fôromsetningsforhold (FCR) ble beregnet etter følgende formel: FCR 5 fôropptak i gram/eggmasse i gram. Totalt 40 egg fra hver gruppe ble tilfeldig samlet for å måle eggkvalitetsparametere innen 24 timer etter egglegging ved slutten av eksperimentet. Eggene ble veid ved hjelp av en sensitiv vekt (XS2002S, Mettler Toledo). Deretter ble Haugh-enhet, albuminhøyde, eggeplommefarge og eggeskallstyrke bestemt av en digital eggetester (DET6000, Nabel Co. Ltd., Kyoto, Japan). Eggeskalltykkelsen med den indre membranen ble bestemt ved det skarpe, midtre og stumpe området av egget ved hjelp av et måleurmikrometer(547-350, Mitutoyo, Kawasaki, Japan), og gjennomsnittsverdiene ble brukt for den statistiske analysen.
Samling av prøver
Etter oppdrettseksperimentet ble 32 fugler fra hver gruppe tilfeldig valgt og avlivet ved å kutte av halsårene. Blodprøver ble samlet i sterile sentrifugerør og umiddelbart transportert til laboratoriet for måling av serum biokjemiske indekser. Deretter ble fuglene dissekert, og leveren ognyrerble fjernet fra bukhulen. Leveren ognyreprøvene ble kuttet i 4 deler. En del ble umiddelbart fikset i 4 prosent paraformaldehyd for histopatologisk undersøkelse. De andre 3 delene ble umiddelbart lagret i flytende nitrogen for videre bestemmelse av oksidativt stressparametere, arsenavsetning og genuttrykk.
Arsenavsetningsanalyse
Etter måling av eggkvalitet ble plommen separert fra albumet. Akkumulering av arsen i albumen og eggeplommen ble målt ved hydridgenerering atomabsorpsjonsspektrometri i henhold til tidligere metodikk (Dos Passos et al., 2012). Opphopning av arsen i hele egget ble beregnet ved å summere arseninnholdet i albumin og eggeplommen. På lignende måte ble hydridgenererende atomabsorpsjonsspektrometri brukt for å bestemme akkumuleringen av arsen i leveren ognyre til verpehøner(Dos Passos et al., 2012).
Bestemmelse av serum biokjemiske indekser
Totale nivåer av protein, albumin, globulin, alaninaminotransferase (ALT) og aspartataminotransferase (AST) er viktige indekser for å evaluere leverfunksjonen. Disse parameterne ble målt ved bruk av passende analysesett (Nanjing Jiancheng Bioengineering Institute, Nanjing, Kina) i samsvar med produsentens instruksjoner. Nitrogen av urea i blodet (BUN), urinsyre (UA) og kreatinin (CT) nivåer er viktige indekser for å evaluere nyrefunksjonen og ble bestemt ved bruk av deteksjonssett (Nanjing Jiancheng Bioengineering Institute).

Histopatologiske endringer
Lever- og nyrevev fiksert i 4 prosent paraformaldehyd ble dehydrert i 70, 80, 90, 95 og 100 prosent etanol og til slutt innebygd i parafin. Vevet ble skåret i seksjoner med 6- mm tykkelse og deretter farget med hematoksylin og eosin. Deretter observasjoner av histopatologiske endringer i leveren ognyrevev ble utført av en patolog under et optisk mikroskop (Olympus, Melville, NY).
Lipidperoksidasjon (LPO) og antioksidantenzymaktivitetsanalyser
Aktivitetene til SOD, CAT, GR og GSH-Px, og innholdet av malondialdehyd (MDA) og GSH i leveren og nyrene ble bestemt av passende analysesett (Nanjing Jiancheng Bioengineering Institute). Kort fortalt ble MDA-innholdet målt ved en spektrofotometrisk metode basert på reaksjonen mellom tiobarbitursyre og MDA (Janero, 1990). GR-aktivitet og GSH-innhold ble bestemt ved å bruke 5,5- dithiobis(2-nitrobenzoic acid) (Carlberg og Mannervik, 1985; Abegg et al., 2012). SOD-aktivitet ble bestemt i henhold til den inhiberende reaksjonen mellom nitroblåttetrazoliumreduksjon og xantinoksidase. CAT-aktivitet ble bestemt basert på dannelsen av et stabilt hydrogenperoksid-ammoniummolybdatkompleks (Aebi, 1984). GSH-Px-aktiviteten ble bestemt ved å evaluere reduksjonen av t-butylhydroperoksid (Wheeler et al., 1990).
Total RNA-isolering og sanntids kvantitativ PCR
Totalt RNA ble isolert fra lever- og nyrevev med Trizol RNAiso Kit (Invitrogen, Carlsbad, CA) etter produsentens instruksjoner. RNA-prøvene ble revers transkribert til cDNA ved bruk av PrimeScript RT Reagent Kit (TaKaRa, Dalian, Kina). Forover- og reversprimerne for mangansuperoksiddismutase (MnSOD), kobber-sinksuperoksiddismutase (CuZnSOD), CAT, GR, GSH-Px, Nrf2, Keap1 og husholdningsgenet (b-aktin) er vist i tilleggstabell 2. Genoverflod ble målt med et StepOnePlus sanntids PCR-system (ABI 7500, Applied Biosystems, Foster City, CA). Sykkelforholdene var 95 C i 30 s etterfulgt av 35 sykluser med 95 C i 5 s, 59 C i 10 s og 72 C i 30 s. Den foldede forskjellen i mRNA-ekspresjon ble målt ved å bruke den relative kvantifiseringsmetoden ved bruk av sanntids PCR-effektivitet og normalisert til nivået av b-aktin, for å sammenligne de relative CT-endringene blant alle grupper (Livak og Schmittgen, 2001).
Statistiske analyser
Alle data er uttrykt som gjennomsnittlig 6 SE. Statistisk analyse ble utført ved enveis ANOVA ved bruk av SPSS versjon 20.0 (SPSS Inc., Chicago, IL). Når forskjellene mellom gruppene var signifikante (indikert med P, 0.05), ble gjennomsnittene sammenlignet med Tukeys ærlig signifikante forskjell for post hoc multiple sammenligninger. Pearson-korrelasjoner ble analysert ved bivariat korrelasjonsanalyse (SPSS versjon 20.0, SPSS Inc.). Signifikans- og korrelasjonskoeffisientene er representert som henholdsvis "p" og "r".
RESULTATER
Leggingsytelse og eggkvalitet Sammenlignet med de i {{0}}.95 mg/kg arsen-gruppen, var produksjonen av høne-dag egg og EW signifikant redusert i 60.25 mg/ kg arsengruppe (P, 0.05). Imidlertid påvirket ikke arsen i kosten fôropptak eller FCR (tabell 1). Sammenlignet med den i {{20}},95 mg/kg arsen-gruppen, ble Haugh-enheten signifikant redusert i 40,67 mg/kg (P, 0,05) og 60,25 mg /kg (P, 0,05) arsengrupper. Videre ble både albuminhøyde og eggeskallstyrke signifikant redusert i 20,78 mg/kg arsengruppen sammenlignet med 0,95 mg/kg arsengruppen (P, 0,05), platået i 40,67 mg/kg arsengruppen, og kraftig redusert i 60,25 mg/kg arsengruppe (P, 0,05). Kosttilskudd arsen påvirket ikke eggeplommens farge eller eggeskalltykkelse (tabell 1)
Deponering av arsenikk
Avsetningen av arsen i albumet (P, {{0}}.05), eggeplommen (P, 0.05) og hele egget (P, 0.05) økte signifikant ettersom dosen av diettarsen økte fra 0,95 til 60,25 mg/kg (tabell 2). Tilsvarende, ettersom dosen av arsenikk i kosten økte fra 0,95 til 60,25 mg/kg, økte avsetningen av arsen i leveren (P, 0,05) og nyrene (P, 0,05) signifikant (tabell 2).

Korrelasjonsanalyse mellom eggkvalitet og avsetning av arsen i egget
Avsetningen av arsen i albumet var negativt korrelert med Haugh-enheten (r {{0}}.622, P, 0.{{10}}1), albumin høyde (r 5 20.878, P, 0.01), og eggeskallstyrke (r 5 20.897, P, 0.{{ 30}}1). I mellomtiden var avsetningen av arsen i eggeplommen også negativt relatert til Haugh-enheten (r 5 20.654, P, 0.01), albuminhøyde (r 5 20.893, P, 0.01) og eggeskallstyrke (r 5 20.902, P, 0.01). Tilsvarende ble det funnet negative sammenhenger mellom avsetningen av arsen i hele egget og Haugh-enheten (r 5 20.640, P, 0.01), albuminhøyde (r 5 20.888, P, 0.01) , og eggeskallstyrke (r 5 20.902, P, 0.01) (tabell 3)
Serum biokjemiske indekser
Sammenlignet med de i {{0}}.95 mg/kg arsen-gruppen, var ALAT-nivåene signifikant økt i 20,78 mg/kg (P , 0).{ {16}}5), 40,67 mg/kg (P , 0,05) og 60,25 mg/kg (P , 0,05) arsengrupper. I mellomtiden var AST-nivåene i 60,25 mg/kg arsengruppen signifikant økt sammenlignet med de i 0,95 mg/kg arsengruppen (P, 0,05). Kostholdsarsen påvirket ikke totale protein- eller albuminnivåer i serum (tabell 4).
Sammenlignet med de i {{0}},95 mg/kg arsen-gruppen, var både BUN- og UA-nivåene signifikant økt i 60,25 mg/kg arsen-gruppen (P, 0,05), mens arseneksponeringen i kosten ikke gjorde det. påvirke CT-nivået i serumet (tabell 4).
Histopatologiske endringer
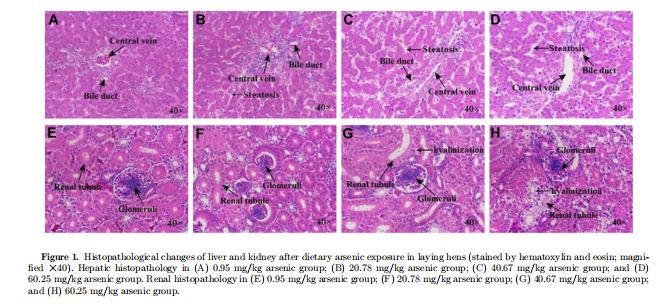
Utseendet til levervev var normalt og uendret i {{0}},95 mg/kg arsen-gruppen. Etter hvert som dosen av diettarsen økte fra 20,78 til 60,25 mg/kg, ble imidlertid proliferasjonen av gallegangen, hepatocyttsteatose og deformasjon av sentralvenen mer alvorlig (figur 1A–1D). Utseendet til nyrevev var normalt og uendret i 0,95 mg/kg arsen-gruppen. Imidlertid var det alvorlig glomerulær krymping i 20,78 mg/kg arsengruppen sammenlignet med 0,95 mg/kg arsengruppen. Etter hvert som dosen av diettarsen økte fra 40,67 til 60,25 mg/kg, ble utvidelse av nyretubuli, tubulær fifibrose og hyalinisering mer alvorlig (figur 1E–1H).

Biomarkører for oksidativt stress
Sammenlignet med de i {{0}}.95 mg/kg arsen-gruppen, var MDA-nivåene i leveren betydelig økt i 60.25 mg/kg arsen-gruppen (P , {{12} }.05), og MDA-nivåene i nyrene ble signifikant økt i 20,78 mg/kg (P , 0,05), 40,67 mg/kg (P , 0,05) og 60,25 mg/kg (P , 0,05) arsen grupper (Figur 2A). GSH-nivåer i leveren ognyresignifikant redusert i 20,78 mg/kg arsen-gruppen sammenlignet med de i 0.95 mg/kg arsen-gruppen (P, 0.05) , og platået i gruppene 40.67 og 60.25 mg/kg arsen (Figur 2B). Hepatisk SOD-aktivitet ble signifikant redusert i 40,67 mg/kg (P, 0,05) og 60,25 mg/kg (P, 0,05) arsen-gruppene sammenlignet med 0,95 mg/kg arsen-gruppen. Renal SOD-aktivitet ble signifikant redusert i 20,78 mg/kg arsengruppen sammenlignet med 0,95 mg/kg arsengruppen (P, 0,05) og platået i 40,67 og 60,25 mg/kg arsengruppene (Figur 2C). CAT aktivitet i leveren ognyresignifikant redusert ettersom dosen av diettarsen økte fra {{0}},95 til 60,25 mg/kg (P, 0.05, figur 2D). Sammenlignet med den i 0.95 mg/kg arsengruppen, var GR-aktiviteten i leveren og nyrene signifikant redusert i 60.25 mg/kg arsengruppen (P, 0,05, figur 2E ). I tillegg, sammenlignet med 0,95 mg/kg arsen-gruppen, ble GSH-Px-aktiviteten i leveren signifikant redusert i 60,25 mg/kg arsen-gruppen (P, 0,05), og nyre-GSH Px-aktiviteten ble kraftig redusert i 20,78 mg/kg arsen-gruppen. (P, 0,05) og platået i gruppene 40,67 og 60,25 mg/kg arsen (Figur 2F).

Genuttrykk av antioksidantenzymer, Nrf2 og Keap1 molekyler
Hepatisk CuZnSOD-genuttrykk ble signifikant redusert i 20,78 mg/kg arsengruppen sammenlignet med 0.95 mg/kg arsengruppen (P, 0.{{16} }5) og platået i gruppene 40.67 og 60.25 mg/kg arsen. Renal CuZnSOD-genekspresjon ble signifikant redusert i 40,67 mg/kg (P , 0.05) og 60,25 mg/kg (P , 0.05) arsengrupper sammenlignet med 0.95 mg/kg arsengruppe (Figur 3A). Sammenlignet med 0.95 mg/kg arsen-gruppen, var hepatisk MnSOD-genekspresjon signifikant redusert i 20,78 mg/kg arsen-gruppen (P, 0).{{73 }}5) og platået i gruppene 4{{80}}.67 og 60.25 mg/kg arsen. Renal MnSOD-genuttrykk var ikke signifikant forskjellig blant gruppene (figur 3B). Hepatisk CAT-genekspresjon ble signifikant redusert i 20,78 mg/kg arsen-gruppen sammenlignet med {{105}}.95 mg/kg arsen-gruppen (P, 0,05) og platået i gruppene 40,67 og 60,25 mg/kg arsen. Renal CAT-genekspresjon ble signifikant redusert i 20,78 mg/kg arsengruppen sammenlignet med 0,95 mg/kg arsengruppen (P, 0,05) og platået i 40,67 mg/kg arsengruppen, og ble kraftig redusert i 60,25 mg/kg arsengruppe sammenlignet med 0,95 mg/kg arsengruppe (P, 0,05, figur 3C). GR-genekspresjon i lever og nyre ble signifikant redusert i 20,78 mg/kg arsengruppen sammenlignet med 0,95 mg/kg arsengruppen (P, 0,05) og platået i 40,67 og 60,25 mg/kg arsengruppene (Figur 3D). I tillegg reduserte hepatisk GSH-Px-genekspresjon signifikant ettersom dosen av diettarsen økte fra 0,95 til 40,67 mg/kg (P, 0,05) og deretter platået i 60,25 mg/kg arsengruppen. Renal GSH-Px-genekspresjon ble signifikant redusert i 20,78 mg/kg arsengruppen sammenlignet med 0,95 mg/kg arsengruppen (P, 0,05) og ble platået i 40,67 og 60,25 mg/kg arsengruppene (Figur 3E). Nrf2-genekspresjon i lever og nyre ble signifikant redusert i 20,78 mg/kg arsengruppen sammenlignet med 0,95 mg/kg arsengruppen (P, 0,05) og platået i 40,67 og 60,25 mg/kg arsengruppene (figur 4A og 4C) ). Derimot ble Keap1-genekspresjonen i lever og nyre kraftig økt i 20,78 mg/kg arsengruppen sammenlignet med 0,95 mg/kg arsengruppen (P, 0,05) og platået i 40,67 og 60,25 mg/kg arsengruppene (figurer) 4B og 4D).

Korrelasjonsanalyser relatert til Nrf2- Keap1 Pathway
Genekspresjonen til CuZnSOD (lever, r {{0}}.613, P , 0.01;nyre, r {{0}}.687, P , 0.{{10}}1), CAT (lever, r 5 0.738, P , 0.01; nyre, r 5 0.903, P , 0.01), GR (lever, r 5 0.477, P , 0.05; nyre, r 5 0.485, P , 0.05), og GSH-Px (lever, r 5 0.450, P , 0.05; nyre , r 5 0.767, P , 0.01) i leveren og nyrene, og det patiske MnSOD-genuttrykket (r 5 0.707, P , 0.01) var positivt korrelert med aktivitetene til deres korresponderende antioksidant enzymer. Videre var Nrf2 genuttrykk positivt korrelert med genuttrykkene til CuZnSOD (lever, r 5 0.756, P, 0.01;nyre, r {{0}}.736, P , 0.01), CAT (lever, r 5 0.893, P , 0.01;nyre, r {{0}}.740, P , {{10}}.01), GR (lever, r 5 0 .837, P , 0,01; nyre, r 5 0.915, P , 0.01), og GSH-Px (lever, r 5 0.822, P , 0.01; nyre, r {{17} }.722, P , 0,01) i leveren ognyre, og hepatisk MnSOD-genekspresjon (r {{0}}.720, P , 0.01). Det var en negativ korrelasjon mellom Nrf2 og Keap1 mRNA-uttrykk (lever, r 5 20.746, P , 0.01;nyre, r {{0}}.771, P , 0.01) i leveren og nyrene. I tillegg var det ingen korrelasjon mellom MnSOD-genekspresjon og SOD-enzymatisk aktivitet, eller Nrf2 mRNA-ekspresjon inyrene til verpehøns(Tabell 5).

DISKUSJON
Arsen er et allestedsnærværende og giftig metalloid i naturen. Det induserer flere toksisiteter hos mennesker og dyr, inkludert hepatotoksisitet, nefrotoksisitet, nevrovirulens, immunotoksisitet, kardiovaskulær toksisitet, levertoksisitet og reproduksjonstoksisitet (Mandal og Suzuki, 2002). Arsen retter seg mest robust mot reproduksjonssystemet til dyr. Tidligere studier har vist at eksponering for roxarson i kosten forstyrrer leggingshastigheten og eggproduksjonen (Chiou et al., 1999; Zhang et al., 2017). I denne studien reduserte kosttilskudd av arsen leggingsytelsen betydelig, inkludert eggproduksjon og EW. Tidligere studier har funnet at kosttilskudd av arsen induserer akkumulering av arsen i egg og reduserer eggkvaliteten (Chiou et al., 1998; Zhang et al., 2017). I denne studien reduserte kosttilskudd av arsen i betydelig grad Haugh-enheten, albuminhøyden og eggeskallstyrken. Bortsett fra eggeplommens farge og eggeskalltykkelse, ble det funnet negative korrelasjoner mellom avsetning av arsen i egg og eggkvalitetsparametere. Dette antyder at Haugh-enhet, albuminhøyde og eggeskallstyrke kan bli påvirket av avsetningen av arsen i egget. Som vi vet er palisadelagtykkelsen i eggeskallet bestemmende for en eggeskalltykkelse (Ruiz og Lunam, 2000), mens pigmentavsetning bestemmer eggeplommens farge. Derfor spekulerte vi i at kosttilskudd av arsen ikke kan påvirke tykkelsen på palisadelaget av pigmentavsetning i eggene til verpehøns. Nye bevis indikerer at lever- og nyrelidelser er vanlige hos pattedyr etter arseneksponering (Liu og Waalkes, 2008; Huang et al., 2009). En tidligere studie viste at arseneksponering induserer histopatologiske lesjoner i leveren, inkludert vevsdesorientering, peliose og vakuolisering ledsaget av karyolyse, apoptose og nekrose av hepatocytter i Channa punctatus (Roy og Bhattacharya, 2006). I denne studien observerte vi alvorlige endringer i proliferasjonen av gallegangen, hepatocyttsteatose og deformasjon av den sentrale venen i leveren ettersom dosen av diettarsen økte fra 20,78 til 60,25 mg/kg. Roy og Bhattacharya (2006) fant også at arseneksponering induserer krymping av glomerulus, uregelmessigheter i nyretubuli og en økning i Bowmans plass. I denne undersøkelsen, som dosen av diett arsen

økt fra 20,78 til 60,25 mg/kg, nyrehistopatologiske forandringer var svært alvorlige, inkludert utvidelse av nyretubuli, glomerulær krymping og tubulær fifibrose og hyalinisering, noe som samsvarer med en tidligere studie (Roy og Bhattacharya, 2006). I følge tidligere rapporter har serum AST- og ALAT-nivåer vist seg å være surrogatmarkører for leverbetennelsesreaksjonen og fifibrose (Wang et al., 2008; Khattab et al., 2015). I denne studien antydet økninger i AST- og ALAT-nivåer i serum at den inflammatoriske responsen i leveren ble intensivert etter arseneksponering, noe som var i samsvar med de observerte histopatologiske endringene i leveren til verpehøner. Patel og Kalia (2013) fant også at arsenindusert levertoksisitet manifesteres av en økning i serum-ALAT- og AST-nivåer hos Wistar-rotter. Nyrefunksjonen overvåkes rutinemessig av BUN-, CT- og UA-nivåer i serumet. Vi fant at BUN- og UA-nivåene i serum ble betydelig økt, og serum-CT-nivået hadde en tendens til å øke etter kosttilskudd av arsen, noe som antyder atnyreskaderskyldes arseneksponering hos verpehøner, noe som stemmer overens med tidligere forskning (Liu et al., 2000). Det er godt etablert at vevsskade indusert av arseneksponering er nært knyttet til oksidativt stress (Jomova et al., 2011). Når oksidativt stress utløses, induserer intracellulære reaktive oksygenarter (ROS) LPO, som kan overvåkes av intracellulære MDA-nivåer (Storey, 1996). I denne studien ble MDA-nivåene i leveren og nyrene betydelig økt etter kosttilskudd av arsen, noe som antydet at det var en økning i LPO, noe som kan ha indikert oksidativ skade i leveren og leveren.nyrene til verpehøns.GSH spiller også en viktig rolle i reguleringen av intracellulært oksidativt stress (Finkel og Holbrook, 2000). Sammenlignet med de i 0,95 mg/kg arsen-gruppen, GSH-nivåer

ble signifikant redusert i gruppene som ble behandlet med høyere konsentrasjoner av arsen, noe som tyder på at arsen kan binde seg til GSH for å svekke antioksidantevnene til leveren ognyre.Flora et al. (1997) rapporterte at arseneksponering reduserer GSH-konsentrasjonen og produserer uttalte lesjoner i leveren ognyrerav rotter. I tillegg gir intracellulære antioksidantenzymatiske systemer beskyttende roller for å beskytte mot oksidativt stress, inkludert SOD, CAT, GR og GSH-Px (Finkel og Holbrook, 2000). I denne studien reduserte kosttilskudd av arsen aktivitetene til SOD, CAT, GR og GSH-Px signifikant i leveren og nyrene til verpehøns. Når antioksidantsystemer ikke kan nøytralisere overskuddet av intracellulær ROS, oppstår oksidativ skade på grunn av LPO, som igjen kan svekke aktivitetene til antioksidantenzymer. En tidligere studie rapporterte på samme måte at arsen induserer oksidativt stress i rottenyren (Sener et al., 2016). Antioksidantenzymer er proteiner og kan reguleres av gener på transkripsjonsnivå. I denne studien reduserte eksponering for arsen mRNA-ekspresjonen av CuZnSOD, CAT, GR og GSHPx betydelig. Videre var genuttrykket til CuZnSOD, CAT, GR og GSH-Px positivt korrelert med aktivitetene til antioksidantenzymer, noe som antyder at arseneksponering reduserte aktivitetene til antioksidantenzymer ved å hemme mRNA-ekspresjon. Tilsvarende rapporterte korrelasjoner mellom aktivitetene til antioksidantenzymer og genuttrykk i leveren og nyrene til verpehøns etter kvikksølveksponering. Imidlertid påvirket kosttilskudd av arsen ikke MnSOD-uttrykk inyre.Dette kan ha vært fordi SOD har flere isoenzymer, og aktiviteten påvirkes ikke av MnSOD-genet. Nrf2 spiller en viktig rolle i forsvarssystemet mot oksidativt stress. Under basale forhold binder Nrf2 seg til Keap1 i cytoplasmaet. Når det intracellulære ROS-nivået er høyt nok til å modifisere de reaktive tiolgruppene til Keap1, translokerer Nrf2 mye lettere inn i kjernen, hvor det irriterer den antioksidantresponsive

element og aktiverer deretter nedstrøms beskyttende gener (Sinha et al., 2013). I denne studien fant vi at arseneksponering betydelig reduserte Nrf2-genekspresjonen og uttrykket av nedstrøms antioksidantenzymer. Nedregulering av Nrf2- og nedstrøms antioksidantenzymgener etter arseneksponering antydet at arsen hemmet ekspresjonen av antioksidantenzymgener ved å undertrykke Nrf2-genekspresjonen i leveren ognyre. I tillegg var forbedringen av Keap1gene-ekspresjonen negativt korrelert med Nrf2- og antioksidantenzym-genekspresjonen, noe som antyder at oppregulering av cytoplasmatisk Keap1 fremmer Nrf2-translokasjon fra cytoplasmaet til kjernen (Kensler et al., 2007). En lignende studie rapporterte at den intracellulære Nrf2-Keap1-banen er inaktivert som respons på arseneksponering (Janasik et al., 2018). Likevel rapporterte en tidligere studie også at eksponering for arsen forbedrer Nrf2-Keap1-veien for å beskytte mot oksidativ skade (Massrieh et al., 2006). Disse funnene er ikke i strid med denne studien. I de tidlige stadiene av oksidativt stress kan de beskyttende effektene av Nrf2-Keap1 aktiveres for å forhindre oksidativt stress. Likevel kan det hende at Nrf2-Keap1-banen ikke motstår oksidative skader indusert av vedvarende eksponering for en høy dose arsen (Kensler et al., 2007). Deretter kan Nrf2- Keap1-banen bli hemmet, og intracellulær oksidativ skade eller til og med apoptose kan oppstå i leveren og nyrene til verpehøns. I lys av de nåværende resultatene gir denne studien noen nye bevis for hepatisk og renal antioksidantforsvar under arseneksponering hos verpehøner og belyser en sentral rolle for Nrf2-Keap1-banen i arsenindusert oksidativt stress for første gang . Oppsummert reduserte kosttilskudd av arsen leggingsytelsen og eggkvaliteten til verpehøns. Histopatologiske skader oppsto i leveren ognyreetter dietteksponering for arsen. I tillegg induserte dietteksponering for arsen oksidativt stress i leveren og nyrene ved å svekke Nrf2-Keap1-banen hos verpehøner.


