Kakaoflavanoler i kosthold forbedrer mitokondriell funksjon i skjelettmuskulaturen og modifiserer metabolismen i hele kroppen hos friske mus
Mar 14, 2022
for mer informasjon, kontakt:tina.xiang@wecistanche.com
Abstrakt: Mitokondriell dysfunksjon er mye rapportert i ulike sykdommer og bidrar til deres patogenes. Vi vurderte effekten avkakaoflavanolertilskudd på mitokondriell funksjon og hele metabolismen, og vi undersøkte om mitokondriell deacetylase sirtuin-3 (Sirt3) er involvert eller ikke. Vi undersøkte effekten av 15 dagers CF-tilskudd i villtype og Sirt3-/mus. Helkroppsmetabolisme ble vurdert ved indirekte kalorimetri, og en oral glukosetoleransetest ble utført for å vurdereglukosemetabolisme. Mitokondriell respirasjonsfunksjon ble vurdert i permeabiliserte fibre og pyridinnukleotidinnholdet (NAD pluss og NADH) ble kvantifisert. I villtypen modifiserte CF-tilskudd betydelig hele kroppens metabolisme ved å fremme karbohydratbruk og forbedret glukosetoleranse. CF-tilskudd induserte en betydelig økning av mitokondriell masse, mens betydelig kvalitativ tilpasning skjedde for å opprettholde H2O2-produksjon og cellulært oksidativt stress. CF-tilskudd induserte en betydelig økning i NAD pluss og NADH innhold. Alle effektene nevnt ovenfor ble sløvet i Sirt3-7mus. Samlet økte CF-tilskudd NAD-metabolismen som stimulerer sirtuin-metabolismen og forbedret mitokondriell funksjon, noe som sannsynligvis bidro til den observerte metabolismetilpasningen i hele kroppen, med en større evne til å bruke karbohydrater, i det minste delvis gjennom Sirt3.
Nøkkelord: kakaoflavanoler; NAD metabolisme; mitokondriell masse; glukosemetabolisme; skjelettmuskulatur

klikk for å få mer informasjon
1. Introduksjon
Mitokondrier er subcellulære organeller som er involvert i flere cellulære funksjoner, slik som energitransduksjon gjennom mitokondriell oksidativ fosforylering og i mitokondriell hydrogenperoksidproduksjon eller mitokondriemediert celledødsaktivering [1-3]. Nye bevis tyder på at mitokondriell dysfunksjon er involvert i mange patologier og spiller en sentral rolle i deres patogenese [4]. Vår gruppe rapporterte mitokondriell svekkelse hos pasienter med type 1 diabetes lenge før kliniske komplikasjoner [5]. Dessuten oppstår en reduksjon av mitokondriell oksidativ kapasitet med aldring selv hos friske mennesker [6]. Derfor er identifisering av strategier for å dempe disse dysfunksjonene eller forbedre mitokondriell masse muligheter for å forhindre, eller i det minste redusere, forekomsten av mange lidelser eller øke den aerobe kapasiteten til friske personer.
I denne sammenhengen er identifiseringen av trygge og naturlige forbindelser som forbedrer mitokondriefunksjon og metabolisme i hele kroppen med eller uten begrensede bivirkninger av interesse. Blant naturlige forbindelser,kakaoflavanoler(CF) anses som lovende molekyler ettersom forbruket deres har vist seg å påvirke kardiovaskulær helse, insulinresistens eller immunfunksjon positivt [7]. CF ble faktisk vist å forbedre glukosemetabolismen, og en kortvarig administrering av CF følges av en økning i insulinfølsomhet, selv hos glukoseintolerante hypertensive pasienter [8,9].
Blant flavanolene er (-)-epicatechin (EPI) den vanligste monomeren i CF, og EPI regnes som det viktigste biotilgjengelige og bioaktive molekylet til CF [10]. En konsistent mengde bevis indikerer at EPI-tilskudd forbedrer mitokondriell funksjon og/eller innhold i skjelettmuskulaturen [11]. EPI-tilskudd stimulerer flere veier som konvergerer på peroksisomproliferatoraktivert reseptor gamma-koaktivator 1-alfa(PGCl ) og store nukleære transkripsjonskomplekser. EPI forbedrer direkte nitrogenoksidgenerering, noe som stimulerer mitokondriell biogenese [11]. Samtidig stimuleres også sirtuinene 1 og 3 av EPI-tilskudd [11]. Bruken av proantocyanidiner, oligomereflavonoidersom inneholder EPI, ble vist å øke nivåene av intracellulære nikotinamid-adenindinukleotid (NAD pluss ) gjennom økningen av flere forløpere for NAD-biosyntese og oppregulere sirtuin-1 mRNA-nivåer i rottelever [12]. Sirtuin-familien (Sirt), en NAD-avhengig deacetylase, omfatter syv medlemmer som er forskjellige ved deres subcellulære distribusjon, substratspesifisitet og cellulære funksjoner [13]. Sirt1, et omfattende studert medlem av denne familien, stimulerer mitokondriell biogenese ved å fremme deacetylering av PGCl, og forbedrer derved dens transkripsjonelle aktivitet [14]. Sirte, en viktig metabolsk sensor, ble stimulert etter EPI-administrasjon [12,15-17]. Påvirkningen av EPI på andre sirtuiner har imidlertid ikke blitt utforsket. Vurderingen av EPI-effekten vil være spesielt interessant på sirtuiner lokalisert i mitokondriene (Sirt3, Sirt 4 og Sirt5), som er kjent for å modulere aktiviteten til Krebs-syklusen og respiratoriske kjedeenzymer [18]. Sirt3, som er sterkt uttrykt i vev med høy metabolsk omsetning og mitokondrieinnhold, er av spesiell interesse når det gjelder dens kritiske rolle i å opprettholde normal mitokondriefunksjon gjennom reversibel proteinlysindeacetylering [19-21]Dessuten spiller Sirt3 en viktig rolle i regulering av hele kroppens metabolisme [20. Sirt3 ble vist å være endret i skjelettmuskulaturen i modeller av type 1 og type 2 diabetes og kardiovaskulære sykdommer [22,23]. Videre ble det antydet at aktivering av Sirt3 kan representere en lovende terapeutisk strategi for å forbedre mitokondriell funksjon og metabolisme [23,24]. Derfor er det av interesse å avgjøre om Sirt3 ligger til grunn for en del av de gunstige effektene av CF-tilskudd på hele kroppens metabolisme og mitokondriefunksjon.
I denne studien brukte vi en integrerende tilnærming for å undersøke effekten av et 15-dagers CF-tilskudd hos mus. Vi antok at CF-tilskuddet ville: (i) modifisere hele kroppens metabolisme ogglukosemetabolisme, (ii) øke mitokondriell funksjon i oksidativ og glykolytisk muskel i permeabiliserte fibre, og (ii) øke NAD-metabolismen. Vi undersøkte også den antatte involveringen av Sirt3 i CF-indusert mitokondriell biogenese og metabolisme i hele kroppen. Våre hypoteser var at CFs effekter på hele kroppens metabolisme og mitokondriemasse ville bli sløvet i Sirt3-7mus.

2. Metoder
2.1. Dyr og kosthold
For denne studien ble 129S1/SvlmJ 10-uke gamle hannmus kjøpt fra Jackson Laboratories (Bar Harbor, ME, USA). For å avgjøre om sirtuiner er involvert i CF-administrasjon-indusert mitokondriell masse- og funksjonstilpasning, brukte vi også 10-uke gamle Sirt3 knock-out hannmus på samme stamme som villtype [25]. Sirt3/musene ble brukt til å utforske involveringen av Sirt3 i CF-indusert mitokondriell biogenese og hele kroppens metabolismetilpasninger. Musene ble holdt i et rom ved en regulert temperatur på 23-25 grader og kontrollert belysning (12-t lys og mørke sykluser). Dyrene hadde tilgang til gnagermat og vann fra springen ad libitum.
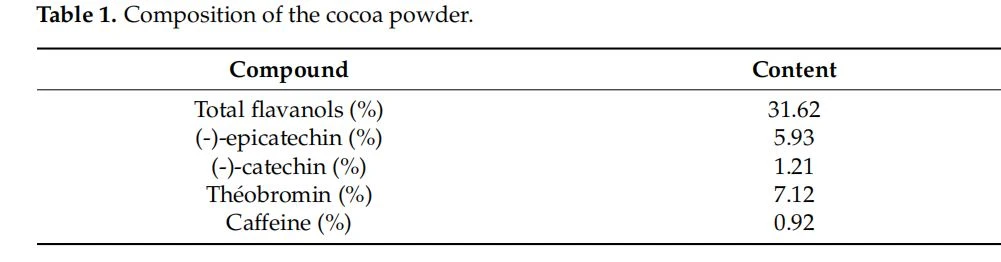
Etter minst en uke med tilvenning i dyreanlegget, mottok forsøksdyr CF-tilskudd gjennom oral sonde av et naturlig ekstrakt (302,1 mg/kg kroppsvekt to ganger daglig i 15 dager) resuspendert i en karboksymetylcellulose (Sigma-Aldrich, St. Louis) , Mo, USA). Sammensetningen av kakaopulveret er beskrevet i tabell 1 og er hentet fra Naturex (Quart de Poblet, Spania). Sammensetningen er etablert ved hjelp av høyytelses væskekromatografimetoden og 100 mg av ekstraktet tilsvarer et gjennomsnitt på 475 mg tørre kakaofrø. Kontrollmusene mottok en bærer bestående av lignende innhold av teobromin og koffein oppløst i karboksymetylcellulose ved oral sonde. Den daglige dosen ble bestemt i henhold til industriens veiledning som konverterer den menneskelige dosen til dyreekvivalente doser basert på kroppsoverflate, og vi multipliserte den menneskelige dosen med 12,3 [26]. Den orale sonden ble utført av en erfaren tekniker.
2.2. Vevssamling 1
24 timer etter den siste orale sonden ble ikke-fastende dyr bedøvet ved bruk av ketamin og xylazin (henholdsvis: 100 og 10 mg/kg). Innsamling av vev ble utført umiddelbart etter at anestesi var oppnådd. Soleus og den hvite delen av gastrocnemius ble skåret ut. Prøver ble enten umiddelbart frosset i flytende nitrogen og lagret ved -80 grad for påfølgende analyse eller brukt til å forberede skinnede muskelfibre.
2.3. Metabolske og fysiske aktivitetsvurderinger
Indirekte kalorimetri og spontan fysisk aktivitet ble målt ved hjelp av Comprehensive Laboratory Animal Monitoring System (CLAMS; Columbus Instruments, Columbus, OH, USA). Musene ble plassert individuelt i kamrene ved 28 grader, med lys fra 07t00 til 19t00 og ad libitum tilgang til gnagermat og vann fra springen. Mus ble akklimatisert til de metabolske burene i tre dager før dag én av datainnsamlingen. Datainnsamlingen ble utført på den femtende dagen for tilskudd. Oksygenforbruk (VO2), karbondioksidproduksjon (VCO2) og respirasjonsutvekslingsforhold (RER) ble målt med en luftstrøm på 0,5 L/min og en prøveluft på 0,4 L/ min. Prosent relativ kumulativ frekvens (PCRF) av RER ble bestemt over en 24-time periode som tidligere beskrevet av Riachi et al. (2004). Kort fortalt ble PCRF bestemt ved å legge til frekvensen for hvert datapunkt til den forrige inkrementsekvensen (fra 0,65 til 1,20 med en økning på 0,01) [27]. Den metabolske fleksibiliteten ble bestemt av Hill-hellingen(H-verdi) og 50. persentilen (EC50) av PRCF-kurven og ved å måle RER-amplituden over 24 timer (Riachi et al.2004). Generell fysisk aktivitet ble overvåket ved hjelp av et infrarødt stråledrevet sensorsystem som oppdaget x- og z-akseaktivitet. Både totale tellinger (hver gang en stråle brytes) og ambulerende tellinger (hver gang en ny stråle brytes) ble vurdert. En X-total (X-TOT)-telling registreres når dyret beveger seg horisontalt mer enn 0,5 tommer og er representativt for småskala, repeterende aktiviteter, som å klø og stelle. X-ambulatorisk telling (X-AMB) måler faktisk bevegelse ved å registrere en telling kun når dyret bryter en ny stråle. En Z-total (Z-TOT) telling registreres når 1,5 tommer vertikal bevegelse forekommer, dvs. oppdrett (Abreu-Vieira 2016). For å estimere karbohydrater og fettoksidasjonfra VO2 og VCO2 brukte vi ikke-protein respiratorisk kvotienttabell fra Péronnet og Massicotte tidligere brukt i mus [28,29].
2.4. Total kropps- og fettmasse
Total fettmasse og total mager masse ble bestemt i ikke-bedøvede mus ved kvantitativ resonansinterferensanalyse ved bruk av EchoMRI magnetisk resonansanalysator for hele kroppen (Echo Medical System, Houston, TX, USA). Total fettmasse representerte summen av alt fett i kroppen. Total mager masse inkluderte hovedsakelig muskler og indre organer. Skjelettmuskelmasse er kjent for å utgjøre den største delen av total mager masse.
2.5. Oral glukosetoleransetest (OGTT)
Glykemi ble målt ved å bruke en dråpe blod samlet fra halen med et glukometer (Accu-Chek Performa, Roche, Argentina). OGTT ble utført på mus som ble fastet i 5 til 6 timer. Målingen ble utført på siste dag med CF-tilskudd. Etter måling av basal glykemi (tid O), ble mus deretter injisert per os med en løsning av 20 prosent glukose i sterilt vann i en dose på 1,5 g glukose·kg kroppsvekt-1. Glykemi ble målt ved 15, 30, 60, 90 og 120 minutter etter injeksjon av glukoseløsningen. Det inkrementelle arealet av glukosekurven ble deretter beregnet som et mål på glukosetoleranse.
2.6.qRT-PCR-analyse
The forward (F) and reverse (R) primers of the selected genes used in this study are presented in Table 2. Total RNA was obtained from pulverized frozen white gastrocnemius muscle using Trizol reagent (Invitrogen Life Technologies, Rockville, MD, USA). The purity, integrity, and quantity of RNA were evaluated using a microplate reader (Synergy H1(Biotek Instruments, Winooski, Vermont). The sample was considered pure when the ratio OD260/OD280 was>1.8. cDNA ble syntetisert fra totalt RNA (2 μL) ved å bruke iScript revers transkripsjons supermix for RT-qPCR (Biorad, Hercules, CA, USA). Totale RT-produkter ble analysert ved kvantitativ polymerasekjedereaksjon (PCR) ved bruk av 2x Platinium SYBR Green qPCR SuperMix-UDG i henhold til produsentens spesifikasjoner (Invitrogen Lige Technologies, Burlington, Canada). Sykling ble oppnådd i en CFX96-sykler (Biorad, Hercules, California; forhold: 95 grader C i 10 minutter og 40 sykluser på 95 grader i 30 s, 55 grader i 45 s og 72 grader i 45 s). Ved slutten av hver kjøring ble fraværet av primer-dimer-dannelse og tilstedeværelsen av et unikt amplikon bekreftet ved bruk av smeltekurven. Terskelsyklus(Ct)-verdiene ble brukt etter 2-A△Ct-metoden for å analysere qPCR-data, med enten ß-Actin eller HPRT1 som husholdningsgen【30】. Kvantitative RT-PCR-verdier var relatert til de for kontrollgruppen, som ble satt til 1.
2.7. Enzymaktiviteter
Målingen av den spesifikke aktiviteten til elektrontransportkjedekomplekser og sitratsyntase ble utført spektrofotometrisk som tidligere beskrevet [31]. Pulveriserte frosne hvite gastrocnemius-muskler (~30 mg) ble homogenisert med en vibrerende mikroperle-homogenisator i 500 ul homogeniseringsbuffer (120 mM KCl, 20 mM HEPES, 2 mM MgCl2, 1 mM EGTA og 5 mg·mL-Iof BSA , pH 7,4) etterfulgt av tilsetning av 500 μL hypotonisk medium (25 mM kaliumfosfat og 5 mM MgCl, pH 7,2). Prøvene ble deretter underkastet tre runder av fryse-tine-syklusene i flytende nitrogen. Prøvene ble sentrifugert i 10 minutter ved 600 x g ved 4 grader, og supernatanten ble holdt på is til analysen. Proteininnholdet ble bestemt i supernatanten i tre eksemplarer ved bruk av et Pierce BCA Protein Assay Kit (Thermo Scientific, Rockford, IL, USA).
Aktiviteten til sitratsyntase (CS) ble bestemt spektrofotometrisk ved 412 nm etter reduksjon av 2 mM 5,5'-ditio-bis(2-nitrobenzosyre) i nærvær av 0.1 mM acetyl -CoA og 12 mM oksaleddiksyre i 200 mM Tris-buffer (pH 7,4). Den rotenonsensitive NADH-decylubiquinon oxidoreductase(complex I)-analysen ble utført ved 340 nm ved bruk av akseptor 2,3-dimetoksy-5-metyl-6-n-decyl-14-benzokinon ( 80 μM) og NADH som elektrondonor (200 μM) i 10 mM Tris-buffer (pH 8,0). Tilsetningen av 4μM rotenon ble brukt for å kvantifisere den rotenonsensitive aktiviteten. Aktiviteten til cytokromoksidasen (kompleks IV) ble utført ved 550 nm ved bruk av 10μM redusert cytokrom c som donor og 2,5 mM n-dodecyl-ß-maltosid for å permeabilisere begge mitokondrielle membraner i 100 mM kaliumfosfatbuffer.0pH.
Alle enzymanalysene ble bestemt i tre eksemplarer, og resultatene var relatert til de fra kontrollgruppen, som ble satt til 100.

2.8. Mitokondriell vurdering
Mitokondriell respirasjon og mitokondriell H2O2-produksjon ble studert in situ i saponin-permeabiliserte fibre ved bruk av hvite gastrocnemius- og soleus-muskler|1]. Kort fortalt ble fibre separert under kikkertmikroskopet i løsning A ved 4 grader (i mM:2,77 CaK2 EGTA,7,23 K, EGTA,6,56 MgCl2, 20 tauriner,0,5 DTT,5{ {50}} K-metansulfonater, 20 imidazoler, 5,7 Na2 ATP og 15 kreatinfosfat, pH 7,1) og permeabilisert i løsning A med 50 ug·mL-I saponin i 30 minutter ved 4 grader. Mitokondriell respirasjonsfunksjon ble bestemt i et oksymeter utstyrt med en Clark-type elektrode (Oxygraph, Hansatech Instruments, Glasgow). Kammeret ble fylt med 1 ml løsning B (i mM:2,77 CaK, EGTA, 7,23 K, EGTA, 6,56 MgCl,, 20 taurin, 0,5 DTT, 50 K-metansulfonater og 20 imidazoler, pH 7,1) og etter registrering baseline oksygeninnhold i kammeret, ble en bunt med 1-2 mg tørrvekt av permeabiliserte myofiber plassert i kammeret, som deretter ble lukket. Etter baseline-avlesninger ble følgende tilsetninger sekvensielt gjort: palmitoylkarnitin og malat (160 μM∶5 mM), glutamat (10 mM), succinat (25 mM), rotenon (0,5 μM(M) 1 μM, CP -A (8 uM), og N, N', N'-tetrametyl-p-fenylendiamin-dihydroklorid og askorbat (0,9:9 mM). Respirasjonen ble målt ved 23 grader under kontinuerlig omrøring. Ved slutten av hver test ble fibrene forsiktig fjernet fra den xylografiske cellen, blottet og tørket i minst 24 timer ved ~80C for å bestemme fibervekten. Ratene for O2-forbruk (JO2) ble uttrykt i nmol O2 min-1.(mg tørrvekt)-I. Alle målinger ble utført minst i duplikat.
Netto H2O2-frigjøring av respirerende mitokondrier ble målt i permeabiliserte fiberbunter med den fluorescerende sonden Amplex Red(20 μM∶eksitasjonsemisjon∶563-587 nm), som beskrevet tidligere [32]. Etter klargjøring av permeabiliserte fibre, prøver
bestemt for H2O2-målinger ble skylt tre ganger i buffer Z(i mM:110 K-Mes, 35 KCl,1 EGTA,5 K2HPO4, 3MgCl,6H2O og 0,5 mg:mL{ {14}} BSA, pH7,3 ved 4 grader). Fiberbunter ({{20}}.3-1,0 mg tørrvekt) ble inkubert ved 37 grader i en kvartsmikrokyvette med kontinuerlig magnetisk omrøring i 600 uL buffer Z (pH 7,3 ved 37C) supplert med 1,2 U·mL-I pepperrotperoksidase. Baseline fluorescensavlesninger ble tatt i fravær av eksogene respiratoriske substrater. Følgende tilsetninger ble deretter gjort sekvensielt: glutamat (5 mM), succinat (5 mM), rotenon (0,5 uM), ADP (10 mM) og antimycin-A (8 μM). Ved slutten av hver test ble fibrene fjernet forsiktig fra kyvetten, blottet og tørket for å bestemme fibervekten. H2O2-produksjonshastigheter ble uttrykt i AU·min-1.(mg tørrvekt)-I og per oksfos-kapasitet som tilsvarte maksimal mitokondriell respirasjon under fosforyleringstilstand. Alle målinger ble utført minst i duplikat.
Mitokondriell kalsiumretensjonskapasitet (CRC) ble vurdert i hvite gastrocnemius muskelspøkelsesfibre som tidligere beskrevet [33]. Kort fortalt ble fibre inkubert i en kvartsmikrokyvette under kontinuerlig omrøring i 600 μL CRC-buffer (i mM∶250 sukrose, 10 MOPS, 0,005 EGTA og 10P;-Tris, pH7,3). Fibrene ble deretter eksponert for en enkelt puls på 20 nM Ca2 pluss. Endringer i ekstramitokondriell kalsiumkonsentrasjon ble overvåket fluorometrisk ved bruk av kalsiumgrønn 5N (1 mM: eksitasjonsemisjon: 505-535 nm). Permeabilitetsovergangsporefølsomhet (PTP) ble vurdert ved å måle tiden som kreves for PTP-åpning, og CRC ble tatt som den totale mengden Ca' akkumulert av mitokondrier før frigjøring. Ved slutten av hver test ble fibre forsiktig fjernet fra kyvetten, blottet og tørket for å bestemme fibervekten. CRC-verdier ble uttrykt i nM Ca2 pluss per mg tørrvekt.
2.9. Western blot-analyse
Proteiner fra hvite gastrocnemius- og soleus-muskler ble fortynnet i Laemmli-buffer og separert på Mini-PROTEAN TGX flekkfrie 10 prosent forhåndsstøpte polyakrylamidgeler (Biorad); en intern standard ble lastet på hver gel. Elektroforetisk separasjon ble utført ved 200 V i 35 minutter i migrasjonsbuffer (25 mM TrisBase, 0.2 M glycin og 1 prosent SDS (p/v)). Stain-Free(SF)-teknologi inneholder en proprietær tri halo-forbindelse som reagerer med proteiner, noe som gjør dem detekterbare gjennom UV-eksponering. SF-avbildning ble utført med ChemiDoc MP Imager og Image Lab4.0.1-programvare (Biorad, Hercules, California, USA) med en 5-min. flekkaktiveringstid, og totale proteinmønstre ble derfor visualisert. Proteiner ble deretter overført på et 0,2 um nitrocelluloseark ved bruk av Trans-Blot Turbo Transfer System (Biorad). Kvaliteten på overføringen ble kontrollert av bildemembraner ved bruk av SF-teknologi. Etter overføringstrinnet ble karbonylproteinene derivatisert med dinitrofenylhydrazin fortynnet i 2N HCL og ble til slutt grundig vasket med metanol. Membranene ble blokkert med 5 prosent fettfri tørrmelk i Tris-bufret saltvann inneholdende Tween-20 (TBST:15 mM Tris/HCl, pH7,6,140 mM NaCl, og 0,05 prosent Tween-20) for 1 time ved romtemperatur. Membraner ble deretter inkubert ved 4 grader over natten eller 2 timer ved romtemperatur med følgende primære antistoffer: proteinkarbonyl primært antistoff (Anti-DNP;#STA-308, Cell Biolabs) og SOD2 (#Ab13533, Abcam). Etter tre 10 minutters vask i TBST, ble membraner sondert med sekundære antistoffer for proteinkarbonyl(HRP-konjugat;#STA-308, Cell Biolabs) og SOD2 (anti-kanin IgG-HRP-koblet;#7074, Cellesignalering) i blokkeringsløsning i 2 timer ved romtemperatur og ble til slutt grundig vasket med TBST. Fortynningen av primære og sekundære antistoffer ble optimalisert for hvert antistoff. Kjemiluminescensdeteksjon ble utført ved bruk av ECL Clarity (Biorad), og bildefangst ble gjort med ChemiDocMP. Alle bildene ble analysert ved hjelp av programvaren Image Lab 4.0.1. Normalisering av proteinsignalintensiteter ble utført etter kvantifisering av respektive totale proteinnivåer på SF-bilder, prøvekontroll og interne standarder.
2.10. NAD-måling
Totale NAD- og NADH-nivåer ble målt i homogenisert hvit gastrocnemius ved å bruke et kommersielt sett (#K337-100, Biovision, USA) og følge produsentens instruksjoner. Kort fortalt ble den totale samlingen av NAD (NADt= NADt og NADH) ekstrahert. For hver av de ekstraherte prøvene ble halvparten av prøven oppvarmet til 60 grader i 30 minutter for å dekomponere NADt mens NADH ble holdt intakt. Både NADt- og NADH-prøver ble blandet med NAD-syklusenzym, og absorbansen ble målt ved 450 nm. NADt og NADH ble kvantifisert ved å sammenligne med NADH standardkurve og normalisere til mg protein. Til slutt ble forholdet mellom NAD pluss (NADt-NADH) og NADH beregnet. Alle analysene ble utført i tre eksemplarer.
2.11. Statistikk
Data rapporteres som gjennomsnitt ± standardavvik (SD). Datanormalitet ble vurdert ved å bruke D'Agostino-Pearson normalitetstesten. Dataanalyse ble utført ved bruk av Studentens t-test og toveis ANOVA (gruppe og tid) for gjentatte målinger etterfulgt av Bonferronis post hoc-test ved bruk av Prism8.4.1 (GraphPad Software, San Diego, CA, USA). Et tosidig nivå på 5 prosent for type I-feil ble brukt.

3. Resultater
3.1. Kroppssammensetning og metabolisme i hele kroppen
Femten dager med CF-tilskudd, hos villtype(WT)mus, endret ikke kroppsvekten(p=0.091), mager masse(p=0.{{24} }73) og fettmasse vurdert ved EchoMRI (p=0.89;Figur 1A). O2-forbruksrater uttrykt per mager masse var betydelig høyere i den mørke syklusen (8±8 prosent , p=0.042), mens den forble lik i den lyse syklusen (p =0 .392; figur 1B.). Det var ingen endringer i lokomotorisk aktivitet (data ikke vist). CF-mus viste en signifikant økning i hele kroppens energiforbruk med 15±15 prosent (p =0.042;Figur 1C)og i matinntak (0,08±0,01 vs.0,11±0,01 g per mager kroppsvekt, henholdsvis CF-gruppe og WT, p=0.013, figur 1D).

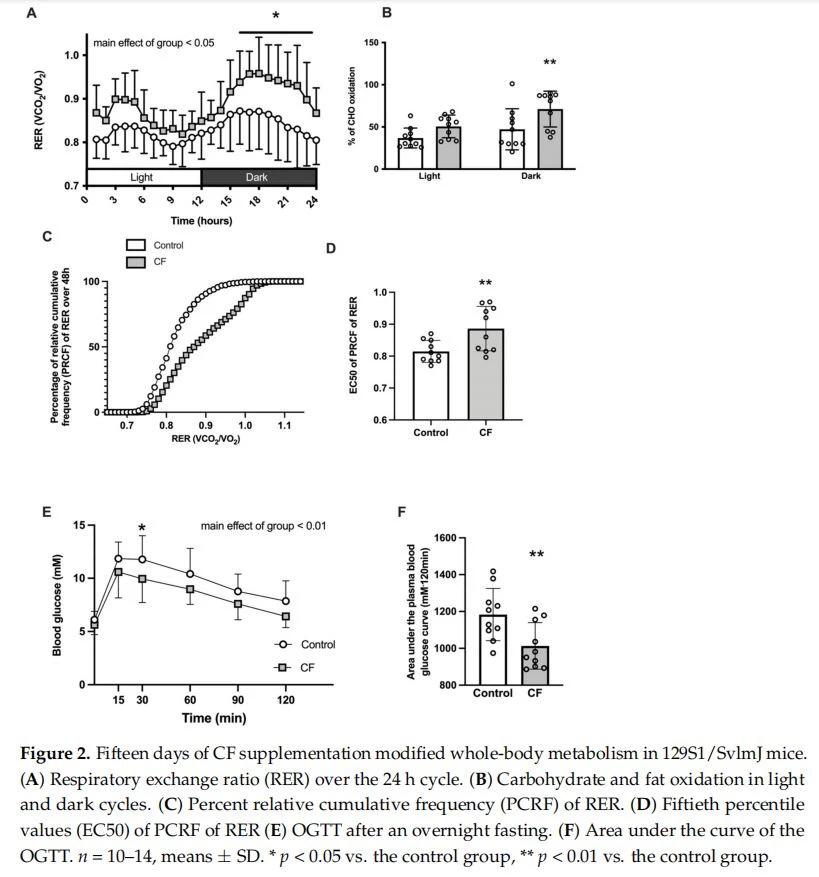
CF-tilskudd endret metabolismen i hele kroppen betydelig: hovedeffekten av høyere RER i CF-gruppen ble observert over 24 timer(p=0.023, figur 2A) og gjennomsnittlig RER over 12 timer var høyere i CF-gruppen i lyse og mørke sykluser( pluss 5±3 prosent ,p=0.0henholdsvis 35 og pluss 9±4 prosent , p=0.026). Dessuten fremmet CF-tilskudd bruk av karbohydrater (CHO) (51± 13 prosent av energiforbruket var avhengig av CHO-oksidasjon i CF-gruppen vs. 37 ±12 prosent i kontrollgruppen under lyssyklusen, p=0.108 og 71±21 prosent i CF-gruppen vs. 47±24 prosent i kontrollgruppen under mørkesyklusen, p=0.004; Figur 2B.). Når det uttrykkes i kJ, var det imidlertid ingen forskjell i CHO-oksidasjon eller fettsyreoksidasjon (CHO-oksidasjon: 3,7±1,4 kcal·d-1 i kontroll vs.4,4±1,7 kcal.mager kroppsmasse-1. d-1 i CF,p=0.33 og fettsyreoksidasjon: 2.3± 1.0 kcal·d-Iin kontroll vs.2.6±0.87 kcal.lean body mass-1.d{{ 50}}i CF,p=0.608). Analyse av PRCF av RER avslørte en økning av EC50-verdier i CF-gruppen (p=0,009; figur 2D) som betyr at CF induserer et skifte mot økt bruk av karbohydrater. En reduksjon av Hill-hellingen ble observert i CF-gruppen (H-verdier: 25,16±4,44 hos kontroller vs. 12,79±3,96 i CF-gruppen,p<0.001). moreover,="" the="" rer="" amplitude="" over="" 24h="" was="" increased="" by="" 31±="" 31%="" in="" the="" cf="" group="" (p="0.035)." cf="" supplementation="" improved="" glucose="" tolerance="" following="" oral="" glucose="" administration="" from="" unchanged="" baseline="" blood="" glucose="" levels="" after="" an="" overnight="" fast="" (figure="" 2e,p="0.003)." the="" area="" under="" the="" capillary="" blood="" glucose="" curve="" was="" lower="" in="" the="" cf="" group(1018±135="" vs.="" 1181±="" 170="" mm·120="" min,="" p="0.005;" figure="">
3.2. Mitokondriell bioenergi
Vi testet effekten av CF-tilskudd på energien til mitokondrier i den hvite gastrocnemius- og soleus-muskelen i WT-mus. Høyere mitokondriell respirasjon ved bruk av komplekse IV-substrater i de hvite gastrocnemius- og soleus-musklene ble observert (henholdsvis p=0.004 og p=0.028; figur 3A, B). Ingen modifikasjon av CII/CI og CIV/CI respirasjonsforhold ble observert (p =0.899 og p =0.701 for den hvite gastrocnemius og p=0.693 og p{{ 11}}.912 for henholdsvis soleusmusklene, data ikke vist). Dessuten ble kompleks-, I-, IV- og sitratsyntaseaktivitetene betydelig økt i den hvite gastrocnemius-muskelen (henholdsvis: pluss 31 ± 27 prosent ,p=0.004; pluss 28 ± 38 prosent ,p=0 .027; pluss 35±38 prosent ,p= 0.009; pluss 14±13 prosent ,p=0.040;Figur 3C). Mitokondrienes evne til å oksidere palmitoyl-karnitin har en tendens til å øke i den hvite gastrocnemius( pluss 24±12 prosent ,p =0.096; Figur 3D), mens det ikke ble observert noen forskjell i soleus (p =0.363). De relative ratene for palmitoyl-karnitin-stimulert respirasjon var uendret når uttrykt som funksjon av kompleks I respirasjon (62±11 i kontrollgruppen vs.64±20 i CF-gruppen i den hvite gastrocnemius og 70±18 vs.72±16 i soleus). Deretter undersøkte vi følsomheten for Ca pluss-indusert PTP-åpning i den hvite gastrocnemius. Som vist i figur 3E ble verken tiden til PTP-åpning eller Ca²retensjonskapasiteten modifisert etter CF-supplement (henholdsvis p=0.608 og p=0.943).

mRNA-vurdering av gener involvert i mitokondriell biogenese viste en 70 prosent oppregulering av NRF1 mRNA, mens ingen forskjell ble rapportert for PGCl, Tfam, CS, ND1, ND2, SDHa og Cox2 (tabell 3). Vi undersøkte, på noen få prøver, effekten av CF-tilskudd på mitokondrielle superkomplekser (figur S1, tilleggsmaterialer). Den densitometriske analysen antyder at CF-tilskudd økte det totale innholdet av superkomplekser uten kvalitativ tilpasning eller omorganisering. Faktisk ble respirasjonstettheten forbedret med 58 prosent ved bruk av kompleks I- og kompleksⅡ-prober og med 93 prosent ved bruk av kompleks I-probe. Tilsvarende var kompleks I- og kompleks III-innhold innebygd i superkomplekser høyere i CF-gruppen.

CF-tilskudd reduserer mitokondriell ROS-utslipp. Mens H2O2-utslippet forble uendret både i den hvite gastrocnemius og soleus når den ble uttrykt per tørrvekt (henholdsvis figur 4A, B), ble hastighetene redusert når de ble uttrykt per mitokondrieinnhold (figur 4C). En hovedpositiv effekt av CF-tilskudd ble observert under forskjellige tilstander i den hvite gastrocnemius (s<0.048; figure="" 4c).="" the="" mitochondrial="" h2o2="" emission="" was="" also="" significantly="" reduced="" when="" expressed="" peroxidative="" phosphorylation="" capacity="" assessed="" by="" state="" 4="" respiration="" using="" complex="" i+ii="" substrates="" by="" 26±13%="" in="" the="" white="" gastrocnemius="" (p="0.044)and" by="" 29±12%="" in="" the="" soleus(p="0.024;" figure="">

3.3. Oksidative stressmarkører i skjelettmuskulaturen
Det cellulære proteinoksidative stressnivået i WT-mus var upåvirket av CF-supplementering da celleinnholdet av SOD2 var likt i eksperimentelle og kontrollgruppene i den hvite gastrocnemius og soleus (figur 4E). Dessuten ble det ikke observert noen forskjell i proteinkarbonylering i den hvite gastrocnemius og soleus (figur 4F). I tillegg ble ingen forskjell i katalase og MnSod mRNA-ekspresjon observert etter CF-supplement (tabell 3).
3.4.NAD Metabolisme
Den totale samlingen av pyridinnukleotider økte etter CF-tilskudd med 36±33 prosent (p=0.012). Nærmere bestemt økte NAD- og NADH-innholdet i den hvite gastrocnemius (henholdsvis med 69±60 prosent ,p{{6 }}.026 og 29± 42 prosent ,p=0.017;Figur 5A,B)og NAD pluss /NADH-forholdet hadde en tendens til å øke i CF-gruppen (p =0.084).Nei signifikant effekt ble observert for Sirt3 mRNA (p=0.096), NMNAT mRNA (p=0.094), og Sirt1 mRNA(p =0.869; Tabell 3 ).

3.5. Helkropps- og cellulær metabolismerespons etter CF-tilskudd i Sirt3-/mus
Vi undersøkte effekten av CF-tilskudd hos Sirt{{0}}mus. Kroppssammensetning som vekt, mager masse og fettmasse var ikke forskjellig mellom CF- og kontrollgruppene (henholdsvis p= 0.52,p=0.66,p=0.45; Figur 6A). Tilsvarende var det daglige energiforbruket upåvirket av CF-tilskudd ({{10}}.38±0.{{40}}1 Kcal.lean body masse-1.dag-1 i kontrollene vs. 0.39 ± 0.01 kcal·lean body mass-1.day-1 i CF, p=0.502; figur 6B). RER var lik mellom begge gruppene i lys- og mørkesyklusen (p=0.301; Figur 6C), og substratoksidasjon ble ikke påvirket av CF-tilskudd (44 ± 17 prosent av energiforbruket var avhengig av CHO-oksidasjon i kontrollgruppe vs. 50 ± 11 prosent i CF-gruppen under den lyse fasen, p=0.209 og 65±19 prosent i kontrollgruppen vs. 77±21 prosent i CF-gruppen under den mørke fasen, p=0.395; figur 6D). Den metabolske fleksibiliteten vurdert ved RER-amplitude over 24 timer forble lik mellom de to gruppene (0,19± 0,05 i kontroll vs.0,20±0,03 i CF,p=0.604), mens PRCF-hellingen ble redusert i CF-gruppen (H-verdier:17,77±4,38 i kontroll vs.12,79±3,93 i CF,p=0.039).

Deretter sammenlignet vi effekten av CF-tilskudd på mitokondrielle enzymaktiviteter. CF-tilskudd klarte ikke å øke enzymaktiviteten til kompleks I,I,IV og CS i Sirt3-/mus som tidligere observert i WT (henholdsvis: p=0.623,p=0 .629,p=0.283, og p=0.791, figur 6E). Større enzymaktivitet av kompleks og IV ble observert i WT sammenlignet med Sirt3-7mus etter CF-tilskudd ( henholdsvis:p=0.027 og P=0.045)

4. Diskusjon
I denne studien gir vi en integrerende analyse av effekten av CF-inntak. Vi observerte at kronisk CF-inntak forbedret mitokondriell respirasjon og reduserte H2O2-produksjonen, vurdert i deres myofibermiljø, mens følsomheten for PTP-åpning var uendret. CF-inntak forbedret NAD-metabolismen, og støttet involveringen av sirtuin-veier på de observerte mitokondrielle tilpasningene. Vi observerte også metabolismemodifikasjoner i hele kroppen mot en større evne til å bruke karbohydrater som hovedsubstratet, noe som tyder på at mitokondrielle tilpasninger sannsynligvis bidro til den observerte metabolismetilpasningen i hele kroppen.
4.1. Metabolisme
Diettadministrasjon av kakaoflavanoler har blitt identifisert som en effektiv strategi for å lindre glukoseintoleranse, noe som gir muligheter for å lindre metabolske sykdommer [34]. Resultatene våre er i samsvar med tidligere studier som rapporterte økt glukosetoleranse etter inntak av flavanoler [35,36]. Mekanismene som er foreslått for denne effekten involverer en økning i translokasjonen av GLUT4 mot cellemembranen, en økning i fosforyleringen av AMPK og oppreguleringen av UCP-2 genuttrykk i skjelettmuskulaturen [8,37] . Dessuten var CF-inntak assosiert med forbedring av insulinfølsomhet hos mennesker [8]. Etter 15 dagers inntak av mørk sjokolade ble en reduksjon i homeostasemodellens vurdering av insulinresistensindeksen observert hos friske forsøkspersoner samtidig med en økning av den kvantitative insulinsensitivitetssjekkindeksen og insulinsensitivitetsindeksen [8]. Vi observerte også en samtidig økning i glukosetoleranse og metabolsk fleksibilitet hos WT-mus, som refererer til en organismes kapasitet til å tilpasse drivstoffoksidasjon til drivstofftilgjengelighet [38]. Interessant nok, mens nedsatt mitokondriell oksidativ kapasitet og relatert substratoksidasjon var assosiert med insulinresistens 39, økte utholdenhetstrening mitokondrielt innhold, insulinfølsomhet og metabolsk fleksibilitet [38]. Derfor er de nåværende resultatene spesifikke for CF-tilskudd og er ikke påvirket av spontan aktivitet.
Den positive effekten av CF på metabolsk fleksibilitet, så vel som økningen av mitokondriekompleksaktivitet, ble sløvet i Sirt3-7mus, noe som indikerer at de positive effektene av CF skjer i det minste delvis gjennom Sirt3. Disse resultatene støtter tidligere funn og den sentrale rollen til Sirt3 på metabolsk fleksibilitetsregulering [24]. Resultatene våre tyder på at en økning i mitokondriell funksjon kan forbedre metabolsk fleksibilitet. Foruten mitokondriell funksjon, ble imidlertid den basale respirasjonskvotienten, glukosedisponeringshastigheten, fettvevslipidlagringskapasiteten og plasmafrie fettsyrekonsentrasjoner også identifisert som determinante faktorer for metabolsk fleksibilitet og bør vurderes [40]. Fremtidige studier bør vurdere de cellulære determinantene for metabolsk fleksibilitet dypere for å utdype vår forståelse av de underliggende årsakene til forbedring av metabolsk fleksibilitet etter CF-tilskudd.
Helkroppsmetabolismevurderingen viste en økning i den relative CHO-oksidasjonen etter CF-tilskudd. Dette resultatet står i kontrast til en tidligere studie som rapporterte en økning i lipolyse etter akutt inntak av flavanoler eller et to ukers tilskudd med flavan-3-oler hos mus [36]. Foruten ekstraktsammensetningsforskjellene, kan disse motstridende funnene skyldes de pleiotrope effektene av NO. Det er godt akseptert at CF-inntak stimulerer produksjonen eller biotilgjengeligheten av NO-metabolismen [7]. På den ene siden stimulerer NO glukosetransport og opptak i skjelettmuskulaturen. Stimulering av NO-produksjon i cellelinjeavledede myotuber med insulin eller hydrogenperoksid resulterte i en økning av GLUT4-translokasjon, som ble redusert med nNOS-hemming [41]. Dessuten kan NO øke glukosetransport i en insulinuavhengig vei som fører til en økning i nivåene av syklisk GMP og AMPK [42], som fremmer glukoseoksidasjon i rotteskjelettmuskulatur uavhengig av fettsyretilgjengelighet og oksidasjon [43]. På den andre siden fremmer NO fettsyreoksidasjon ved å redusere nivået av malonyl-CoA via hemming av acetyl-CoA-karboksylase og aktivering av malonyl-CoA-dekarboksylase i skjelettmuskulaturen [44]. Mens vi observerte et skifte mot en lavere relativ andel for å bruke fettsyre som substrat med CF, var det ingen forskjell med hensyn til de absolutte verdiene uttrykt i kJ. Dette antyder at økningen i energiforbruk observert med CF-tilskudd er avhengig av en økning i glukoseoksidasjon. Derfor støtter disse resultatene ideen om at CF-forbruk øker insulinfølsomheten og fremmer glukoseoksidasjon uten en samtidig effekt på fettsyreoksidasjonskapasiteten. Disse resultatene reiser spørsmålet om relevansen av å bruke kakaoflavanoler i sammenheng med et fettrikt kosthold. Fremtidige studier bør evaluere en mulig skadelig effekt av en assosiasjon av CF-tilskudd og et fettrikt kosthold.
4.2.Mitokondriell funksjon
Kosttilførsel av kakaoflavanoler har vist seg å forbedre mitokondriell funksjon, inkludert (i) mitokondriell respirasjon og elektrontransportkjede enzymaktiviteter; (i) mitokondriell H2O2-frigjøring, som gjenspeiler produksjon av mitokondriell reaktive oksygenarter (ROS); og (i)mitokondriell kalsiumretensjonskapasitet som gjenspeiler følsomheten for mitokondriell permeabilitetsovergangspore (mPTP) åpning (for gjennomgang se [11]. Resultatene våre er i samsvar med tidligere studier; likevel var studien vår den første som evaluerte effekten av CF-tilskudd på mitokondriell funksjon vurdert in situ i permeabilisert fiber og i ulike muskeltyper I motsetning til de tidligere studiene på isolerte mitokondrier, bevarer vurderingen av mitokondriell funksjon i permeabilisert fiber mitokondriell morfologi, funksjonelle interaksjoner med andre intracellulære komponenter [1] og unngår mitokondriell struktur forstyrrelse under den mitokondrielle isolasjonsprosessen [32] Derfor er det viktig å studere mitokondriell funksjon i vevspreparater der mitokondriestrukturen er bevart, og hele mitokondrielle bassenget er representert for bedre å kunne evaluere responsen på behandlingen.
Tidligere studier utført i cellekultur eller in vivo hos mus har vist at tilskudd med EPI, som regnes som det viktigste bioaktive molekylet i CF, øker maksimal ADP-stimulert respirasjon (f.eks. tilstand 3 respirasjon) når mitokondrier får energi med en kombinasjon av energi substrater som mater ulike steder langs respirasjonskjeden [45-49]. I samsvar med disse resultatene observerte vi en hovedeffekt av CF-tilskudd på mitokondriell respirasjon i oksidative og glykolytiske muskler. For å bestemme om denne økningen er relatert til en mitokondriell masseøkning eller ombygging av mitokondrielle respiratoriske komplekser, vurderte vi mitokondrielle superkomplekser fra quadriceps-muskelen. Disse supramolekylære strukturene antas å redusere ROS-produksjon, stabilisere eller hjelpe til med sammenstillingen av individuelle komplekser, regulere respiratorisk kjedeaktivitet og forhindre proteinaggregering i den proteinrike indre mitokondriemembranen [50-52]. Til tross for et begrenset antall tiltak, antyder den visuelle analysen av resultatene (Supplerende materialer) at CF-tilskudd induserer en økning i mitokondriell masse, som reflektert av en økning i alle superkomplekse arter, snarere enn spesifikke respiratoriske kjedekompleksreorganiseringer. Samlet antyder disse resultatene at CF fremmer en mitokondriell masseøkning uten kvalitativ tilpasning av respiratoriske kjedekomplekser.
Under mitokondriell respirasjon dannes variable mengder superoksid og kan metaboliseres for å danne andre typer ROS [53]. Selv om overdreven ROS-produksjon fra mitokondrier er involvert i et bredt spekter av patologier, kan lave fysiologiske konsentrasjoner av ROS ha gunstige effekter, som å beskytte mot smittestoffer og delta i cellulær signalering [2,54]. Tidligere studier utført in vivo i gnagere og mennesker og cellekulturmodeller rapporterte gunstige CF-tilskuddseffekter på ROS-produksjon og ulike antioksidantsystemer [11]. For eksempel øker oral sonde med EPI i løpet av 15 dager SOD2 og katalaseaktivitet i mus quadriceps muskler [17]. Mens mitokondriell ROS-produksjon ikke har blitt mye vurdert, observerte vi at ROS-produksjonsnivåer var like når verdier ble uttrykt per muskelvekt, mens produksjonen ble senket når den ble uttrykt per mitokondriell masse, noe som tyder på at kvalitative tilpasninger skjer for å opprettholde de fysiologiske konsentrasjonene av ROS. Dessuten observerte vi ingen effekt av CF på SOD2 eller ROS-induserte skader vurdert ved proteinkarbonylering. Mens CF forbedrer antioksidantproteinpooler, inkludert mye rapporterte SOD2- og katalasenivåer [16,17,55], var ikke denne tilpasningen alltid assosiert med en reduksjon i ROS-induserte skader [56-59]. Disse dataene støtter teorien om at lave nivåer av ROS-produksjon er nødvendig for normal cellehomeostase [2]. Samlet antyder disse resultatene at, samtidig med en økning av mitokondriell masse, fremmer CF kvalitative mitokondrielle tilpasninger for å forbedre antioksidantkapasiteten og opprettholde lave nivåer av ROS-produksjon.
4.3.Mitokondriell biogenese
Mitokondriell masse er resultatet av samspillet mellom mitokondriell biogenese og mitofagi. Vår studie fokuserte på mitokondriell biogenese aktivert av polyfenolforbruk [60]. Mitokondriell biogenese er den cellulære prosessen som forbedrer mitokondriell masse. Denne komplekse og høyt regulerte prosessen involverer flere transkripsjonsfaktorer, kjernefysiske hormonreseptorer og transkripsjonskoaktivatorer som virker kollektivt for å koordinere endringer i uttrykket av kjernefysiske og mitokondrielle DNA-kodede gener [61]. Tidligere studier har forsøkt å identifisere hvilke(n) vei(er) som kan ligge til grunn for CF-tilskuddsindusert mitokondriell biogenese. Stimulering av NO-avhengig signalering har dukket opp som en sentral vei involvert i mitokondriell biogenese. CF-tilskudd øker dannelsen av NO ved å hemme det arginin-nedbrytende enzymet arginase, noe som øker tilgjengeligheten av L-arginin for NO-biosyntese [62,63]. Dessuten, ved bruk av en eNOS-hemmer, ble den stimulerende effekten av epicatechin på mitokondriell biogenese delvis sløvet [17]. Disse resultatene antyder involvering av andre signalveier for å stimulere mitokondriell biogenese.
Nylig har Aragones et al. (2016) rapporterte at kostholdsproantocyanidiner, medlemmer av polyfenolfamilien, øker lever NAD pluss metabolisme ved å forbedre de now o NAD pluss biosyntesevei og Sirte-aktivitet på en doseavhengig måte hos rotter [12]. Videre eksporterer leveren NADt-forløpere til andre organer, som skjelettmuskulatur, som har lavere kapasitet til å syntetisere NAD, noe som øker muligheten for å utvide effektene observert i leveren til hele organismen [64]. Mens noen studier rapporterte en effekt av CF-tilskudd på Sirt1-proteininnhold, aktivitet eller mRNA [12,15-17,65,66], involvering av NAD-metabolisme i mitokondriell biogenese etter CF-supplementering ved bruk av tap eller økning av funksjonen har aldri blitt testet. Mens en muskelspesifikk knock-out ville vært å foretrekke fremfor Sirt3 KO-musene for hele kroppen som ble brukt i vår studie, tyder resultatene våre på at CF forbedrer NAD-metabolismen, og Sirt3 er involvert i denne tilskuddsinduserte mitokondrielle elektrontransportkjedeaktivitetsforbedringen. De positive effektene som ble observert på aktiviteten til mitokondrielle komplekser etter CF-supplementering ble ikke observert ved bruk av Sirt3-7-mus, og en større aktivitet av kompleks I- og IV-aktiviteter ble observert etter CF-tilskudd bare i WT. Disse observasjonene utvider tidligere arbeider som viser at Sirt3 spiller en sentral rolle i mitokondriell funksjon ]67. Samlet antyder disse funnene at sirtuiner, gjennom modulering av NAD-metabolisme, er involvert i mitokondriell masseforbedring observert etter CF-tilskudd. 4.4.Begrensninger
Kakaobønner er sammensatt av en blanding av monomere, oligomere og polymere flavanoler. Blant flavanolene ser EPI ut til å være den mest tallrike polyfenoliske monomeren som finnes i kakaoprodukter, og representerer opptil 35 prosent av polyfenolinnholdet [68]. EPI ble etablert som det viktigste bioaktive molekylet underliggende fordelene forbundet med kakao- og sjokoladetilskudd [47,69]. Imidlertid kan EPI-metabolitter (EPIm) være involvert i de EPI-induserte biologiske effektene observert in vivo-studier. EPIm kan nå høyere plasmakonsentrasjoner enn EPI[70]. Dessuten ble det observert store forskjeller i EPIm på tvers av arter. Faktisk ble 80 prosent av EPIm tilstede hos mennesker ikke påvist hos rotter, mens likheten mellom mus og mennesker ble funnet å være litt mer gunstig ettersom de to viktigste menneskelige metabolittene ble påvist [70]. Vi brukte beriket CF-ekstrakt som inneholdt opptil fem ganger mer EPI enn ufermenterte kakaobønner[71]. Dessuten ble EPI-innholdet redusert med 10-20 prosent ved fermentering og redusert på en temperaturavhengig måte under steking [71,72]. Samlet antyder disse dataene at oppmerksomhet bare bør rettes mot EPI-innholdet når man vurderer fordelene med EPI-tilskudd på menneskers helse, og de nåværende resultatene bør vurderes med forsiktighet før man ekstrapolerer de observerte underliggende mekanismene hos mennesker.
5. Konklusjoner
Daglig CF-tilskudd i 15 dager fører til forbedringer av mitokondriell funksjon i oksidative og glykolytiske muskler. De nåværende resultatene tyder på at den økte mitokondrielle respirasjonen resulterer i en økning i mitokondriell masse mens det cellulære nivået av ROS-produksjon ble opprettholdt, noe som tyder på kvalitative tilpasninger i mitokondriene. Samtidig med den cellulære effekten på NO-metabolismen tidligere beskrevet [73], modulerer CF NAD-metabolismen, noe som stimulerer sirtuins aktivitet. Sirt3 spiller en sentral rolle i mitokondrietilpasninger og metabolsk fleksibilitet etter CF-tilskudd. Siden sirtuiner er nylige mål i forskjellige sykdomspatogeneser, som diabetes eller astma [74,75l, vil ytterligere studier utforske den potensielle interessen for å bruke CF som en naturlig aktivator av sirtuiner.
Referanser
1. Kuznetsov, AV; Veksler, V.; Gellerich, FN; Saks, V.; Margreiter, R.; Kunz, WS Analyse av mitokondriell funksjon in situ i permeabiliserte muskelfibre, vev og celler. Nat. Protoc. 2008, 3, 965–976. [CrossRef]
2. Sena, LA; Chandel, NS Fysiologiske roller til mitokondrielle reaktive oksygenarter. Mol. Cell 2012, 48, 158–167. [CrossRef]
3. Wacquier, B.; Combettes, L.; Van Nhieu, GT; Dupont, G. Samspill mellom intracellulær Ca2 pluss oscillasjoner og Ca2 pluss-stimulert mitokondriell metabolisme. Sci. Rep. 2016, 6, srep 19316. [CrossRef]
4. Suomalainen-Wartiovaara, A.; Battersby, BJ Mitokondrielle sykdommer: Bidraget til organellstressresponser på patologi. Nat. Rev. Mol. Cell Biol. 2018, 19, 77–92. [CrossRef]
5. Heyman, E.; Daussin, F.; Wieczorek, V.; Caiazzo, R.; Matran, R.; Berthon, P.; Aucouturier, J.; Berthoin, S.; Descatoire, A.; LeClair, E.; et al. Muskeloksygentilførsel og bruk ved type 1-diabetes, fra omgivelsesluft til mitokondriell respirasjonskjede: Er det et begrensende trinn? Diabetes Care 2020, 43, 209–218. [CrossRef]
6. Daussin, FN; Boulanger, E.; Lancel, S. Fra mitokondrier til sarkopeni: Rolle av inflammatorisk og RAGE-ligand akse implikasjon. Exp. Gerontol. 2021, 146, 111247. [CrossRef] [PubMed]
7. Katz, DL; Doughty, K.; Ali, A. Kakao og sjokolade i menneskers helse og sykdommer. Antioksid. Redokssignal. 2011, 15, 2779–2811. [CrossRef] 8. Grassi, D.; Lippi, C.; Necozione, S.; Desideri, G.; Ferri, C. Kortvarig administrering av mørk sjokolade følges av en betydelig økning i insulinfølsomhet og en reduksjon i blodtrykk hos friske personer. Er. J. Clin. Nutr. 2005, 81, 611–614. [CrossRef] [PubMed]
9. Grassi, D.; Desideri, G.; Necozione, S.; Lippi, C.; Casale, R.; Properzi, G.; Blumberg, JB; Ferri, C. Blodtrykket er redusert og insulinfølsomheten økt hos glukoseintolerante, hypertensive personer etter 15 dagers inntak av høypolyfenol mørk sjokolade. J. Nutr. 2008, 138, 1671–1676. [CrossRef]
10. Ottaviani, JI; Mamma, TY; Heiss, C.; Kwik-Uribe, C.; Schroeter, H.; Keen, CL Den stereokjemiske konfigurasjonen av flavanoler påvirker nivået og metabolismen av flavanoler hos mennesker og deres biologiske aktivitet in vivo. Free Radic. Biol. Med. 2011, 50, 237–244. [CrossRef] [PubMed]