Flavonoider: en myte eller en realitet for kreftterapi?
Mar 19, 2022
For mer informasjon, kontakttina.xiang@wecistanche.com
Abstrakt: Nutraceuticals er biologisk aktive molekyler som finnes i matvarer; de kan ha gunstige effekter på helsen, men de er ikke tilgjengelige i store nok mengder til å utføre denne funksjonen. Plantemetabolitter, som polyfenoler, er vidt spredt i planteriket, hvor de spiller grunnleggende roller i planteutvikling og interaksjoner med miljøet. Blant disse er flavonoider av spesiell interesse da de har betydelige effekter på menneskers helse. In vitro og/eller in vivo studier beskrev flavonoider som essensielle næringsstoffer for å forebygge flere sykdommer. De viser brede og lovende bioaktiviteter for å bekjempe kreft,betennelse, bakterielle infeksjoner, samt å redusere alvorlighetsgraden av nevrodegenerative og kardiovaskulære sykdommer eller diabetes. Derfor er det ikke overraskende at interessen for flavonoider har økt kraftig de siste årene. Mer enn 23,000 vitenskapelige publikasjoner om flavonoider har beskrevet den potensielle antikreftaktiviteten til disse naturlige molekylene det siste tiåret. Studier, in vitro og in vivo, viser at flavonoider har antikreftegenskaper, og mange epidemiologiske studier bekrefter at inntak av flavonoider i kosten fører til redusert risiko for kreft. Denne anmeldelsen gir et glimt av virkningsmekanismene til flavonoider på kreftceller.
Nøkkelord: flavonoider; kreft; oksidativt stress; betennelse; apoptose/autofagi; metastase; angiogenese

1. Introduksjon
Dekreftdødeligheten har gått ned gjennom årene på grunn av forskning og forebygging, men forekomsten har økt. Flere studier har fremhevet rollen til et plantebasert kosthold i forebygging av sykdommer relatert til utbruddet av svulster [1]. Fordelene med et plantebasert kosthold kan komme fra tilstedeværelsen av ulike bioaktive komponenter - som fenoliske forbindelser, karotenoider og spesielt flavonoider - i grønnsaker. Sistnevnte anses som uunnværlige og finnes i ulike nutrasøytiske, kosmetiske, farmasøytiske, medisinske og kosmetiske anvendelser. På grunn av disse bruksområdene har forskning på flavonoider økt betydelig de siste årene.
Flavonoider er en undergruppe av sekundære metabolitter som tilhører en stor samling fenoliske forbindelser syntetisert av planter. De er vidt distribuert blant fotosyntetiske organismer og er rikelig i mat og drikke av vegetabilsk opprinnelse (tabell 1), hvor kvalitative og kvantitative sammensetninger kan variere betydelig. Den kjemiske strukturen er sammensatt av et skjelett med 15 karbonatomer, som inneholder to benzenringer (A og B) knyttet til den heterosykliske pyranringen (C)[2]. Flavonoider kan deles inn i flere undergrupper: flavoner, flavonoler, flavanoner, flavanonoler, flavanoler eller katekiner, antocyaniner og chalkoner [3]. Denne forskjellen er avledet fra den grunnleggende strukturen til flavonoidet (figur 1), flavonringen, som representerer hoveddelen av flavonoidet, og graden av umettethet og oksidasjon av karbonringen. Videre, i planter, er aglykonen den grunnleggende flavonoidstrukturen; Imidlertid kan metyletere og acetylestere av alkoholgruppen være tilstede, så vel som glykosider dannet gjennom kobling med et karbohydrat, slik som L-rhamnose, D-glukose, glukose-ramnose, galaktose eller arabinose [4].

Godt over 10,000 molekyler tilhører den store gruppen av flavonoider [12,13]. Dette tallet øker betraktelig hvis vi ikke bare tar i betraktning produktene som stammer fra flavonoidene og dannes under bearbeiding og lagring av mat, men også metabolitter og konjugater som produseres i kroppen etter inntak av dem. Derfor varierer konsentrasjonene av flavonoider, og den strukturelle kompleksiteten og de fysisk-kjemiske egenskapene sterkt avhengig av kilden og matrisen [14].

Det er svært vanskelig å estimere kostinntaket av flavonoider på grunn av deres kvantitative og kvalitative variasjoner i grønnsaker og frukt, noe som kan hindre etableringen av epidemiologiske forhold med hensyn til deres innvirkning på menneskers helse og sykdom. i litteraturen har blitt anmeldt av forskjellige forfattere [15-17]. Flere faktorer kan påvirke flavonoiders biotilgjengelighet, som molekylvekter, glykosylering og forestring, noe som forårsaker en grad av usikkerhet om de reelle nivåene av deres biotilgjengelighet og absorpsjon i menneskekroppen [17].
En detaljert beskrivelse av den metabolske omdannelsen av flavonoider etter diettinntak er gitt av Crozier og kolleger [16] og Landete [18]. Kort fortalt kan den metabolske omdannelsen av flavonoider finne sted i tynntarmen med frigjøring av aglykoner som et resultat av hydrolaseaktiviteter. Dette trinnet følges av omdannelsen i leveren, hvor konjugerte former, dvs. O-glukuronider, sulfatestere og O-metylestere av flavonoider produseres. Kroppen kan behandle disse metabolittene som xenobiotika; dermed fjerne dem fra blodet [16,18]. Glukuronidene og sulfatderivatene kan lettere skilles ut via urin og galle [18]. Følgelig kan det hende at analysen av plasma ikke gir verdifull informasjon om profilene til disse metabolittene, mens urinutskillelse presenterer stor individuell variasjon avhengig av klassene av flavonoider og muligheten for absorpsjon av metabolitter i kroppsvevet. Videre vil forbindelsene, som ikke absorberes av tarmen, fortsette videre til tykktarmen, hvor de vil bli strukturelt modifisert av kolonmikroflora. De avledede katabolittene kan absorberes i blodet og til slutt skilles ut i urinen. Dessuten kan flavonoidene modulere tarmmikrobiotasammensetningen ved å øke populasjonen av nyttige bakterier, f.eks. Bifidobacterium og Lactobacillus, og hemme veksten av forskjellige patogener [19]. Slik evne til flavonoider gir en viktig antipolitisk mekanisme.
1.1.Biosyntetisk pathzoay av flavonoider i planter
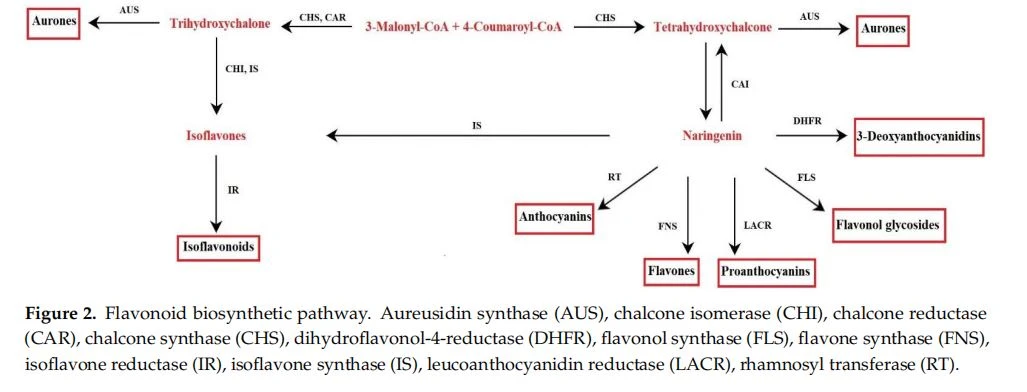
Stoffskiftet avflavonoiderinvolverer gener som allerede er tilstede i de første landplantene, levermoser og moser [20]. Den biokjemiske veien ble karakterisert gjennom studiet av mutanter med en endret syntese av flavonoider tilstede i ulike plantearter [21]. De viktigste forløperne for flavonoidsyntese er fenylalanin og malonyl-CoA produsert av shikimatveien og TCA-syklusen (trikarboksylsyresyklusen). Gjennom shikimate-veien produseres aromatiske aminosyrer i planter, bakterier og sopp. Denne veien består av syv enzymatiske reaksjoner, fra reaksjonen mellom fosfoenolpyruvat og erytrose-4-fosfat, opp til syntesen av korismat, sluttproduktet av veien, katalysert av korismatsyntase. Korismat-mutasen omorganiserer korismatet til prefenat; sistnevnte er substratet som brukes til å syntetisere fenylalanin [22]. I planter er fenylalanin forløperen til 4-kumaroyl-CoA, etterfølgende fenylalanin ammoniakklyaseaktivitet (PAL) og 4-kumarat-CoA-ligase. For å sette i gang syntesen av flavonoider, reagerer 4-kumaroyl-CoA med malonyl-CoA [23] (Figur 2). Disse enzymene lokaliserer seg på den cytosoliske siden av det endoplasmatiske retikulum (ER), som foreslått av immunlokaliseringseksperimenter, og gjenvinnes i den løselige fraksjonen av celleekstrakter. Videre er enzymer assosiert med hverandre ved protein-protein-interaksjoner på overflaten av det endoplasmatiske retikulum (ER); dermed danner et kompleks [21,24,25]. Data om samlokalisering av noen enzymer ved tonoplasten og kjernen har antydet en dynamisk oppførsel av det biosyntetiske komplekset. Dette vil favorisere både kanalisering og forskyvning av sluttproduktene for å møte cellens fysiologiske behov [24]. Forbindelsene er målrettet mot vakuoler som lagringsorganell (dvs. antocyaniner, flavonol og flavonglykosider) eller til cellevegger [21. Det er imidlertid viktig å påpeke at under visse fysiologiske forhold er planteceller i stand til å remobilisere flavonoider fra vakuoleavsetninger, så transport over tonoplasten er ikke ensrettet [25]. I tillegg til vakuoler og cellevegger, finnes flavonoider i cytosolen, ER, kloroplaster (dvs. quercetin og kaempferolglykosider), nucleus (dvs. isoflavonoider coumestrol og 4',7-dihydroksyflavon i Medicago truncatula), og små vesikler, så vel som apoplastisk plass (dvs. flavon, flavonolaglykoner og isoflavoner) [25]. Et effektivt transportsystem av flavonoider i celler ser ut til å være grunnlaget for deres brede distribusjon til forskjellige celleavdelinger. To hovedsystemer ser ut til å være involvert i transport av flavonoider, det ene basert på membranvesikler og det andre på en membrantransportør, som ikke virker gjensidig utelukkende [25].
1.2. Flavonoidenes rolle i planter
Bevaring av gener involvert i metabolismen av flavonoider under utviklingen av landplanter er en klar indikasjon på deres grunnleggende rolle i plantens fysiologi [15]. Flavonoider er ansvarlige for fargen og aromaen til blomster, er involvert i reproduksjonsstrategier, beskytter celler mot skadelig UV-stråling (nødvendig for livet til landplanter), og spiller en rolle i sykdomsresistens, så vel som i symbiotisk assosiasjon (dvs. som signalmolekyler i plante-mikroorganismesymbiose). Ved å være involvert i stressresponser beskytter de planten mot tøffe miljøforhold [26-28]. Den utbredte spredningen av flavonoider antyder at deres antioksidantaktivitet er en robust egenskap for overlevelse og kondisjon til landplanter. Faktisk er syntesen deres forbedret etter eksponering av planten for alvorlig stress, ettersom deres kraftige antioksidantaktivitet kan motvirke de skadelige effektene av reaktive oksygenarter (ROS) [29,30].
1.3. Flavonoider og bioteknologi
Flavonoider har blitt assosiert med mange gunstige agronomiske egenskaper og helsemessige fordeler for mennesker, så deres metabolske utvikling er et viktig mål for plantebioteknologi [25]. Mengden av flavonoider i planter varierer, avhengig av art, vekstforhold og utviklingsstadium. Faktisk, selv om medisinske og aromatiske planter er ganske effektive i å produsere disse molekylene, kan ikke de feltdyrkede plantene alltid representere en god kilde til disse metabolittene. Dette skyldes vanskelighetene ved plantedyrking, sesongvariasjoner i produktivitet, vev/organspesifikk produksjon og problemer knyttet til rensing. Av disse grunner ville den industrielle produksjonen av polyfenoler være vanskelig å opprettholde hvis plantene som dyrkes i feltet var den eneste kilden til råstoff. På den annen side gjør de svært komplekse strukturene og stereospesifisiteten til flavonoider ofte kjemisk syntese ikke økonomisk mulig [31]. In vitro-teknikker kan representere et verktøy for å forbedre flavonoidbiosyntese og tilgjengelighet gjennom året for å overvinne disse problemene. Ulike plantekulturer in vitro (dvs. kallus, cellesuspensjonskulturer, organ- og hårrotkulturer) og transformasjonsteknikker har blitt brukt for å undersøke og forbedre syntesen av disse viktige molekylene [31-35]. Flere tilnærminger er tatt i betraktning, for eksempel valg av høyytende linjer, forløperfôring og bruk av elicitorer [36]. Sistnevnte innebærer tilsetning til kulturmediet av molekyler av enten biologisk eller kjemisk syntese, som er i stand til å stimulere akkumulering av sekundære metabolitter i planten som en forsvarsrespons på stresstilstander [28], trigget og aktivert av utløser[{{8} },36]. Positive resultater har blitt oppnådd i forskjellige arter [37], og i dette perspektivet kan bruk av elicitorer vurderes for fremtidig utvikling i industriell skala.
Videre vil den forbedrede kunnskapen om rollen til miRNA i reguleringen av den biosyntetiske banen til flavonoider tillate forbedringer i metabolismen til disse molekylene. Modulering av miRNA-nivåer kan være et kraftig verktøy både for å oppnå bedre utbytte og for syntese av ønskede kombinasjoner av metabolitter [38].

2. Kreftforebyggende aktiviteter av flavonoider
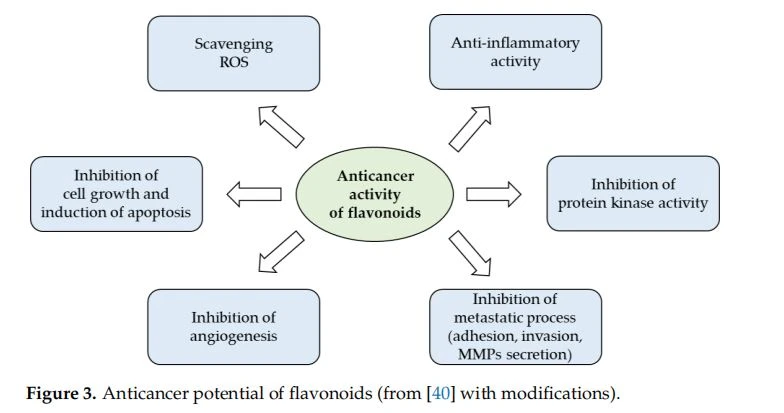
Det brede spekteret av biologiske handlinger som utføres av flavonoider avhenger i stor grad av deres karakteristika ved å være kraftige antiinflammatoriske og antioksidanter som motvirker frie radikaler, koblet på en viktig måte for mange kroniske degenerative sykdommer (Figur 3). Under patologiske forhold skader økningen av frie radikaler ulike typer molekyler, som nukleinsyrer, proteiner og lipider, og resulterer i cellealdring og død, men også i fremme av karsinogenese [39].
2.1. Flavonoider og kronisk betennelse
Kreftregnes som en sykdom relatert til kroniskbetennelse[41]. Ved ulike inflammatoriske sykdommer fører utfallet til karsinogenese. I galleveiene produserer kolangiokarsinom et kronisk inflammatorisk infiltrat, på grunn av infeksjonen med Clonorchis Sinensis [42]. Helicobacter pylori representerer en av hovedårsakene til adenokarsinom og lymfom i lymfoidvevet assosiert med mageslimhinnen [43]. Kronisk hepatitt B- og C-virusinfeksjon kan føre til hepatocellulært karsinom, den tredje ledende årsaken til kreftdød [44]. Til slutt er papillomavirusinfeksjon en ledende årsak til penis- og anogenital kreft hos mennesker. I tillegg kan risikoen for å utvikle blærekreft øke følgende schistosomiasis, og det samme kan risikoen for å pådra seg Kaposis sarkom etter human herpesvirus type 8-infeksjon. Ytterligere former for kronisk betennelse, i tillegg til de som genereres av mikrobielle infeksjoner, kan bidra til karsinogenese. Økt risiko for kreft i bukspyttkjertelen, spiserøret og galleblæren er beskrevet som en konsekvens av inflammatoriske sykdommer som Barretts metaplasi, øsofagitt og kronisk pankreatitt [45, A46]. Det er også funnet mulige assosiasjoner mellom Marjolin-sår og hudkreft [47], asbest og mesotheliom [48], sigarettrøyk og bronkialkreft [48], kronisk astma og lungekreft [49], ulcerøs lichen planus og plateepitelkarsinom [49] 50], forhudsbetennelse/phimosis og peniskreft [51 og mellom bekken-/ovariebetennelse og eggstokkreft [52]. Prostatakreft har vært assosiert med kronisk prostatitt forårsaket av en vedvarende bakteriell infeksjon eller av ikke-infeksiøse mekanismer [53]. Derfor ser sammenhengen mellom kronisk betennelse og utvikling av kreft ut til å være støttet av et økende antall bevis.
I denne forbindelse har flavonoider vist den doble evnen til å redusere betennelse og spredning av tumorceller. Taxifolin, en flavanonol som finnes i bartrær, har enten anti-inflammatoriske eller antiproliferative effekter. Hos sveitsiske albino-mus blir de utsatt for benzopyren, et mutagen som ofte er tilstede i sigarettrøyk og bileksos. den utøvde undertrykt betennelse via stimulering av Nrf2 (kjernefaktor erytroid 2-relatert faktor 2) signalveien, som spiller en sentral rolle i å gi motstand mot oksidativt stress og betennelse ved å hemme NF-kB [54,55]. Chrysin er en aglykon flavonoid med anti-inflammatoriske funksjoner. Administrering av chrysin hos mus utfordret med LPS (lipopolysakkarid) reduserte utviklingen av lungeskader ved å undertrykke det inositol-krevende enzymet l/tioredoksin interaksjonsprotein/nukleotidbindende oligomeriseringsdomene-lignende reseptorprotein 3-vei [56]. Hos rotter forhindret det myokardkomplikasjoner av hyperkolesterolemi-utløst oksidativt stress gjennom aktivering av endotelial nitrogenoksidsyntase og Nrf2-målgener som SOD (superoksiddismutase) og katalase [57]. Videre hemmet chrysin signifikant spredning og induserte apoptose på humane livmorhalskreftceller [58] og kolorektale kreftceller [59] ved å modulere ulike apoptotiske gener og AKT/MAPK-banegener. Disse resultatene fremhever to distinkte mekanismer som flavonoider bestemmer effekten på betennelse og celleproliferasjon: på den ene siden aktiverer de Nrf2-veien for å hemme NF-kB og utløse den antiinflammatoriske effekten; på den annen side virker de på celleproliferasjon ved å modulere genene involvert i apoptose og AKT/MAPK-veien (proteinkinase B/mitogen-aktivert proteinkinase).
2.2. Flavonoider og oksidativt stress
Det intracellulære miljøet i kreftceller har et høyt nivå av ROS enn den normale cellen, hovedsakelig hydrogenperoksid, på grunn av et antioksidantsystem som ikke lenger er effektivt. I normale celler omdanner tilstrekkelig glutation(GSH/GSSG)-forhold hydrogenperoksidet til vann. Når glutationforholdet avtar, omdannes hydrogenperoksidet til hydroksylradikal (OH'), som er et svært reaktivt radikal som fører til DNA-skader og mutasjoner i tumorsuppressorgener, en innledende kritisk hendelse som utløser karsinogenese [60]. Minst tre stadier karakteriserer utviklingen av kreft: initiering, promotering og progresjon.Oksidativt stresser involvert i alle faser av denne prosessen (Figur 4). Under initieringsfasen kan ROS skade DNA ved å introdusere genmutasjoner og strukturelle endringer i DNA. I promoteringsfasen har ROS en grunnleggende rolle i å øke celleproliferasjon eller redusere celleapoptose som en konsekvens av modifikasjon av genuttrykk, kommunikasjon mellom celler og intracellulære signalveier [61]. Til slutt bidrar oksidativt stress til progresjonen av tumorprosessen gjennom ytterligere mutagenese i den initierte cellepopulasjonen [62]. Det terapeutiske målet for mange kreftmedisiner er å øke det allerede høye nivået av ROS som er tilstede i tumorceller for å utløse apoptosekaskaden [63]. Selv flavonoider, selv om de er anerkjent for sin antioksidantaktivitet, kan ha prooksidantaktivitet og dermed utløse apoptose i kreftceller.

Naringenin er en flavanon som finnes mest i grapefrukt, mandarin, appelsin, rå sitronskall og rå limeskall. Det stoppet cellesyklusen og induserte apoptose i flere humane tumorceller [64,65], og undertrykte også invasiviteten og metastaserende potensialet til gastriske kreftceller og hepatocellulære karsinomceller [66,67]. Naringenin hadde en pro-oksidant effekt som reduserte aktivitetene av glutationreduktase, glutation S-transferase og glyoksalase i tumorceller, noe som igjen reduserte mekanismene for avgiftning av hydrogenperoksid som samtykker til akkumulering og økning av lipidperoksidasjon med påfølgende cellemembranskade [68]. Interessant nok har en nylig avsluttet fase 1 klinisk studie fremhevet sikkerheten og farmakokinetikken til naringenin [69]. Naringenin, 4 timer etter administrering av en enkelt dose Citrus sinensis-ekstrakt (søt appelsin), var påviselig i plasma ved en konsentrasjon på 43 μuM.

2.3. Flavonoider og apoptose/autofagi
Søket etter kreftbehandlinger er for tiden fokusert på induksjon av apoptose av kreftceller [70]. Dessverre er kreftceller i stand til å unngå aktivering av den apoptotiske kaskaden, og forsvarer seg mot celledød. Videre favoriseres tumorutvikling av induksjon av medikamentresistens [71]. Moduleringen av Bcl-2 og andre proteiner, gjør at flavonoider, slik som støping, isolert fra Vitex agnus-castus-arten, mye brukt i tradisjonell kinesisk medisin som et antiinflammatorisk middel, kan utløse apoptose ved å modulere Bcl{{ 5}} og andre pro-overlevelse. Dette molekylet utløser den iboende banen til apoptose ved å nedregulere Bcl-2, Bcl-xL, survivin og oppregulere Bax, som vist i en rekke tumorlinjer av galleblærenkreft, spiserørskreft, tykktarmskreft, leukemi og glioblastom [72] . Tilsvarende er vitexin en naturlig avledet flavonoidforbindelse ekstrahert fra den kinesiske urten Crataegus pinnatifida som har vist seg å redusere Bcl-2/Bax-forholdet, frigjøringen av cytokrom c fra mitokondrier, og i human ikke-småcellet lungekreft A549 celler, kaspase-3 spaltning [73].
Nedreguleringsekspresjon av antiapoptotiske molekyler som Bcl-2 og Bcl-xL og oppregulering av ekspresjonen av pro-apoptotiske molekyler, som caspase-3 og caspase-9, ble observert i hemming av spredning av en linje av human metastatisk eggstokkreft (PA-1) utøvet av quercetin [74] en av de mest tallrike flavonoidene i løk og brokkoli.
Autofagi er en svært bevart stressindusert katabolsk prosess som positivt regulerer celledødsprosessen. Flere kreftmedisiner utløste autofagi, og induksjonen representerer derfor en potensiell strategi for kreftbehandling J751. Det vandige ekstraktet av allehånde er rikt på forskjellige typer flavonoider. I brystkreftceller aktiverte det autofagi, in vitro og in vivo, og induserte celledød ved å undertrykke Akt/pattedyr-målet til rapamycin (mTOR)-banen [76]. Tilsvarende, i SK-HEP-1 humane leverkreftceller induserte kaempferol autofagi gjennom Akt-signalering og adenosinmonofosfataktivert proteinkinase (AMPK), og gjennom nedregulering av CDK1/cyklin B førte til G2/M-stans [77 ]. Videre ser det ut til at genisteininduksjon av autofagi i flere typer kreft, som bryst-, prostata- og livmorkreft, ligger til grunn for dens antitumoreffekt [78].
2.4. Flavonoider rettet mot kreftstamceller
Kreftstamceller (CSCs) er en liten underpopulasjon av celler i en svulst som er selvfornyende og i stand til å starte og opprettholde tumorvekst. Videre spiller CSCs i kreft en kritisk rolle i utbruddet, vedlikeholdet, progresjonen, medikamentresistens og tilbakefall eller metastaser [79]. Akkumulerende bevis tyder på at fytokjemikalier i kosten, inkludert flavonoider, er lovende midler for å motvirke CSCs [80]. For eksempel har det blitt demonstrert at naringenin hemmer brystkreftstamceller gjennom økningen av p53 og østrogenreseptor på samme måte som funnet for hesperidin [81].
Apigenin er en vanlig flavon som hovedsakelig finnes i kamille, selleri og persille. Antikreftaktiviteten til apigenin har blitt observert ved glioblastom (den vanligste primære og aggressive hjernesvulsten). Faktisk demonstrerte Kim og kolleger [82] at apigenin (og quercetin) er i stand til å forstyrre selvfornyelseskapasiteten og invasiviteten til glioblastom-stamlignende celler gjennom nedregulering av c-Met-signalveien. Apigenin øker den antineoplastiske aktiviteten til cisplatin i CD44 pluss prostatakreft stamcellepopulasjoner [83] og undertrykker de stamcelle-lignende egenskapene og tumorigene potensialet til trippel-negative brystkreftceller [84]. Hemming av selvfornyelsesevne og gjenoppretting av radiosensitivitet har blitt demonstrert i orale kreftstamceller for luteolin [85], en flavon som finnes i et stort utvalg av kostholdskilder, inkludert selleri, gulrøtter, paprika, olivenolje, rosmarin, og oregano. Flavonol quercetin er et molekyl av medisinsk interesse, siden det har antikreftpotensial [86]. Faktisk retter quercetin seg mot flere typer CSC, inkludert bukspyttkjertel [87], bryst [88] og gastriske [89] stamceller.
2.5. Anti-angiogene og anti-metastatiske egenskaper av flavonoider
Flavonoider spiller en interessant rolle som inhibitorer av angiogenese. Angiogenese består i utviklingen av nye blodårer, som er en prosess som er grunnleggende for vevsvekst, sårtilheling og embryonal utvikling, men den representerer en negativ egenskap i nærvær av en svulst ettersom flere blodårer frakter flere næringsstoffer til kreftcellene, dem til bedre å leve og spre seg. Det er en prosess som er tett kontrollert av et bredt spekter av induktorer, slik som vaskulær endotelial vekstfaktor (VEGF) og adhesjonsmolekyler, samt av ulike hemmere inkludert angiostatin og trombospondin, og stimulert av mange faktorer som bidrar til betennelse og kreft, noe som derfor indikerer at angiogenese, betennelse og kreft er nært beslektede prosesser [90]. De siste årene har utviklingen av angiogenese-hemmere vært et hot spot innen kreftforskning, da denne ukontrollerte prosessen er et grunnleggende trinn i kreftvekst, invasjon og metastasering. Etter denne innsatsen godkjente FDA bruken av en rekke anti-angiogenesemedisiner for kreftbehandling [91]. Nye molekyler som er i stand til å hemme tumorangiogenese blir testet. Wogonin, en O-metylert flavon, en flavonoidlignende kjemisk forbindelse syntetisert av Scutellaria baicalensis, hemmer LPS-indusert angiogenese både in vitro og in vivo [92]. Genistein hemmer angiogenese ved å modulere uttrykket av VEGF, metalloproteaser (MMP) og epidermal vekstfaktorreseptor (EGFR) [93]. I endotelcellene i den menneskelige navlevenen, stimulert av VEGF(HUVECs), hemmer Kaempferol angiogenese ved å virke på VEGF-reseptoren 2. Denne prosessen utføres også takket være nedreguleringen av P13kt/Akt sammen med den mitogenaktiverte proteinkinase (MEK) og ERK-veiene [94].
Luteolin (8-C- -D-glukopyranosid), en glykosyl-flavonoid i kosten, reduserer tumorinvasjon, inn i 12-O-tetradekanoylforbol-13-acetat (TPA)-behandlet MCF{{ 7}} brystkreftceller, blokkerer ekspresjon av MMP-9 metalloproteinase og interleukin-8(IL-8)[95]. I magekreftceller viste quercetin antimetastatiske effekter via nedbrytning av urokinase plasminogen aktivator (uPA)/uPA reseptor (uPAR) funksjon, ved å modulere NF-kB, PKC-6, ERK1/2 og AMPK [96]. Nylig har Yao et al. rapporterte at i A375 humane melanomceller, hemmer luteolin spredning, migrasjon og invasjon ved å indusere doseavhengig apoptose. I samme cellemodell ble hemming av Akt og PI3K-fosforylering også observert. De samme forfatterne har samlet eksperimentelle bevis på at luteolin tillater overekspresjon av vevshemmere av metalloproteinase (TIMP)-1 og TIMP-2 og reduserer uttrykket av MMP-2 og MMP{{23} }]. Ytterligere eksperimentelle resultater fremhevet at luteolin betydelig reduserte tumorvekst av A375-celler i en muse xenograft-modell, noe som bekrefter at antitumoraktiviteten er avledet fra nedregulering av MMP-2- og MMP-9-ekspresjon gjennom PI3K/Akt vei [97].
2.6. Flavonoider og kreftcelledifferensiering
Differensieringsterapi tar sikte på å indusere differensiering av kreftceller; dermed redusere deres spredning [68]. Differensieringsterapi sammenlignet med konvensjonell kjemoterapi har fordelen av å være mindre giftig og derfor forårsake færre bivirkninger for pasienten [98]. Quercetin og pelargonidin induserer differensiering på svært metastaserende B16-F10 melanom murine celler ved en mekanisme som involverer transglutaminase type 2 [99]. All-trans retinsyre (ATRA) har bred klinisk bruk i differensieringsterapi hos pasienter med akutt promyelocytisk leukemi (APL). Imidlertid resulterer langvarig behandling i medikamentresistens og krever en stadig høyere dosering [100]. Fremveksten av medikamentresistensfenomener krever utvikling av nye midler med større differensieringsinduksjonsaktivitet. Flavonoider har interessante egenskaper i denne forstand. Faktisk er de i stand til å indusere cellulær differensiering av APL-celler. Imidlertid kan flavonstruktur være avgjørende for induksjon av celledifferensiering. Faktisk, i APL-celler induserer quercetin deres differensiering til monocytter og apigenin og luteolin induserer deres differensiering til granulocytter. Tvert imot induserte ikke galangin, kaempferol og naringenin noen differensiering i APL-celler [100].
Nylig har Moradzadeh et al. [101] rapporterte at epigallocatechin gallat (EGCG), en grønn te-polyfenol, i granulocyttdifferensiering av APL HL-60- og NB4-celler, har en lignende effekt som ATRA. I begge disse cellelinjene reduserte EGCG ekspresjonen av histondeacetylase 1. I NB4-celler reduserte EGCG dessuten ekspresjonen av en relevant klinisk markør PML-RARo. Celledifferensiering ble indusert av wogonin, i K562-cellelinjen, en primær kronisk myeloid leukemi (CML) cellemodell. Det samme resultatet ble observert i pasientavledet primær KML som var sensitiv og resistent mot imatinib. Oppregulering av transkripsjonsfaktoren GATA-1 og økt binding mellom GATA-1 og den transkripsjonelle koaktivatoren FOG-1 ble også observert i disse cellene [102]. Flere observasjoner gir bevis for å støtte den potensielle bruken av flavonoider i behandlingen av pasienter med ulike typer kreft. I tumorceller isolert fra ulike solide svulster, som malignt melanom, brystkreft, gliom og hepatom, har flavonoidbehandling-indusert differensiering blitt vist [103]. Spesifikt, i brystkreftstamceller, har celledifferensiering indusert av genistein [78,93] og et flavonoid isolert fra lakris (Glycyrrhiza sp.), isoliquiritigenin, blitt observert [104].
I behandlingen av APL NB4-celler, med dihydromyricetin (DMY), en dihydroflavonol ekstrahert fra Ampelopsis sp., ble det observert at dette synergiserte med ATRA, for å fremme celledifferensiering [105]. ATRA-indusert fosforylering av p38 MAPK aktiverer STAT1, og STAT1 spiller en nøkkelrolle i den terminale differensieringen av myeloidceller gjennom regulering av cellesyklusproteiner og spesifikke myeloide transkripsjonsfaktorer. DMY-forbedret differensiering, når kombinert med ATRA var avhengig av den økte aktiveringen av p38MAPK/STAT1-signalveien. Interessant nok var DMY alene ikke i stand til å aktivere differensiering og reduserte fosforyleringen av p38 MAPK med en påfølgende reduksjon i STAT1-aktivitet [105]. Denne uventede forskjellige oppførselen, i aktiveringen av banen, antyder at det ikke er mulig å forutsi den biologiske effekten avledet fra kombinasjonen av et generisk flavonoid med et konvensjonelt medikament, bare basert på kunnskapen om deres virkningsmekanisme studert i enkeltbehandlinger, da det kanskje ikke er det samme. Derfor kan alle flavonoider være mulige differensieringsforsterkere i kombinasjon med konvensjonelle legemidler.
2.7. Flavonoider for å forbedre følsomheten for kjemoterapi
Kombinerte behandlinger med flere molekyler kan forbedre den generelle kliniske effekten av gjeldende kreftmedisiner [68,106]. På grunn av resistens mot flere medikamenter og tilbakefall av svulster, haster det fortsatt med utvikling av nye strategier for å forbedre følsomheten for kjemoterapi og minimere uønskede bivirkninger. I denne forbindelse har flavonoider blitt ansett som lovende kandidater i kraft av deres antikreftaktivitet (figur 5). Yuan et al. [107] ga bevis på den antiproliferative effekten av kombinasjonen av arsenitt og delfinidin (sistnevnte er en av antocyaninforbindelsene) på humane NB4- og HL-60 APL-celler. Delphinidin sensibiliserte arsenitt-resistente leukemiceller for apoptose som modulerer mengden glutation og reduserer aktiviteten til NF-kB. De viste også at den kombinerte behandlingen var selektiv da den økte cytotoksisiteten til arsenitt mot kreftceller, men ikke på humane perifere mononukleære blodceller [107].

Videre utøvde kombinert behandling med flavonoider gunstige effekter i ulike celletyper stabilisert fra solide svulster. Quercetin har vist seg å sensibilisere humane glioblastom U87 og U251 celler for temozolomid, et oralt alkylerende kjemoterapeutisk middel, in vitro via hemming av varmesjokkprotein 27 [108]. Flavonoider er i stand til å komme inn i hjernen [109]. Antikreftpotensialet til en kombinasjon av isoflavon biochanin A
og temozolomid mot glioblastom U87- og T98G-celler var assosiert med økt ekspresjon av p-p53, hemming av cellelevedyktighet og ekspresjon av celleoverlevelsesproteiner EGFR, p-Akt, p-ERK, membrantype-MMP1 og c-myc[ 110]. Kombinert behandling i kreftceller induserte cellesyklusstans i G1-fasen og en betydelig endring i energimetabolismen fra anaerob til aerob [95]. I tykktarmskreftceller potenserte støping apoptosen indusert av TNF-relatert apoptose-induserende ligand (TRAIL) gjennom oppregulering av dødsreseptor 5 og nedregulering av overlevelsesproteiner, som survivin, Bdl-xL, Bcl-2, cellulær FLICE -lignende hemmende protein (cFLIP), og X-koblet inhibitor av apoptoseprotein (XIAP) [95]. I humane kolorektale adenokarsinom LoVo-celler, Palko-Labuzet al. nylig demonstrert at flavonoidet baicalein potenserer den antiproliferative og pro-apoptotiske effekten av statiner, noe som gjør doksorubicinbehandling effektiv i en ellers resistent cellelinje [111]. I tillegg undertrykker grønn te EGCG-katechin tumorvekst og øker den terapeutiske effekten av legemidler i ulike kreftformer, som for eksempel 5-fluorouracil (5-FU) på tykktarmskreftceller ved å hemme glukoseregulert protein 78 (GRP78)/NF-kB/miR-155-5p/MDR1-vei [112].
Det har blitt antydet at EGCG polyfenol i te har potensial til å være en terapeutisk adjuvans mot human metastatisk brystkreft [113]. En klinisk studie viste at brystkreftpasienter som ble utsatt for strålebehandling og oral administrering av EGCG viste redusert aktivering av MMP-9/MMP-2 ledsaget av lave serumnivåer av VEGF og hepatocyttvekstfaktor (HGF)[113]. I en MDA-MB-231 human brystkreftcellelinje forsterker luteolin virkningen av doksorubicin og paklitaksel ved å undertrykke Nrf2-mediert signalering og blokkere STAT3 [95,114]. Lignende aktivitet ble observert for flavonoidet glabridin i brystkreftcellelinjer, MDA-MB-231/MDR1-resistente (med overekspresjon av P-GP), og i MCF-7/ADR-celler (med overekspresjon av P -GP og MRP2). Den sensibiliserende effekten av glabridin kan skyldes dets evne til å øke doksorubicinakkumulering i MDA-MB-231/MDR1-celler ved å undertrykke P-GP-ekspresjon og kompetitivt hemme P-GP-utstrømningspumpen, og dermed øke den apoptotiske aktiviteten til doksorubicin [115]. Kundur et al. har vist at quercetin og curcumin administrert sammen har en synergistisk antitumoreffekt på trippel-negative brystkreftceller (TNBC), inkludert MDA-MB-231-linjen, og forbedrer uttrykk for brystkreft type 1 mottakelighetsprotein [116].
Nylig rapporterte Moon og kolleger at behandling med nobiletin økte akkumuleringen av intracellulært Adriamycin (ADR) i den humane NSCLC A549/ADR-cellelinjen ved å fremme behandlingseffektivitet gjennom en mekanisme ledsaget av nedregulering av uttrykket av Akt, neuroblastom-avledet MYC(MYCN) ), GSK-3, MRP1 og -catenin [117]. Dessuten, i EGFR-mutant-resistente NSCLC-celler, hemmet apigenin kombinert med EGFR-tyrosinkinasehemmeren gefitinib viktige onkogene faktorer som c-Myc, hypoksi-induserbar faktor 1 alfa (HIF-1a) og EGFR, og også reduserte bruken av glukose ved å undertrykke uttrykket av transportøren, noe som tyder på mulig bruk av kombinasjonen av de to molekylene i klinisk praksis [118]. Aktivering av den iboende apoptoseveien ved G1-fasestopp og fosfataseekspresjon økte cytotoksisiteten til paklitaksel i prostatakreftceller behandlet med en sitrus-avledet polyfenolisk flavonoid, naringenin. En av de viktigste negative regulatorene for PI3K/Akt-signalveien, tensinhomologen slettet på kromosom 10(PTEN), er også involvert i denne mekanismen, sammen med nedregulering av NF-kB, Snail, Twist og c-Myc mRNA-ekspresjon og undertrykkelse av cellemigrasjon [119]. Disse resultatene på den kombinerte bruken av de to molekylene in vitro fremhever deres terapeutiske potensiale ved prostatakreft, selv om en detaljert evaluering av mekanismen som ligger til grunn for den kombinerte virkningen in vivo åpenbart også er nødvendig.

3. Konklusjoner
Flavonoider har vist spesielt effektive egenskaper for å motvirke tumorvekst og for å gjøre kreftceller motstandsdyktige mot konvensjonelle terapier. Med den nåværende sammenstillingen av informasjon fra gjeldende litteratur er det gjort et forsøk på å synliggjøre potensialet til flavonoider i kreftbehandling, enten de brukes alene eller i kombinasjon med kjemoterapeutiske midler. Selv om den potensielle effekten av flavonoider for å motvirke tumorvekst har blitt fremhevet, vil letingen etter virkningsmekanismer fortsatt ta lang tid.
Forfatterbidrag: CFog SB unnfanget ideen om å skrive denne anmeldelsen. CF, MRIB, GF, GP, CT, CM og SB bidro til litteratursøk og skriving. CF, SB, CM og CT reviderte papiret. CTredigerte avisen. Alle forfattere har lest og samtykket til den publiserte versjonen av manuskriptet.
Finansiering: Denne forskningen mottok ingen ekstern finansiering.
Anerkjennelser: MRog GPer mottakere av Ph.D. Program i evolusjonsbiologi og økologi, Institutt for biologi, Universitetet i Roma Tor Vergata, Via Della Ricerca Scientifica, 00133 Roma, Italia).CTble støttet av Fondazione Umberto Veronesi, noe som er takknemlig.
Interessekonflikter: Forfatterne erklærer ingen interessekonflikt.
Referanser
1. Steck, SE; Murphy, EA Kostholdsmønstre og kreftrisiko. Nat. Rev. Kreft. 2020, 20, 125–138. [CrossRef]
2. Marai, JPJ; Deavours, B.; Dixon, RA; Ferreira, D. Flavonoidenes stereokjemi. I Science of Flavonoids; Springer: New York, NY, USA, 2007; s. 1–35.
3. Panche, AN; Diwan, AD; Chandra, SR Flavonoider: En oversikt. J. Nutr. Sci. 2016, 5, e47. [CrossRef]
4. Middleton, E. Flavonoidene. Trender Pharmacol. Sci. 1984, 5, 335–338. 5. Xiong, Y.; Zhang, P.; Warner, RD; Fang, Z. 3-Deoxyanthocyanidin Colorant: Nature, Health, Synthesis, and Food Applications. Kompr. Rev. Food Sci. Mat Saf. 2019, 18, 1533–1549. [CrossRef] [PubMed]
6. Khoo, HE; Azlan, A.; Tang, ST; Lim, SM Antocyanidiner og antocyaniner: fargede pigmenter som mat, farmasøytiske ingredienser og potensielle helsemessige fordeler. Mat Nutr. Res. 2017, 61, 1361779. [CrossRef]
7. Hostetler, GL; Ralston, RA; Schwartz, SJ Flavones: Matkilder, biotilgjengelighet, metabolisme og bioaktivitet. Adv. Nutr. 2017, 8, 423–435. [CrossRef]
8. Aherne, SA; O'Brien, NM Kostholdsflavonoler: kjemi, matinnhold og metabolisme. Ernæring 2002, 18, 75–81. [CrossRef]
9. Mazur, WM; Duke, JA; Wähälä, K.; Rasku, S.; Adlercreutz, H. Isoflflavonoider og lignaner i belgfrukter: Ernæringsmessige og helsemessige aspekter hos mennesker. Nutr. Biochem. 1998, 9, 193–200. [CrossRef]
10. Hammerstone, FJ; Lazarus, SA; Schmitz, HH Procyanidininnhold og variasjon i noen vanlig konsumerte matvarer. J. Nutr. 2020, 130, 2086S–2092S. [CrossRef]