Oversikt over Phlorotannins' bestanddeler i Fucales del 1
Jun 30, 2023
Abstrakt: Fukaler er en orden innenfor Phaeophyceae som inkluderer de fleste vanlige strandtang i tempererte og subtropiske kystområder. Mange arter av denne orden har lenge vært en del av menneskelig kultur med applikasjoner som mat, fôr og rettsmidler i folkemedisinen. Bortsett fra deres høye næringsverdi, er disse tangene også et velkjent reservoar av flere bioaktive forbindelser med stor industriell interesse. Blant dem har florotanniner, en unik og mangfoldig klasse av brunalger-eksklusive fenoler, fått mye oppmerksomhet i løpet av de siste årene på grunn av deres mange potensielle helsemessige fordeler. Men på grunn av deres komplekse strukturelle egenskaper, kombinert med mangel på standarder, utgjør det en stor utfordring for identifisering og karakterisering av disse forbindelsene, i det minste med teknologien som er tilgjengelig for øyeblikket. Ikke desto mindre har det blitt gjort mye arbeid for å belyse de strukturelle egenskapene til florotanniner, noe som har resultert i relevant innsikt i kjemien til disse forbindelsene. I denne sammenhengen tar denne gjennomgangen for seg de viktigste bidragene og teknologiske fremskritt innen utvinning og karakterisering av phlorotanniner, med spesielt fokus på Fucales.
Glykosid av cistanche kan også øke aktiviteten til SOD i hjerte- og levervev, og redusere innholdet av lipofuscin og MDA i hvert vev betydelig, effektivt rense ulike reaktive oksygenradikaler (OH-, H₂O₂, etc.) og beskytte mot DNA-skader forårsaket av OH-radikaler. Cistanche-fenyletanoidglykosider har en sterk renseevne for frie radikaler, en høyere reduserende evne enn vitamin C, forbedrer aktiviteten til SOD i sædsuspensjon, reduserer innholdet av MDA og har en viss beskyttende effekt på sædmembranfunksjonen. Cistanche-polysakkarider kan øke aktiviteten til SOD og GSH-Px i erytrocytter og lungevev hos eksperimentelt senescent mus forårsaket av D-galaktose, samt redusere innholdet av MDA og kollagen i lunge og plasma, og øke innholdet av elastin, har en god rensende effekt på DPPH, forlenger hypoksitiden hos eldre mus, forbedrer aktiviteten til SOD i serum og forsinker den fysiologiske degenerasjonen av lunge hos eksperimentelt eldre mus. Med cellulær morfologisk degenerasjon har eksperimenter vist at Cistanche har den gode antioksidantevnen og har potensial til å være et medikament for å forebygge og behandle aldringssykdommer. Samtidig har echinacoside i Cistanche en betydelig evne til å rense DPPH-frie radikaler og har evnen til å rense reaktive oksygenarter og forhindre frie radikal-indusert kollagen-nedbrytning, og har også en god reparasjonseffekt på anionskader av tymin frie radikaler.

Klikk på Cistanche Tubulosa Supplement
【For mer informasjon:george.deng@wecistanche.com / WhatApp:86 13632399501】
1. Introduksjon
Fucales er en av de største og mest mangfoldige ordenene i Phaeophyceae-klassen (dvs. brunalger), som inkluderer noen av de vanligste tangene i tempererte og subtropiske kystområder, fra syv forskjellige familier, nemlig Sargassaceae, Fucaceae, Himanthaliaceae, Durvillaeaceae, Notheiaceae, Hormosiraceae og Seirococcaceae [1]. Medlemmene av denne ordenen er flercellede og har den typiske strukturen til store marine makroalger, med en godt differensiert rhizoid, stipe og lamina [2]. Bladet er vanligvis forstørret og kan ha gassvesikler som flyter fritt i vannet.
Sargassaceae er den viktigste representative familien til Fucales, med Sargassum-slekten som representerer omtrent 65 prosent av medlemmene. I Europa okkuperer innfødte Sargassaceae-arter, som Cystoseira, Ericaria og Gongolaria, for det meste de intertidal rockpools og/eller subtidal regionen. Spesielt Cystoseira, som står for mer enn 30 arter, er en av de viktigste slektene som finnes i Middelhavet og Atlanterhavet, avgjørende for biologisk mangfold og økosystemfunksjon [3]. Det hevdes også som en lovende kilde til bioaktive forbindelser [4]. På grunn av sin plassering blir arter fra denne slekten utsatt for svingninger i temperatur, saltholdighet i sjøvann og mengde/kvalitet på lys, noe som fører til at de tilpasser seg og utvikler beskyttelsesstrategier, for eksempel å øke innholdet av noen pigmenter for å håndtere lys-innstrålingsfluktuasjoner [5]. Sargassum-slekten, som omfatter mer enn 350 arter [6], er for det meste pelagisk og er distribuert over hele verden, til tross for at den hovedsakelig finnes i tropiske og subtropiske miljøer [7]. I det siste har de to halo-pelagiske artene (S. fluitans og S. natans) av denne slekten vært ansvarlige for Sargassum-tidevannet på kysten av Karibia og Vest-Afrika, og har negativ innvirkning på de marine økosystemene [7]. Sargassum-arter har blitt brukt i århundrer i jordbruket som gjødsel, selv om deres
søknader kan gå utover gjødslingsformål. Faktisk har de vist spesielt interessante egenskaper for utvikling av plante-biostimuleringsstrategier og/eller abiotisk stressdemping, som tørke [8,9]. Dessuten har disse tangene blitt utforsket som råmaterialer for produksjon av biodrivstoff (f.eks. metanol og bioetanol), for farmasøytisk, kosmetikk og tekstilindustri, for utvikling av bioplast og bioremediering [10–12]. Nylig ble arten, Polycladia myrica, utbredt over hele Persiabukta, Nord-Australia, Middelhavet, Stillehavet og tropene og subtropene i Indiahavet, også funnet å inneholde florotanniner med lovende UVR-beskyttende effekter, noe som gir dem stor interesse for kosmetiske bruksområder. [1. 3].
Fucaceae er en annen stor familie av Fucales. Dette er en bredt distribuert familie i tidevannsområdene på den nordlige halvkule, med seks taksa anerkjent: Ascophyllum, Fucus, Hesperophycus, Pelvetia, Pelvetiopsis og Silvetia, hvorav Ascophyllum, Fucus og Silvetia er de mest fremtredende slektene [14]. Disse slektene har tradisjonelt blitt brukt i menneskelig ernæring i flere tiår og, i senere tid, utforsket som potensielle ingredienser i funksjonell mat på grunn av deres rikdom på bioaktive forbindelser [15,16]. Fucus er vidt fordelt på tvers av regionene som dekkes av Fucaceae-familien og omfatter 10 aksepterte arter, hvorav F. vesiculosus er den mest kjente, mens Ascophyllum er en monotypisk slekt representert av Ascophyllum nodosum. F. vesiculosus er en god kilde til jod, en essensiell komponent i skjoldbruskkjertelhormoner, og har derfor blitt brukt i tradisjonell medisin for behandling av skjoldbrusk dysfunksjon, inkludert struma [17] og fedme [18]. I sin tur er A. nodosum den viktigste tangen som brukes som en kilde til industrielle og kommersielle plantebiostimulanter, siden den har vist seg å effektivt forbedre planteveksten, redusere noen abiotiske og biotiske påkjenninger og samtidig forbedre planteforsvaret ved regulering av molekylær, fysiologiske og biokjemiske prosesser [19,20]. På grunn av deres rikdom på bioaktive forbindelser, har Fucus- og Ascophyllum-ekstrakter et høyt potensial for å bli brukt som ernæringsmidler og i helsevesenet [21].

De gjenværende familiene til Fucales er mindre representative og utgjør mindre enn ti slekter: Himanthaliaceae, en monotypisk familie som omfatter bare én slekten Himanthalia og én art (H. elongate), er hjemmehørende i det nordøstlige Atlanterhavet, men kan også finnes i Nordsjøen og Østersjøen; Durvillaeaceae, også monotypisk (Durvillaea), finnes på den sørlige halvkule, hvor noen av artene brukes i tradisjonell mat [22]; Notheiaceae, en annen monotypisk familie (Notheia) med bare én kjent art (N. anomala) som er en obligat epifytt som ofte finnes på Hormosira-arter langs den sørlige Australia-kysten [23]. På sin side er Hormosira, en enkelt slekt som tilhører den monotypiske familien, Hormosiraceae, og som er hjemmehørende i det sørøstlige Australia og New Zealand, blant de vanligste tidevannstangene på steinete kyster som finnes i disse regionene [24]. Til slutt er Seirococcaceae en familie med fem slekter, med bare seks arter som utelukkende forekommer på den sørlige halvkule, og med en relativt begrenset utbredelse [25].
Fucales-medlemmer, som brunalger generelt, har metabolsk kapasitet til å biosyntetisere unike fenoliske forbindelser, kalt phlorotanniner (PTs). PT-er har vært under søkelyset for mange undersøkelser siden disse forbindelsene kan vise en rekke bioaktive egenskaper som gir dem et stort potensiale for bruk i forskjellige medisinsk-industrielle områder. Faktisk, på grunn av deres antimikrobielle og antioksidantegenskaper, finner PT-er anvendelser i matemballasjeindustrien, spesielt som konserveringsmidler i kjøttinnpakningsfilmer for forbedret holdbarhet og kjøttsensoriske egenskaper [26]. I kosmetikkindustrien er florotanniner ingredienser av økende interesse på grunn av deres antialdrings- og UV-beskyttende virkning [27]. Disse kan allerede finnes i sammensetningen av noen solkremprodukter, som lotioner [28] og pinner [29].
2. Metoder
Den nåværende gjennomgangen gir omfattende informasjon om de siste fremskrittene innen forskning på florotanniner, spesielt med fokus på Fucales-ordenen. All tilgjengelig informasjon ble samlet inn via et elektronisk søk i forskjellige vitenskapelige kilder, inkludert PubMed, ScienceDirect, Google Scholar, Scientific Electronic Library Online (SciELO), World Intellectual Property Organization (WIPO) og European Patent Office (EPO). Forfatterne valgte følgende nøkkelord for å finne relevante studier: "phlorotannins" "Fucales" "Sargaceae" "Fucaceae", "Durvillaeaceae", "Himanthaleaceae", "Hormosiraceae", "Notheiaceae, "Seirococcaceae", "Extraction", "HPLC ", "massespektrometri" og "NMR". Disse begrepene ble brukt alene eller i kombinasjon ved bruk av boolske operatorer ("og", "eller", "ikke")
3. Phlorotanniner og hovedklasser i Fucale
Kjemisk representerer PT-er en klasse dehydropolymerer av floroglucinol (PHG) monomere enheter (1,3,5-trihydroksybenzen), med et bredt spekter av molekylvekter (126 til 650 KDa), men oftest, molekylvekten til disse biopolymerene varierer fra 10 til 100 kDa, fordelt på typen kobling mellom monomerenheter: brensel (-CC- fenylbindinger), haller og kloretyl (-COC- eterbindinger forskjellig med deres vanlige sekvens av para- og orto-eterbindinger, ved tilstedeværelse av ytterligere OH-grupper), fukofloretoler (både -CC- og COC-bindinger), og Eckols/karmaloler (inneholder dibenzodioksinbindinger). Eckols skiller seg fra karmaloler ved deres vanligvis lave molekylvekt og ved tilstedeværelsen av en fenoksylsubstitusjon (figur 1).

Nesten 90 prosent av den totale mengden PT-er finnes i fri tilstand i physodes, det vil si cellecytoplasma, spesialiserte membranbundne vesikler, mens de resterende er i celleveggen, kompleksbundet med alginsyre ved kovalente ester- og hemiacetalbindinger, fungerer som en strukturell komponent for osmotisk trykkregulering [30]. De er anerkjent for å akkumulere opptil 25 prosent av tangens tørrvekt (DW), selv om nivåene deres er svært avhengige av algeartene og andre faktorer, inkludert geografisk vekstområde, alder, vevstype, saltholdighet i vannet, årstid, mengde næringsstoffer, lysintensitet og vanntemperatur [31–33]. For eksempel, blant de syv artene av Fucale, nemlig Pelvetia canaliculata, Fucus spiralis, Fucus serratus, Bifurcaria bifurcate, Himanthalia elongata, A. nodosum og F. vesiculosus, de to siste, kjent for å utvikle blandede belter i midttidevannssonen , er vist å inneholde det høyeste innholdet av fenoler (omtrent 5,80 prosent DW), mens lavere nivåer finnes hos arter som vokser i det nedre tidevannsnivået (4,3 prosent DW) og i det øvre nivået av tidevannssonen (3,9 prosent og 3,4 prosent DW for henholdsvis F. spiralis og P. canaliculata) [34].
Lopes et al. [35] rapporterte PT-variasjoner blant arter fra to Fucale-familier, nemlig i F. spiralis (Fucaceae), Cystoseira nodi caulis, Cystoseira tamariscifolia, Cystoseira usneoides og Sargassum vulgare (Sargassaceae), og konkluderte med at de maksimale nivåene av PT-er ble funnet i den første, som representerer omtrent 12 ganger de som ble funnet i S. vulgare. Mellomliggende og svært varierende mengder ble også påvist blant de tre Cystoseira-artene.
Påvirkningen av geografisk plassering og saltholdighet i vannet (positiv korrelasjon) på innholdet av PT i F. vesiculosus fra den artiske regionen ble tydelig vist av Obluchinskaya et al. [36], som registrerte nivåer mellom 72,4 og 158,1 mg PHG-ekvivalenter/g DW-alger, avhengig av prøvetakingssteder. Dessuten rapporterte Pedersen [37] at fenolinnholdet i A. nodosum og F. vesiculosus økte med økende saltholdighet i deres habitater. Ytterligere forskning bekreftet at nedgangen i saltholdighet samsvarte med den høye eksudasjonen av A. nodosum og F. vesiculosus fenoler i det omkringliggende vannet, noe som resulterte i en betydelig reduksjon av fenolinnholdet i disse to artene [38].
Sesongvariasjon av PT-er i Fucale har blitt screenet i forskjellige arter. Når man følger konsentrasjonene av PT i fem flerårige Sargassacean-arter fra kysten av Japanhavet, Kamiya et al. [39] registrerte store variasjoner gjennom året, men det ble observert et relativt likt fluktuasjonsmønster blant de fem artene, bestående av et maksimum om sommeren, etterfulgt av en nedgang mot vinteren og en økning i april. Selv om noen motstridende resultater er rapportert i litteraturen for Fucale-arter, slik som A. nodusum og Fucus, tyder de fleste data på at produksjonen av PT-er er maksimal om sommeren, og samsvarer med perioden med den største soleksponeringsperioden, og dermed enig med de UV-beskyttende funksjonene som påberopes for disse forbindelsene [34,40–42]. Interessant nok har noen forfattere også rapportert høyere produksjon av PTs i tang som vokser på høyere breddegrader, hvor vanntemperaturene har en tendens til å være lavere, i stedet for på lavere breddegrader, hvor vanntemperaturene er mer tempererte. Faktisk ble arten, Durvillaea antarctica, fra Sørøst-Stillehavet, funnet å inneholde betydelig høyere florotanninnivåer når de ble samlet på høyere breddegrader (nærmere Sydpolen) enn de som ble samlet inn på midtre og lavere breddegrader (nærmere ekvator) [43 ]. Til dels kan det faktum at denne arten er mer tilpasset subantarktiske områder og sterke bølgekrefter forklare slike observasjoner, siden disse kan være en viktig faktor for å stimulere syntesen av strukturelle funksjons-PT-er i stedet for UV-beskyttende, selv om dette ikke var vurdert av forfatterne.

Det er verdt å merke seg at de nevnte variablene akkumuleres med endringer i graden av florotannin-polymerisering, som også er sterkt påvirket av algearter og biotiske og abiotiske restriksjoner, noe som ytterligere øker det strukturelle mangfoldet av PT-er og gjør belysningen vanskelig. De fleste publiserte data rapporterte bare totale PT-nivåer blant makroalgeprøver, i stedet for å belyse forskjeller i profilene deres. Når det gjelder Fucales, var analysen av sammensetningen av PT-er hovedsakelig begrenset til familiene Fucaceae og Sargassaceae, spesielt slektene Fucus, Ascophyllum og Cystoseira [44–47].
I Fucaceae er F. vesiculosus den desidert mest studerte arten av PT-er. Blant annet avslørte UHPLC-DAD-ESI-MSn-analysen, utført av vår gruppe på etylacetatfraksjonen av et hydroacetonekstrakt oppnådd fra denne algearten, tilstedeværelsen av vanlige brensler, fukofloretoler, haller, sammen med flere andre PTs-derivater med varierende grad av polymerisasjon, fra 3 til 22 floroglucinolenheter. Dessuten er mulige nye PT-er, inkludert fucofurodiphlorethol, fucofurotriphlorethol og fucofuropentaphlorethol, foreløpig identifisert i denne arten [48].
Spesielt ved analyse av PT-anrikede fraksjoner av vandige og hydroetanoliske ekstrakter av tre makroalger av UPLC-MS, antydet Tierney og medarbeidere [45] at A. nodosum og P. canaliculata inneholdt hovedsakelig større PT-er (polymerisasjonsgrad (DP) på 6 –13 monomerer), sammenlignet med F. spiralis (DP på 4–6 monomerer). Kompleksiteten til PTs bestanddeler ble også referert til for Sargassaceae, spesielt Sargassum-slekten. I samsvar med annet arbeid med fokus på Sargassum-arten, har Li et al. [49] rapporterte overvekt av fulltype florotanniner i en PTs-rik fraksjon av S. fusiforme (DP 2–10 monomerer), og påvisning av andre relevante forbindelser, spesielt floretoler og fukofloretoler med varierende grad av polymerisasjon (DP 2– 11 monomerer); de rapporterte også om nyoppdagede Eckols og karmalolderivater. Generelt identifiserer forfatterne mange utfordringer i den strukturelle belysningen av PT-er, som hindrer etableringen av forhold mellom sammensetningen av PT-er og bioaktiviteten til ekstraktet og følgelig full implementering av disse naturressursene av industrien. Derfor er en samlet innsats fra algesamfunnets side for å utvikle effektive og standardmetoder for analyse av PT-er avgjørende.
4. Utvinningsprosesser og patenter
Florotanniner, som tanniner generelt, har fortrinnsvis blitt ekstrahert ved bruk av fast-væske-ekstraksjon (SLE) med hydroacetoniske blandinger, selv om andre løsningsmidler har vært forsøkt. Tilsvarende, når man sammenligner forskjellige ekstraksjonsløsninger, Wang et al. [50] oppnådde høyere effektivitet ved å ekstrahere PT-er fra F. vesiculousus med hydrokodon (70 prosent) i stedet for hydrometanol, hydroetanolisk, hydroksyetylacetat eller vann (ved 20 ◦C eller 70 ◦C), med totalt 393 mg PGE/ g ekstrakt (78,6 mg PGE-ekvivalenter/g DW-alger), selv om det høyeste ekstraksjonsutbyttet ble oppnådd i vannekstrakter. I sin tur, for å optimalisere utvinningen av PT fra samme art, Catarino et al. [48] testet nylig forskjellige ekstraksjonsforhold og konkluderte med at ekstraksjon med 67 prosent aceton (v/v), et forhold mellom løsemiddel og fast stoff på 70 ml/g og en temperatur på 25 ◦C ga det høyeste ekstraksjonsutbyttet (28 prosent). Dette ligner på den forrige studien, men med et lavere innhold av totalt florotannin (10,7 mg PGE/g ekstrakt), noe som fremhever variasjonen mellom algeprøver. Nylig ble det utviklet naturlige dypeutektiske løsningsmidler (NADES), bestående av blandinger, med forskjellige proporsjoner av kolinklorid, melkesyre, eplesyre, betain, glukose og glyserin [51]. Selv om det var en SLE-ekstraksjon, kan det betraktes som en utvikling mot grønnere metoder på grunn av løsemidlet som ble brukt. Dessuten fant forfatterne at bruk av vannløsninger av den tilberedte NADES kan forbedre ekstraksjonsutbyttet av PT fra algene, F. vesiculosus og A. nodosum, og oppnå verdier som ligner på de som oppnås med de vanligste organiske løsningsmidlene [51].
Mer effektive og miljøvennlige ekstraksjonsprosedyrer, inkludert mikrobølgeassistert ekstraksjon (MAE), ultralydassistert ekstraksjon (UAE), trykksatt løsemiddelekstraksjon (PSE), superkritisk væskeekstraksjon (SFE) og enzymassistert ekstraksjon (EAE) har nylig dukket opp som alternative metoder til konvensjonelle SLE-ekstraksjoner ved bruk av organiske løsemidler. Alle disse nye teknikkene ble allerede brukt for å trekke ut forbindelser fra alger eller i det minste for å oppnå algeekstrakter anriket på noen forbindelser [52–54]. Så søknaden deres til PTs utvinning var forventet. Nylig har Meng et al. [55] gjennomgikk disse teknikkens anvendelse på PT-utvinning fra flere brune makroalger. Generelt hadde de inkluderte studiene som mål å oppnå rike ekstrakter for å evaluere deres biologiske aktiviteter; derfor var utvinningsmetodikken ikke hovedproblemet.

Likevel er det interessant å legge merke til at noen grupper endret sin ekstraksjonsmetodikk gjennom årene og fortsatt oppnådde ekstrakter rike på PT. Et av disse eksemplene er Valentão og medarbeidere som begynte å bruke en SLE-metodikk med en blanding av aceton: vann (7:3). Senere brukte den samme gruppen UAE-teknikken for å få PTs-rike ekstrakter fra flere Fucus-arter. Selv om forfatternes mål ikke var å sammenligne de to ekstraksjonsmetodene og mengdene rapportert i de samme tilfellene, men i forskjellige enheter, ser det ut til at UAE ikke forbedret PT-mengden i de studerte makroalgene [16,56]. Et annet eksempel som kan trekkes frem er Shikov og medarbeidere som brukte sine tidligere forberedte NADES for å trekke ut PT fra F. vesiculosus under UAE-forhold. Imidlertid ble ikke ekstraksjonsutbyttet bedre, sammenlignet med forfatternes tidligere data [51]. Det er verdt å nevne at ekstraksjonstiden ble redusert til 60 min, noe som er en fordel [57].
Med kun fokus på ekstraksjon av PT-er, synes det åpenbart at SFE, selv om det er svært effektivt i utvinning av andre metabolitter, ikke har vært mye brukt i ekstraksjon av PT-er [55]. EAE ser ut til å være en effektiv metodikk, men det er bare noen få rapporter [58], og kostnadene kan være en hindring for bruk i stor skala.
Få makroalgearter har blitt utsatt for forskjellige teknikker, noe som gjør det vanskelig å etablere en riktig sammenligning fordi mengden PT-er som trekkes ut avhenger av lokalisering og innsamlingstid [59,60]. For eksempel ble F. vesiculosus PT-er ekstrahert ved bruk av forskjellige prosenter av etanol og SLE [61], UAE [62] og PSE [63] teknikker. De rapporterte resultatene viste at etanolprosenten påvirket PT-innholdet, men det er også mulig å konkludere med at PSE var den mest effektive. En høyere mengde ble ekstrahert (3690 mg gallussyreekvivalenter/100 g DW tang) på bare 4,68 minutter, mens de andre teknikkene brukte henholdsvis 30 minutter og 24 timer for UAE og SLE, og mengder under 60 mg gallussyreekvivalenter/ 100 g DW tang. I tillegg ble MAE demonstrert å lykkes med å trekke ut PT-er i større mengder og med kortere ekstraksjonstid [31,64,65]. Denne teknikken ble også brukt i F. vesiculosus [66], men ytterligere studier er nødvendig i Fucales-arter.
Selv om bruken av ikke-konvensjonelle ekstraksjonsmetoder fortsatt er mangelvare, kan det gjøres noen vurderinger angående bruken av dem. MAE, UAE og PSE krever kortere utvinningstider, og følgelig lavere energiforbruk. Imidlertid kan de forårsake nedbrytning hvis høye temperaturer nås. De kan være egnet for storskala produksjon, men kostnadene er relativt høye. Naturligvis er SLE den mer tilgjengelige og rimeligere teknikken å bruke i stor skala; Dessverre involverer det også løsemidler som er mindre miljøvennlige.
Tabell 1 oppsummerer distinkte metoder beskrevet i patentlitteraturen for utvinning av PT-er fra Fucales, og figur 2 viser fordelingen av antall patenter per år og geografisk dekning. Siden asiatiske land har en lang tradisjon for å bruke tang og deres avledede produkter i mat og kosmetikk, er det ikke overraskende å finne patenterte prosesser for utvinning av PT fra tang registrert i Asia.

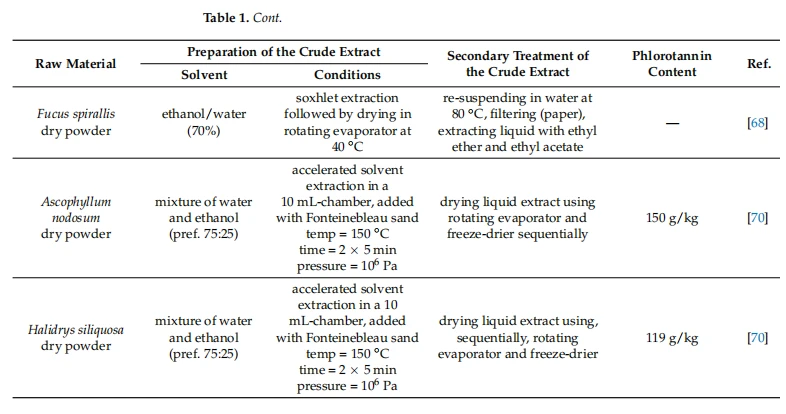

Samtidig er noen europeiske og verdenspatenter tilgjengelige, noe som viser den økende interessen for bruken av PT-er. Når det gjelder ekstraksjonsprosessene i seg selv, er det verdt å merke seg at bruken av SLE-prosedyrer er basert på løsemidler som er trygge å bruke på mennesker, som vann, glyserin og hydroetanoliske blandinger. Begrunnelsen bak bruken av slike løsemidler er knyttet til den tiltenkte bruken av ekstraktene: påståtte anvendelser av PT-rike ekstrakter inkluderer bleking, antioksidanter, anti-inflammatoriske og fuktighetsgivende midler i kosmetikk [67–70], og funksjonelle ingredienser i matvarer [71].
【For mer informasjon:george.deng@wecistanche.com / WhatApp:86 13632399501】