Del 1: Identifisering av dopaminerge nevroner som både kan etablere assosiativt minne og akutt terminere dets atferdsuttrykk
Mar 19, 2022
Ta kontakt med:joanna.jia@wecistanche.com/ WhatsApp: 008618081934791
Michael Schleyer, 1* Alice Weiglein, 1 Juliane Thoener, 1 Martin Strauch, 2 Volker Hartenstein, 3
Melisa Kantar Weigelt,1 Sarah Schuller,1 Timo Saumweber,1 Katharina Eichler,4,5,6 Astrid Rohwedder,4,7 Dorit Merhof,2 Marta Zlatic,5,7 Andreas S. Thum,4,8 og Bertram Gerber1,9 ,10*
1Leibniz institutt for nevrobiologi, Institutt for genetikk for læring ogHukommelse, 39118 Magdeburg, Tyskland, 2Institute of Imaging & Computer Vision, RWTH Aachen University, 52056 Aachen, Tyskland, 3Department of Molecular, Cell and Developmental Biology, University of California, Los Angeles, California 90095-1606, 4University of Konstanz, Institute for Biology, 78464 Konstanz, Tyskland, 5HHMI Janelia Research Campus, Ashburn, Virginia 20147, 6Institute of Neurobiology, University of Puerto Rico Medical Science Campus, Old San Juan, Puerto Rico 00901, 7Department of Zoology, University of Cambridge, Cambridge, CB{ {12}}EJ, Storbritannia, 8University Leipzig, Institute for Biology, 04103 Leipzig, Tyskland, 9Centre for Behavioral Brain Sciences, 39108 Magdeburg, Tyskland, og 10Institute for Biology, Otto von Guericke University Magdeburg, 39106 Magdeburg, Tyskland
En adaptiv overgang fra å utforske miljøet på jakt etter vitale ressurser til å utnytte disse ressursene når søket var vellykket, er viktig for alle dyr. Her studerer vi det nevronale kretsløpet som lar larve Drosophila melanogaster av begge kjønn forhandle denne leting-utnyttelsesovergangen. Vi gjør det ved å kombinere Pavlovsk kondisjonering med høyoppløselig atferdssporing, optogenetisk manipulasjon av individuelt identifiserte nevroner og EM-databaserte analyser av synaptisk organisering. Vi finner at optogenetisk aktivering av det dopaminerge nevronet DAN-i1 begge kan etablerehukommelseunder trening og akutt avslutte innlært søkeatferd i en påfølgende tilbakekallingstest. Aktiveringen etterlater imidlertid medfødt atferd upåvirket. Spesifikt kan DAN-i1-aktivering etablere assosiative minner med motsatt valens etter paret og uparret trening med lukt, og aktiveringen under tilbakekallingstesten kan avslutte søkeatferden som følge av begge disse minnene. Resultatene våre tyder videre på at DAN-i1-aktivering i sin atferdsmessige betydning ligner, men ikke er lik sukkerbelønning. Dendrogramanalyser av alle de synaptiske forbindelsene mellom DAN-i1 og dens to hovedmål, Kenyon-cellene, og soppkroppsutgangsneuronen MBON-i1, antyder videre at DAN-i1-signalene under trening og under tilbakekallingstesten kan leveres til henholdsvis Kenyon-cellene og MBON-i1 innenfor tidligere ukjente, lokalt avgrensede forgreningsstrukturer. Dette vil gi et elegant kretsmotiv for å avslutte søket etter vellykket gjennomføring.
Stikkord: dopamin; leting-utnyttelse; sopp kropp; optogenetikk; forsterkning; Søk

Cistanchekan forbedre hukommelsen
Betydningserklæring
I kampen for å overleve må dyr utforske miljøet sitt på jakt etter mat. Når maten først er funnet, er det imidlertid tilpasningsdyktig å prioritere å utnytte den fremfor å fortsette et søk som nå ville være like meningsløst som å lete etter brillene du har på deg. Denne avveiningen mellom leting og utnyttelse er viktig for dyr og mennesker, så vel som for tekniske søkeenheter. Vi undersøker hvilke av de eneste 10,000 nevronene i en fruktfluelarve som kan vippe balansen i denne avveiningen, og identifiserer et enkelt dopaminnevron kalt DAN-i1 som kan gjøre det. Gitt likhetene i dopaminnevronfunksjon på tvers av dyrekongen-
dom, kan dette reflektere et generelt prinsipp for hvordan søket avsluttes når det er vellykket.
Introduksjon
Et dyr som utforsker miljøet kan bruke tidligere erfaringer til å veilede sitt søken etter mat. Når mat blir funnet, er det imidlertid adaptivt å avslutte søket og i stedet utnytte matkilden. Her studerer vi kretsløpene som lar larven Drosophila melanogaster forhandle denne leting-utnyttelsesovergangen. Den numeriske enkelheten til larvehjernen, kombinert med cellespesifikk transgenuttrykk og kunnskap om dens synaptiske tilkobling (Pfeiffer et al., 2010; Li et al., 2014; Eichler et al., 2017; Saumweber et al., 2018; Eschbach et al., 2020), lar dette undersøkes på nivå med individuelt identifiserte nevroner.
D. melanogaster-larver assosierer lett lukt med en matbelønning (Scherer et al., 2003; Gerber og Hendel, 2006; Schipanski et al., 2008; Rohwedder et al., 2012; Apostolopoulou et al., 2014; Kudow et al. , 2017, 2019). Kritisk nok opphører lært atferd basert på disse lukt-mat-assosiasjonene hvis belønningen er tilstede under en tilbakekallingstest (fig. 1A). Lært atferd kan derfor sees på som et søk, som adaptivt avsluttes av det ettersøkte resultatet (dvs. av belønningen) (Schleyer et al., 2011, 2013, 2015a). Medfødt luktatferd påvirkes ikke på samme måte (Fig. 1B), noe som tyder på at slik medfødt atferd er organisert på en reflekslignende måte (Schleyer et al., 2011, 2013, 2015a,b). Dermed kan naturlige belønninger indusere to effekter: under treningen gir de et belønningssignal som kan assosieres med signaler som i ettertid veileder belønningssøk; og under tilbakekallingstesten kan de avslutte dette innlærte søket akutt, og forhindre at dyrene driver bort fra en ressurs når den først er funnet. Denne overgangen reflekterer altså en endring i strategien for å oppnå en belønning, ikke en endring i motivasjon (dvs. ikke tap av interesse for belønningen).
Både virvelløse dyr og virvelløse dyr, dopaminerge nevroner (DAN) gir forsterkende signaler for assosiativ læring (Waddell, 2013; Schultz, 2015; Kaun og Rothenfluh, 2017). I D. melanogaster formidler distinkte sett med DAN-er henholdsvis appetittfull og aversiv forsterkning (larver: Schroll et al., 2006; Rohwedder et al., 2016; Saumweber et al., 2018; Eschbach et al., 2020; adult flies Schwaerzel et al., 2003; Claridge-Chang et al., 2009; Liu et al., 2012) (et lignende scenario kan også være nye virvelløse dyr: Lammel et al., 2012; Groessl et al., 2018; Menegas et al. al., 2018). Ved å etablere en avdelingsstruktur, skjærer disse DAN-ene de parallelle fibrene til Kenyon-celler (KCs), de iboende nevronene til det høyeste ordens luktsenteret til insektene, kalt soppkroppen. Med respekt for den samme kompartmentstrukturen, samler soppkroppsutgangsnevroner (MBONs) informasjon over KC-ene og sender den mot efferente kretsløp (se fig. 2A–D) (larver: Selcho et al., 2009; Pauls et al., 2010 ; Eichler et al., 2017; Saumweber et al., 2018; Eschbach et al., 2020; voksne: Sejourne et al., 2011; Places et al., 2013; Aso et al., 2014a,b; Oswald og Waddell , 2015; Takemura et al., 2017). Spesielt avslørte en nylig elektronmikroskoprekonstruksjon at DAN-er har to hovedmål: KC-ene og MBON-ene (se fig. 2B) (larver: Eichler et al., 2017; voksne: Takemura et al., 2017).
Hos larve D. melanogaster kan aktivering av DAN fra pPAM-klyngen utøve en givende effekt under trening (Rohwedder et al., 2016). Fra de fire dagene av denne klyngen kan to individuelt gi en slik givende effekt (DAN-h1 og DAN-i1) (Saumweber et al., 2018). Her valgte vi å fokusere

Figur 1. Sukker kan gi belønnings- og søkeavslutningssignaler. En larver ble trent slik at en lukt ble presentert enten paret eller uparet med sukker. I en påfølgende tilbakekallingstest ble de analysert for deres luktpreferanse, enten i fravær eller i nærvær av sukkeret (skisse mot toppen). Testing i fravær av sukker avslørte assosiativ lukthukommelse, kvantifisert som en positiv PI. Det atferdsmessige uttrykket for dettehukommelseble avsluttet i nærvær av sukker. Dermed kan sukker gi to typer signaler: under treningen gir det et belønningssignal som kan assosieres med lukten for å lede dyrene senere i belønningssøket; og under tilbakekallingstesten gir sukkeret som den ettersøkte belønningen et signal om å avslutte dette lærte søket. Eksempelstørrelser: N=29, N =28. B, larver ble testet for medfødt luktpreferanse, enten i fravær eller i nærvær av sukker (skisse mot toppen). Sukker påvirket ikke medfødt luktatferd, noe som tyder på dens reflekslignende organisering. Prøvestørrelser: N=20 hver. Ulike bokstaver over boksplottene indikerer parvis betydning (Mann–Whitney U-test, p, 0.05, korrigert i henhold til Bonferroni-Holm). *Betydning fra null (ett-utvalgs tegntest, p, 0,05, korrigert i henhold til Bonferroni-Holm). ns, ikke signifikant. Alle statistiske tester og deres resultater rapporteres sammen med kildedataene i utvidet datafigur 1-1. For luktpreferanseverdiene som ligger til grunn for PI-skårene for dette eksperimentet, se figur 9A.

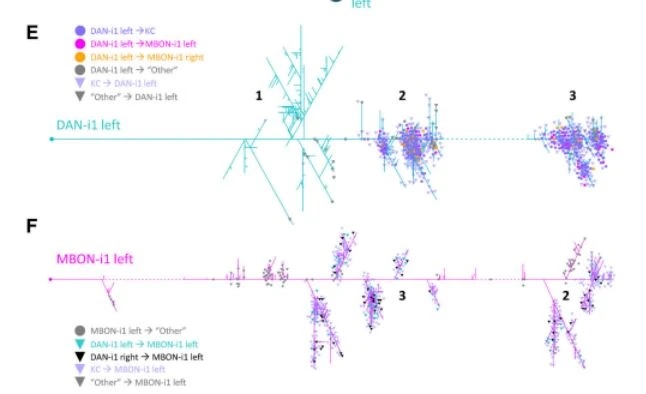
Figur 2. Kretsløpet til DAN-KC-MBON-matrisen. Mediallappens chiasme. Luktinformasjon behandles for å indusere en medfødt tilnærming, så vel som mot begerregionen til soppkroppens KCs (lilla; vist fullstendig er ett eksempel KC på høyre side). Informasjon om smaksbelønning blir likeledes behandlet for å lede medfødt atferd, så vel som via for det meste aminergiske modulerende nevroner (vist er DAN-i1, turkis/svart) mot individuelle rom i soppkroppslappene (på venstre side er rom indikert). Hvert av de fire rommene i mediallappen (hk) mottar input fra en enkelt DAN som også innerverer det samme rommet i den kontralaterale halvkulen. MBON-ene til mediallappen trekker fra enkeltrom, typisk fra begge halvkuler (vist er MBON-i1, magenta/gul), og leverer sin utgang, i konfigurasjoner som er forskjellige mellom rom, over halvkuleskillet. Samlet er MBON-ene ansvarlige forhukommelse-basert søkeatferd. Data er basert på Eichler et al. (2017) og Saumweber et al. (2018). B, DAN-KC-MBON-matrisen i i-rommet. DAN-i1 og de fleste KC-er etablerer gjensidige kjemiske synapser, og både DAN-i1 og KC-er gir utdata til MBON-i1. For enkelhets skyld er kun synapser med venstre DAN-i1 og MBON-i1 nevroner vist i detalj. Den samme tilkoblingen finnes i de fleste, om ikke alle, andre rom (Eichler et al., 2017; Saumweber et al., 2018). C, DAN-i1 (turkis) mottar input fra utsiden av soppkroppen (mørkegrå) ipsilateralt til cellekroppen (region merket 1) og innerverer deretter i-rommet i begge halvkuler (merket 2 og 3). MBON-i1 (magenta) krysser midtlinjen to ganger; den mottar input i i-rommet på begge halvkuler og gir utdata i områder ved siden av soppkroppen på begge halvkuler. D, Samme som i C, men i en litt skråstilt visning, som viser skjelettrekonstruksjoner av venstre DAN-i1 og MBON-i1 nevroner og ett eksempel KC (svart). Data er basert på Eichler et al. (2017). E, Dendrogram av venstre DAN-i1-nevron. Fargede prikker representerer utgangssynapser fra DAN-i1. Trekanter representerer inngangssynapser til DAN-i1. Farger representerer partnerneuronen til den respektive synapsen. Alle andre synapser i soppkroppen er merket "Annet". Ikke vist er synapser som DAN-i1 danner med nevroner utenfor soppkroppen, spesielt i region 1 (Eschbach et al., 2020). Stiplede linjer indikerer områder der nevronet krysser midtlinjen i hjernen. F, Samme som i E, men for venstre MBON-i1-nevron. Ikke vist er synapser som MBON-i1 danner med nevroner utenfor soppkroppen. For høyoppløselige versjoner av DAN-i1- og MBON-i1-nevronene på begge halvkuler, så vel som alle modne KC-er, se henholdsvis utvidede datafigurer 2-1, 2-2 og 2-3 .
på DAN-i1 fordi det tidligere har blitt analysert mer detaljert (Saumweber et al., 2018) og fordi det gir en mer robust givende effekt enn DAN-h1 (Saumweber et al., 2018; upubliserte data). Vi gir først en detaljert beskrivelse av det romlige arrangementet av alle synapser mellom DAN-i1 og begge dens viktigste produksjonspartnere, MBON-i1 og KC-ene. Deretter spør vi om optogenetisk aktivering av DAN-i1 kan formidle ikke bare et belønningssignal under trening, men også et signal om å akutt avslutte lært å søke etter belønningen under tilbakekallingstesten.

cistanche kroppsbygging
Materialer og metoder
Eksperimentell modell og emnedetaljer. Larver av begge kjønn i fødestadiet i tredje stadium (D. melanogaster), i alderen 5 dager etter egglegging, ble brukt hele veien. Fluer ble holdt på standard medium, i massekulturen ved 25 grader, 60 prosent -70 prosent relativ fuktighet og en 12/12 timers lys/mørke syklus. Vi tok en skje med matmedium fra et matglass, valgte tilfeldig ut ønsket antall larver, skyllte dem kort i vann fra springen og startet eksperimentet.
Vi brukte transgene larver for å uttrykke den ChR2-XXL lys-gatede ionekanalen i DAN-er. For dette formål ble effektorstammen UAS-ChR2-XXL (Dawydow et al., 2014) (vennligst levert av R. Kittel, University Leipzig), krysset til en av to driverstammer: enten 58E{{6 }}Gal4 (Pfeiffer et al., 2008; Liu et al., 2012; Rohwedder et al., 2016) (Bloomington Stock Center nr. 41347) eller split-Gal4-driverstammen SS00864 (Eichler et al., 2017; Saumweber et al., 2018) for å få dobbelt-heterozygot avkom. En sjåfør kontrollerer sjåførstammene ble krysset til en lokal kopi av w1118 (Bloomington Stock Center #3605, #5905, #6326). Som effektorkontroller ble en stamme som bærer landingsstedene brukt for Gal4 (attP2) eller split-Gal4 (attP40/attP2), men uten et Gal4-domene satt inn ("tomt") (Pfeiffer et al., 2010), krysset til UAS- ChR2-XXL. Vi bekreftet uttrykksmønsteret til 58E02 og SS00864 ved å krysse dem til pJFRC-10xUAS-IVS-mCD8::GFP (Pfeiffer et al., 2010) (Bloomington Stock Center #32185). Fordi ChR2-XXL er følsom nok til å aktiveres av dagslys (ikke vist), ble fluer hevet opp i hetteglass som stadig ble mørkere av svart papp. For eksperimentet presentert i figur 8E ble UAS-ChR2 (Schroll et al., 2006) krysset til 58E02-Gal4.
Eksperimentelt oppsett. For atferdseksperimenter ble larvene trent i petriskåler med 9 cm indre diameter og testet i petriskåler med enten 9 eller 15 cm indre diameter (begge fra Sarstedt) som nevnt i figurlegendene, i alle tilfeller fylt med 1 prosent agarose (elektroforesegrad). ; Roth). I likhet med lukten brukte vi n-amylacetat fortynnet 1:20 i parafinolje (AM; CAS: 628-63-7; Merck), og i noen tilfeller i tillegg ufortynnet 1-oktanol (OCT; CAS: {{ 9}}; Merck).
Eksperimenter ble utført inne i en 43 43 73cm omsluttende boks utstyrt med et spesiallaget lysbord med en 24 12 LED-array (470nm; Solarox) og en 6-mm tykk diffusjonsplate av frostet pleksiglass på toppen for å sikre jevnt blått lys for ChR2-XXL-aktivering (120mW/cm2). Petriskåler ble plassert direkte på toppen av diffusjonsplaten. Petriskålene var omgitt av en diffusjonsring av polyetylen; bak diffusjonsringen ble 30 infrarøde lysdioder (850nm; Solarox) montert for å gi belysning som var usynlig for larvene, men tillot registrering og sporing av oppførselen deres for offline-analyse. For dette formål ble et kamera (Basler acA204090umNIR; Basler) utstyrt med et infrarødt passfilter plassert over petriskålen. For ytterligere detaljer angående det eksperimentelle oppsettet, se Saumweber et al. (2018).

cistanche kroppsbygging
Assosiativ lukt-sukker læring. Læringseksperimenter fulgte etablerte protokoller (Michels et al., 2017). Luktbeholdere ble klargjort ved å tilsette 10 ml luktstoff til spesiallagde teflonbeholdere (5 mm indre diameter med et lokk perforert med 7 hull på 0,5 mm diameter hver). Petriskåler ble dekket med modifiserte lokk perforert i midten med 15 hull med 1 mm diameter hver for å forbedre luftingen.
For lukt-sukkertrening ble 20 larver plassert i midten av en petriskål fylt med agarose som inneholdt 2mol/L D-fruktose (CAS: 57-48-7; Roth) som belønning (1) og utstyrt med to lukt beholdere på motsatte sider, begge fylt med AM (AM1). Etter 2,5 minutter ble larvene fortrengt over på en fersk petriskål med vanlig, smakløs agarose, utstyrt med to tomme beholdere (EM), hvor de også brukte 2,5 minutter. Tre slike "parrede" treningssykluser ble utført, i hvert tilfelle med ferske petriskåler. I halvparten av tilfellene startet treningen med belønningsholdige petriskåler som angitt (AM1/EM), mens i den andre halvparten av tilfellene var rekkefølgen reversert (EM/AM1). For hver kohort av larver trent AM1/EM (eller EM/AM1), ble en andre kohort trent gjensidig, det vil si ved "uparrede" presentasjoner av lukt og belønning (henholdsvis AM/EM1 eller EM1/AM).
Etter trening ble larvene overført til midten av en test-petriskål og testet for luktpreferanse. Det er viktig at tilbakekallingstesten ble utført enten på en vanlig petriskål for å vurderehukommelse-basert søkeatferd eller på en belønningsholdig petriskål for å avgjøre om tilstedeværelsen av belønning avsluttethukommelse-basert søk. I begge tilfeller var den ene siden av test-petriskålen utstyrt med en AM-beholder og den andre siden med en EM-beholder. Antall larver på hver side ble bestemt fra kamerabildet 3 minutter etter at testen hadde startet. Fra disse tallene ble en luktpreferanse beregnet som følger:

Dermed kan PI-verdier variere fra 1 til 1, med positive verdier som indikerer at larvene foretrakk lukten mer etter paret enn uparet trening. Positive PI-verdier indikerer følgelig en appetittiv assosiativhukommelsedet tolkes best somhukommelse-basert søkeatferd. Negative PI-verdier indikerer derimot aversiv assosiativhukommelse.
Assosiativ læring ved optogenetisk DAN-aktivering. For optogenetiske eksperimenter ble trening og test utført analogt. Imidlertid ble alle petriskåler fylt med vanlig agarose (dvs. ingen givende smaksstoffer ble brukt). I stedet, for paret trening, ble AM sammenkoblet med kontinuerlig blålysstimulering for å aktivere enten 58E02-DAN eller 864- DAN i 2,5 minutter, etterfulgt av 2,5 minutter med mørke uten lukt (AM1/EM). For uparret trening skjedde luktpresentasjon og lysstimulering separat (AM/EM1). For eksperimentet presentert i figur 8E ble lukt og lys presentert i 5 minutter hver; det eksperimentet fulgte ellers prosedyrene beskrevet av Rohwedder et al. (2016).
Etter tre slike treningssykluser ble tilbakekallingstesten utført, og luktpreferanse og PI ble beregnet som beskrevet. Kritisk nok ble tilbakekallingstesten utført enten uten blålysaktivering for å avgjøre om DAN-ene formidler et belønningssignal under trening eller med blålysaktivering for å avgjøre om DAN-ene i tillegg kan formidle et signal for å avslutte søket.
Variasjoner av denne protokollen er angitt i figurforklaringene.
Medfødt luktatferd. Luktbeholdere og petriskåler ble tilberedt som beskrevet ovenfor. Kohorter på 20 larver ble samlet opp fra hetteglasset, kort vasket i vann fra springen og plassert på en petriskål med en AM-beholder på den ene siden og en tom beholder på den andre siden. Etter 3 minutter ble den medfødte luktpreferansen bestemt i henhold til ligning 1. Denne preferansetesten ble utført enten i fravær eller i nærvær av sukker, eller i fravær eller i nærvær av blått lysaktivering, for å bestemme om disse testbetingelsene endrer seg medfødt luktatferd.
Analyse av atferdsmodulasjoner etter trening med 864-DAN-aktivering. Larveadferd ble videosporet og analysert som beskrevet i detalj av Paisios et al. (2017). Kort fortalt ble to aspekter ved larvekjemotaksi analysert. Først ble moduleringen av hodekastrat (HC per sekund) (HC/s) beregnet som følger:

I dette målet beskriver kursvinkelen (HA) orienteringen til dyrets hode i forhold til lukten, med absolutte kursvinkler (abs (HA)) på for eksempel 0 grader eller 180 grader , som indikerer at lukten er henholdsvis foran eller bak på larvene. Dette tiltaket gir dermed positive skårer for attraksjonen (dvs. når HC retter larvene mot i stedet for bort fra luktmålet), mens det gir negative skårer for aversjon.
Immunhistokjemi. Larvehjerner ble dissekert i Ca{0}}fri saltløsning og fiksert i Bouins løsning fortynnet 1:2 med Ca21-fri saltvannsløsning i 7 minutter. Tre vasketrinn (hver 10 min) i PBST (0,3 prosent Triton-X 100 i PBS) ble fulgt av inkubasjon med de primære antistoffene over natten ved 4 grader. Etter tre vask (hver 10 min) i PBS ble vevet inkubert med de sekundære antistoffene i 1 time ved romtemperatur. Etter tre siste vasketrinn i PBS (hver 10 min), ble prøver montert i Vectashield (Vector Laboratories). Preparatene ble undersøkt under et DM 6000 CS konfokalt mikroskop (Leica Microsystems).

cistanche kroppsbygging
Som antistoffer brukte vi enten monoklonalt anti-FASII museantistoff (DSHB, fortynnet 1:50 i blokkeringsløsning som inneholdt 4 prosent normalt geiteserum) og anti-GFP kaninantistoff (A11122, Invitrogen, fortynnet 1:1{ {28}}00 i blokkeringsløsning som inneholder 4 prosent normalt geiteserum) som primære antistoffer og Cy3 anti-muse-antistoff (715-165-150, Jackson ImmunoResearch Laboratories) og Alexa-488 anti-kanin antistoff (A11034, Invitrogen), begge fortynnet 1:200 i PBS, som sekundære antistoffer; eller vi brukte monoklonalt anti-ChR2 museantistoff (ProGen Biotechnik) fortynnet 1:100 i 0,3 prosent PBST som primært antistoff, Cy3 anti-mus antistoff (715-165-150, Jackson ImmunoResearch Laboratories), fortynnet 1:300 i 0,3 prosent PBST , som sekundært antistoff, og Alexa-488 anti-HRP (Jackson ImmunoResearch Laboratories), fortynnet 1:300 i 0,3 prosent PBST, for motfarging.