DEL TO Cistanche Deserticola polysakkarid induserer melanogenese i melanocytter og reduserer oksidativt stress
Mar 07, 2022
Ta kontakt med:joanna.jia@wecistanche.com

4|DISKUSJON OG KONKLUSJONER
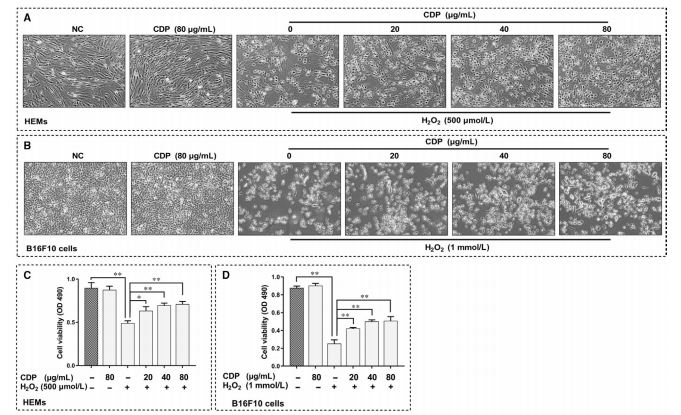
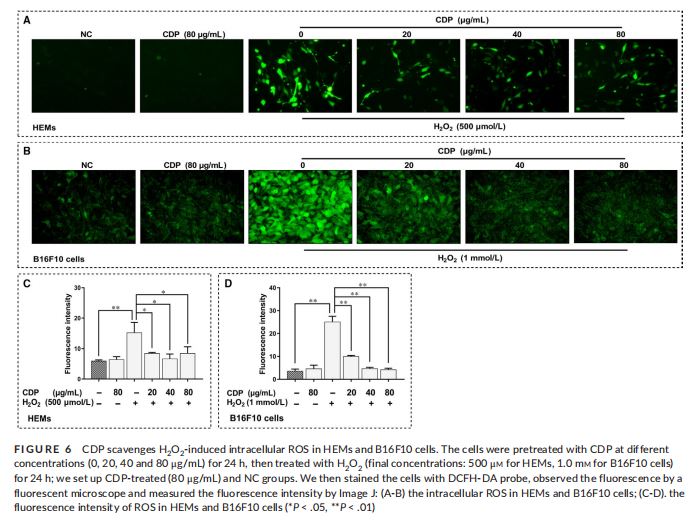
I denne studien undersøkte vi rollen til CDP i HEM-er og B16F10-celler. For første gang fant viCistancheat CDP kunne fremme melanogenese i melanocytter og fremme pigmentering i sebrafisk. Et påfølgende eksperiment viste at MAPK-signalveien ble aktivert under CDP-behandling. Vi undersøkte videre dens rolle i oksidativt stress og fant at CDP kunne svekke H2O2--indusert cytotoksisitet og apoptose i melanocytter; I mellomtiden kan CDP aktivere NRF2/HO-1-antioksidantveien og fjerne intracellulær ROS under forhold med oksidativt stress.
cistancheeren tyrosinasehemmer
Mitogen-aktivert proteinkinase er en viktig vei involvert iCistanchei reguleringen av MITF, en nøkkeltranskripsjonsfaktor som fremmer ekspresjonen av melanogenese-relaterte gener og deretter påvirker melaninsyntese og transport.26,27 I vår studie ble aktiveringen av ERK, JNK og p38 i melanocytter økt betydelig. etter CDP-behandling; i mellomtiden ble uttrykkene til MITF/p-MITF og MITF-drevet TYR, TRP1, TRP2 og RAB27A oppregulert tilsvarende. Dermed foreslår vi at CDP kan fremme melanogenese ved å aktivere MAPK-veien, men hvordan CDP aktiverer MAPK-er gjenstårCistancheukjent. Ifølge nyere studier er toll-lignende reseptor 4 (TLR4) sterkt uttrykt i melanocytter og involvert i melanogenese.28,29 TLR4 er et viktig transmembranprotein som spesifikt kan binde lipopolysakkarid (LPS)30; studier rapporterte at LPS kan indusere melanogenese.29 Interessant nok har flere polysakkarider ekstrahert fra planter eller sopp rapportert aktiverte TLRer og nedstrøms signalveier som MAPK og kjernefysisk faktor kappa beta (NF-κB).31,32 Derfor mistenker vi at CDP kan være gjenkjent og bundet av TLR-er, aktiverer deretter nedstrøms MAPK-signalveien og fremmer melanogenese. Videre er nukleotidbindende oligomeriseringsdomene-lignende reseptorer (NLR) kjent for å gjenkjenne intracellulære ligander og drive aktiveringen av MAPK og NF-KB signalveier.33,34 Som rapportert kan polysakkarider ekstrahert fra Ganoderma lucidum og Astragalus komme inn i celler og påvirke NLRs.35,36 Dermed er det mulig at CDP kan gå inn i melanocytter og regulere MAPK-signalveien via NLR. Det er imidlertid behov for ytterligere studier for å bekrefte denne hypotesen.
Noen studier til dags dato rapporterte bruk av urtepolysakkarider i melanogenese for å hemme melaninproduksjon.37,38 I denne studien fremmet CDP imidlertid melanogenese i
melanocytter, og denne effekten ble ytterligere bekreftet etter sammenligning med -MSH. CDP er også et slags polysakkarid utvunnet fra urter, vi mistenker at den motsatte effekten av CDP kan ha sammenheng med de strukturelle forskjellene mellom CDP og andre polysakkarider. Polysakkarider dannes ved polymerisering av monosakkarider, men varierer i monosakkaridtype, monosakkaridsammensetning, glykosidbinding, sidekjedestruktur og molekylvekt39,40; disse faktorene antas å bestemme deres biologiske funksjoner.41 Eksisterende studier har foreslått strukturen til CDP og antydet at CDP-strukturen deretter påvirker funksjonen.42 Det er derfor behov for mer bevis for å forstå CDP fullt ut og bekrefte vår hypotese.
Melanogenese er en viktig beskyttende mekanisme for motstandCistancheultrafiolett skade og opprettholde kroppshomeostase43; samtidig utsettes melanocytter lett for ugunstige miljøer som ROS-overbelastning.11 Det er kjent at ROS deltar i å fremme melanogenese, en av mekanismene er aktivering av MAPK-er.44 Men studier avslørte også at denne effekten kun eksisterer innenfor en viss ROS. nivå, mens ROS-overbelastning svekker melanogenesen betydelig.45 Forholdet mellom ROS, MAPK og melanogenese er variabel under forskjellige forhold, derfor er balansen mellom pro- og antioksidantsystemer åpenbart viktig. Ved depigmenteringssykdommer som vitiligo vil et ubalansert antioksidantsystem og ukontrollerbar ROS-overbelastning skade melanocytter og redusere cellelevedyktighet.11,46 I denne studien brukte vi forskjellige konsentrasjoner av H2O2 for å simulere ROS-overbelastningen i cellene, og HEM viste dårligere toleranse overfor H2O2 enn B16F10 celler. Når melanocytter ble utsatt for H2O2-behandling, ble deres levedyktighet og apoptosehastighet verre, men

Fenyletanoid Glykosideri cistanche kananti-inflammatorisk
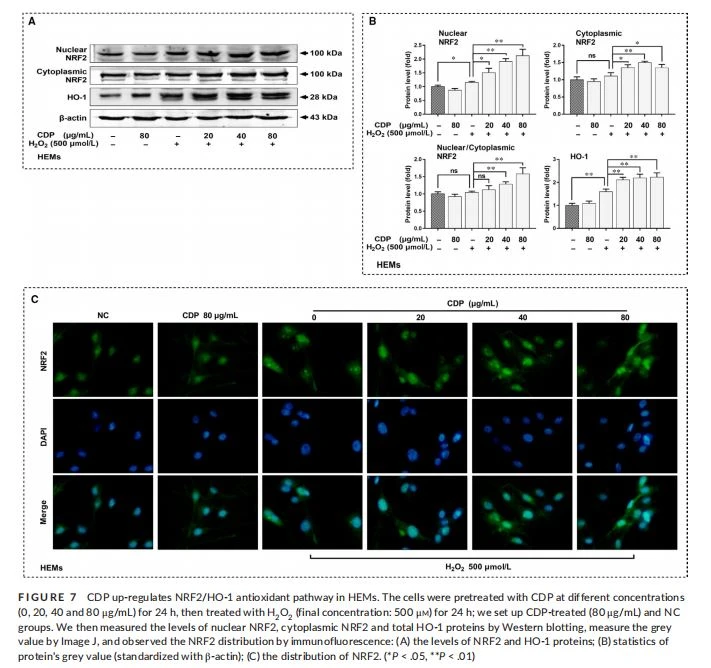
CDP-forbehandling kan delvis snu trenden. Samtidig ble ROS ryddet opp. Som rapportert er aktivering av NRF2/ARE-antioksidasjonsveier en viktig metode for ROS-rensing i hudceller.14 I våre eksperimenter ble proteinnivåene av NRF2 og HO-1 i melanocytter oppregulert etter H2O2-behandling uten CDP; dette betyr at H2O2-indusert oksidativt stress kan aktivere NRF2/HO-1-banen, men det er utilstrekkelig for å opprettholde en redoksbalanse og beskytte cellen mot skade. CDP-forbehandling forbedret imidlertid NRF2/HO-1-antioksidasjonsveien og gjenopprettet balansen. Derfor foreslår vi at CDP kan beskytte melanocytter mot oksidativ stressskade ved å aktivere NRF2/HO{14}}-antioksidasjonsveien og rense ROS.
Vi fant at CDP-behandling alene ikke har noen innvirkning på ROS eller NRF2/HO-1 i melanocytter. Dette resultatet antyder at CDP kan påvirke redoksbalansen under oksidativt stress, men ikke normale forhold. Dessuten er NRF2/HO-1-antioksidasjonsveien angivelig regulert av PI3K-, NF-κB- og MAPK-signalveiene.47,48 I vår studie var CDP i stand til å aktivere MAPK-signalveien. Det er mulig at CDP kan aktivere NRF2/HO-1-banen via oppregulerende MAPK-er. Som Slominski rapporterte, er melanocytter stresssensorer involvert i et regulatorisk nettverk, og deres funksjoner kan endres raskt som respons på miljøet.49 Vi foreslår at rollen til CDP påvirkes av melanocyttenes status, det kan fremme melanogenese uten å påvirke antioksidanten. system under normale forhold, men gjenoppretter redoksbalansen under forhold med oksidativt stress. Derfor kan melanocyttfunksjonen og overlevelsen opprettholdes på to forskjellige måter av CDP. CDP hjelper melanocytter å opprettholde homeostase, som også er en viktig funksjon av melanogenese.50,51
Som konklusjon kan CDP fremme melanogenesen til melanocytter
via aktivering av MAPK-signalveien. CDP kan forbedre melanocyttoverlevelsen ved å aktivere NRF2/HO-1 antioksidantveien og fjerne intracellulær ROS under forhold med oksidativt stress. Funnene våre er meningsfulle fordi de viser at CDP både kan fremme melanogenese og beskytte melanocytter mot oksidativ stressskade, som muligens er ansvarlig for melanocyttdysfunksjon og tap. Denne studiens funn indikerer at CDP kan være et nytt medikament i behandlingen av depigmentasjonssykdommer.

cistancheblekende effekt på huden tilantioksidasjon
TAKK
Dette arbeidet ble støttet av National Natural Science Foundation of China (nr. 81703101), New Xiangya Talent Projects of Third Xiangya Hospital of Central South University (nr. JY201623 og nr. 20170301), Natural Science Foundation of Hunan Province ( nr. 2018JJ3788 og nr. 2018JJ3793) og Project of Hunan helsekommisjon (nr. C2019173). Dr. Yibo Hu utførte hoveddelen av studien og skrev manuskriptet; Professor Jing Chen og Qinghai Zeng designet studien og ledet manuskriptskrivingen; Professor Jinhua Huang, Lihua Huang og Hong Xiang ga teknisk støtte og analyserte dataene; Dr. Yixiao Li, Ling Jiang, Yujie Ouyang, Yumeng Li, Lun Yang og Xiaojiao Zhao bidro til en del av eksperimentene.
INTERESSEKONFLIKT
Forfatterne bekrefter at det ikke er noen interessekonflikter.
ERKLÆRING AV DATA TILGJENGELIGHET
Dataene som støtter funnene i denne studien er tilgjengelig fra den tilsvarende forfatteren på rimelig forespørsel.
REFERANSER
1. Bleuel R, Eberlein B. Terapeutisk behandling av vitiligo. J Dtsch Dermatol Ges. 2018;16:1309-1313.
2. Taieb A, Meurant JM. Bør vi prioritere psykologiske intervensjoner i håndteringen av vitiligo? J Eur Acad Dermatol Venereol. 2018;32:2053-2054.
3. Picardo M, Dell'Anna ML, Ezzedine K, et al. Vitiligo. Nat Rev Dis Primere. 2015;1:15011.
4. Slominski A, Tobin DJ, Shibahara S, Wortsman J. Melaninpigmentering i pattedyrhud og dens hormonelle regulering. Physiol Rev. 2004;84:1155-1228.
5. Slominski A, Zmijewski MA, Pawelek J. L-tyrosine og L-dihydroxyphenylalanine som hormonlignende regulatorer av melanocyttfunksjoner. Pigment Cell Melanoma Res. 2012;25:14-27.
6. Spritz RA. Delte genetiske forhold som ligger til grunn for generalisert vitiligo og autoimmun skjoldbruskkjertelsykdom. Skjoldbruskkjertelen. 2010;20:745-754.
7. Lin X, Tang LY, Fu WW, Kang KF. Barndom vitiligo i Kina: kliniske profiler og immunologiske funn i 620 tilfeller. Am J Clin Dermatol. 2011;12:277-281.
8. Boehncke WH, Brembilla NC. Autoreaktive T-lymfocytter ved inflammatoriske hudsykdommer. Front Immunol. 2019;10:1198.
9. Iannella G, Greco A, Didona D, et al. Vitiligo: Patogenese, kliniske varianter og behandlingsmetoder. Autoimmun Rev. 2016;15:335-343.
10. Forrester SJ, Kikuchi DS, Hernandes MS, et al. Reaktive oksygenarter i metabolsk og inflammatorisk signalering. Circ Res. 2018;122:877-902.
11. Denat L, Kadekaro AL, Marrot L, et al. Melanocytter som anstiftere og ofre for oksidativt stress. J Invest Dermatol. 2014;134:1512-1518.
12. Qiu L, Song Z, Setaluri V. Oksidativt stress og vitiligo: Nrf2-ARE-signalforbindelsen. J Invest Dermatol. 2014;134:2074-2076.
13. Hayes JD, Dinkova-Kostova AT. Nrf2 regulatoriske nettverk gir et grensesnitt mellom redoks og mellomliggende metabolisme. Trender Biochem Sci. 2014;39:199-218.
14. Marrot L, Jones C, Perez P, Meunier JR. Betydningen av Nrf2-banen i (foto)-oksidativ stressrespons i melanocytter og keratinocytter i den menneskelige epidermis. Pigment Cell Melanoma Res. 2008;21:79-88.
15. van Geel N, Speeckaert R, Mollet I, et al. In vivo vitiligo-induksjons- og terapimodell: en dobbeltblind, randomisert klinisk studie. Pigment Cell Melanoma Res. 2012;25:57-65.
16. Nicolaidou E, Antoniou C, Stratigos A, Katsambas AD. Smalbånd ultrafiolett B-lysbehandling og 308-nm excimer-laser i behandling av vitiligo: en gjennomgang. J Am Acad Dermatol. 2009;60:470-477.
17. Novak Z, Bonis B, Baltas E, et al. Xenonklorid ultrafiolett B-laser er mer effektiv til å behandle psoriasis og indusere T-celleapoptose enn smalbåndet ultrafiolett B. J Photochem Photobiol B Biol. 2002;67:32-38.
18. Xu P, Su S, Tan C, et al. Effekter av vandige ekstrakter av Eclipse herba, Polygoni multiflora radix preparator og Rehmanniae radix preparator på melanogenese og migrering av humane melanocytter. J Etnopharmacol. 2017;195:89-95.
19. Wang T, Zhang X, Xie W.Cistanche deserticolaYC Ma, "Desert ginseng": en anmeldelse. Am J Chin Med. 2012;40:1123-1141.
20. Guo Y, Cao L, Zhao Q, et al. Foreløpige karakteriseringer, antioksidanten og hepatoprotektiv aktivitet av polysakkarid fraCistanche deserticola. Int J Biol Macromol. 2016;93:678-685.
21. Cai RL, Yang MH, Shi Y, et al. Antifatigue aktivitet av fenylethanoid-rikt ekstrakt fraCistanche deserticola. Phytother Res. 2010;24:313-315.
22. Zhang H, Xiang Z, Duan X, et al. Antitumor og anti-inflammatoriske effekter av oligosakkarider fraCistanche deserticolaekstrakt ved ryggmargsskade. Int J Biol Macromol. 2019;124:360-367.
23. Liu Y, Wang H, Yang M, et al.Cistanche deserticolapolysakkarider beskytter PC12-celler mot OGD/RP-indusert skade. Biomed Pharmacother. 2018;99:671-680.
24. Song D, Cao Z, Liu Z, et al.Cistanche deserticolapolysakkarid demper osteoklastogenese og benresorpsjon ved å hemme RANKL-signalering og produksjon av reaktive oksygenarter. J Cell Physiol. 2018;233:9674-9684.
25. Fu C, Chen J, Lu J, et al. Nedregulering av TUG1 fremmer melanogenese og UVB-indusert melanogenese. Exp Dermatol. 2019;28:730-733.
26. Johannessen CM, Johnson LA, Piccioni F, et al. Et program for melanocyttavstamning gir resistens mot MAP-kinaseveihemming. Natur. 2013;504:138-142.
27. Vachtenheim J, Borovansky J. "Transkripsjonsfysiologi" av pigmentdannelse i melanocytter: sentral rolle til MITF. Exp Dermatol. 2010;19:617-627.
28. Yu N, Zhang S, Zuo F, et al. Dyrkede humane melanocytter uttrykker funksjonelle tolllignende reseptorer 2–4, 7 og 9. J Dermatol Sci. 2009;56:113-120.
29. Ahn JH, Park TJ, Jin SH, Kang HY. Humane melanocytter uttrykker funksjonell Toll-lignende reseptor 4. Exp Dermatol. 2008;17:412-417.
30. Reed SG, Carter D, Casper C, et al. Korrelater av GLA-familieadjuvansers aktiviteter. Semin Immunol. 2018;39:22-29.
31. Guo MZ, Meng M, Feng CC, et al. Et nytt polysakkarid oppnådd fra Craterellus cornucopioides forbedrer immunmodulerende aktivitet i immunsuppressive musemodeller via regulering av TLR4-NF-kappaB-banen. Matfunksjon. 2019;10(8):4792-4801.
32. Wei W, Xiao HT, Bao WR, et al. TLR-4 kan formidle signalveier for Astragalus polysakkarid RAP-indusert cytokinekspresjon av RAW264.7-celler. J Etnopharmacol. 2016;179:243-252.
33. Chen H, Yang D, Han F, et al. Den bakterielle T6SS-effektoren EvpP forhindrer NLRP3-inflammasomaktivering ved å hemme den Ca(2 pluss)-avhengige MAPK-Jnk-veien. Cell Host Microbe. 2017;21:47-58.
34. Levy M, Shapiro H, Thaiss CA, Elinav E. NLRP6: en mangefasettert in-Nate immunsensor. Trender Immunol. 2017;38:248-260.
35. Chen YS, Chen QZ, Wang ZJ, Hua C. Antiinflammatoriske og hepatobeskyttende effekter av Ganoderma lucidum polysaccharides mot karbontetraklorid-indusert leverskade hos Kunming-mus. Farmakologi. 2019;103:143-150.
36. Tian Z, Liu Y, Yang B, et al. Astragalus-polysakkarid demper murin kolitt gjennom hemming av NLRP3-inflammasomet. Planta Med. 2017;83:70-77.
37. Jiang L, Huang J, Lu J, et al. Ganoderma lucidum polysaccharide reduserer melanogenese ved å hemme de parakrine effektene av keratinocytter og fibroblaster via IL-6/STAT3/FGF2-veien. J Cell Physiol. 2019;234:22799-22808.
38. Cai ZN, Li W, Mehmood S, et al. Effekt av polysakkarid FMP-1 fra Morchella esculenta på melanogenese i B16F10-celler og sebrafisk. Matfunksjon. 2018;9:5007-5015.
39. Zhang C, Li Z, Zhang CY, et al. Molekylære egenskaper og bioaktiviteter til polysakkarider fra alfalfa (Medicago sativa L.). Næringsstoffer. 2019;11:1181.
40. Coconi Linares N, Di Falco M, Benoit-Gelber I, et al. Tilstedeværelsen av sporkomponenter utvider den molekylære responsen til Aspergillus niger betydelig på guargummi. Ny bioteknologi. 2019;51:57-66.
41. Ma H, Zhang K, Jiang Q, et al. Karakterisering av plantepolysakkarider fra Dendrobium officinale ved hjelp av flere kromatografiske og massespektrometriske teknikker. J Chromatogr A. 2018;1547:29-36.
42. Dong Q, Yao J, Fang JN, Ding K. Strukturell karakterisering og immunologisk aktivitet av to kaldtvannsekstraherbare polysakkarider fraCistanche deserticolaYC Ma. Karbohydr Res. 2007;342:1343-1349.
43. Slominski AT, Zmijewski MA, Plonka PM, et al. Hvordan UV-lys berører hjernen og det endokrine systemet gjennom huden, og hvorfor. Endokrinologi. 2018;159:1992-2007.
44. Schalke S. Nye data om hyperpigmenteringsforstyrrelser. J Eur Acad Dermatol Venereol. 2017;31(Suppl 5):18-21.
45. Glassmann SJ. Vitiligo, reaktive oksygenarter og T-celler. Clin Sci. 2011;120:99-120.
46. Ristow M. Avdekke sannheten om antioksidanter: mitohormesis forklarer ROS-induserte helsefordeler. Nat Med. 2014;20:709-711.
47. Balogun E, Hoque M, Gong P, et al. Curcumin aktiverer hemoksygenase-1-genet via regulering av Nrf2 og det antioksidant-reagerende elementet. Biochem J. 2003;371:887-895.
48. Paine A, Eiz-Vesper B, Blasczyk R, Immenschuh S. Signalering til hem oksygenase-1 og dets anti-inflammatoriske terapeutiske potensial. Biochem Pharmacol. 2010;80:1895-1903.
49. Slominski A, Paus R, Schadendorf D. Melanocytter som "sensoriske" og regulatoriske celler i epidermis. J Theor Biol. 1993;164:103-120.
50. Slominski RM, Zmijewski MA, Slominski AT. Rollen til melaninpigment i melanom. Exp Dermatol. 2015;24:258-259.
51. Slominski A, Kim TK, Brozyna AA, et al. Melanogenesens rolle i reguleringen av melanomatferd: melanogenese fører til stimulering av HIF-1alfaekspresjon og HIF-avhengige ledsagende veier. Arch Biochem Biophys. 2014;563:79-93.