Søvnavhengig potensiell hukommelseskonsolidering er svekket med aldring
Mar 18, 2022
Ta kontakt med:joanna.jia@wecistanche.com/ WhatsApp: 008618081934791
Abstrakt
Studiemål: Eksisterende litteratur antyder at søvnavhengighukommelsekonsolidering er svekket hos eldre voksne, men kan bli bevart for personlig relevant informasjon. Potensiellehukommelse(PM) innebærer å huske å utføre fremtidige intensjoner i tide og har atferdsmessig betydning. Siden tidligere arbeid tyder på at N3-søvn er viktig for PM hos unge voksne, undersøkte vi om rollen til N3-søvn i PM-konsolidering ville opprettholdes hos eldre voksne. Metoder: Førti-ni unge voksne (gjennomsnittsalder ± SD: 21,8 ± 1,61 år) og 49 friske eldre voksne (gjennomsnittsalder ± SD: 65,7 ± 6,30 år) ble randomisert til søvn- og våkengrupper. Etter en semantisk kategoriseringsoppgave, kodet deltakerne intensjoner bestående av fire relaterte og fire urelaterte cue-action-par. De ble bedt om å huske å utføre disse handlingene som svar på signalord som ble presentert under en andre semantisk kategoriseringsoppgave 12 timer senere som omfattet enten våkne på dagtid (09:00 am–21:{{17} } pm) eller nattesøvn med polysomnografi (21:00 pm–09:00 am). Resultater: Den signifikante tilstanden × aldersgruppe × slektskapsinteraksjon antydet at søvnfordelen på PM-intensjoner varierte i henhold til aldersgruppe og slektskap (p=0.01). For relaterte intensjoner, gav søvn i forhold til våkne unge voksnes ytelse (p < 0,001),="" men="" ikke="" eldre="" voksne="" (p="0.30)." for="" ikke-relaterte="" intensjoner,="" forbedret="" ikke="" søvn="" pm="" for="" noen="" av="" aldersgruppene.="" mens="" post-encoding="" n3="" var="" signifikant="" assosiert="" med="" utførelse="" av="" relaterte="" intensjoner="" hos="" unge="" voksne="" (r="0.43," s="0.02)," ble="" ikke="" denne="" sammenhengen="" funnet="" for="" eldre="" voksne="" (r="" {{34}="" }="" −0,07,="" s="0.763)." konklusjoner:="" den="" aldersrelaterte="" svekkelsen="" av="" søvnavhengig="" hukommelseskonsolidering="" strekker="" seg="" til="" pm.="" funnene="" våre="" legger="" til="" et="" eksisterende="" arbeid="" som="" antyder="" at="" koblingen="" mellom="" søvn="" og="" hukommelse="" er="" funksjonelt="" svekket="" i="" eldre="" voksen="">
Nøkkelord:hukommelse; konsolidering; slow-wave søvn; aldring
Ruth LF Leong, June C. Lo og Michael WL Chee*,
1 Center for Sleep and Cognition, Human Potential Program, Yong Loo Lin School of Medicine, National University of Singapore, Singapore
Innledning Mens søvn utvetydig fordeler konsolideringen av deklarative [1–3] og prosedyremessigehukommelse[4–6] hos unge voksne har et økende antall studier begynt å vise at hos eldre voksne er denne søvneffekten betydelig redusert eller fraværende [7–9]. Dette kan imidlertid variere etter arten av notatene. For eksempel søvnavhengighukommelsekonsolidering for prosedyrehukommelse[10–12] ser ut til å være relativt bevart sammenlignet med deklarativhukommelsesom viser størst alderssvikt [7]. Interessant nok kan deklarativ hukommelseskonsolidering bevares hvis eldre voksne oppfatter studiemateriell som engasjerende og personlig relevant [13].
For eksempel, mens ingen søvnforbedringer ble funnet for ordpar [14–16], viste en studie at søvn versus våken var fordelaktighukommelsefor noveller og personlige hendelser (f.eks. den første samtalen man hadde den morgenen) hos eldre voksne, om enn i mindre grad enn unge voksne [17].

Cistanche kan forbedre hukommelsen
Dette kan oppstå fordi relevans gjør minner mer fremtredende, og forbedrer det synaptiske signal-til-støy-forholdet slik at disse representasjonene fortrinnsvis reaktiveres og styrkes under søvn [18–20]. For eksempel, hos unge voksne, har søvnavhengige gevinster vist seg å være større for materiale med fremtidig relevans, slik som ord [21] og ferdigheter [22] som deltakerne forventet en belønning for, så vel som for gjenstander de forventet. en fremtidig test [23].
Med aldring, ettersom hjernen gjennomgår atrofi [14] og hukommelsen avtar, kan fordelen av søvn på hukommelsen bli mer avhengig av relevansen og betydningen av notatene. Imidlertid har få studier brukt materiale som involverer fremtidig relevans for å kontrastere søvneffekter hos yngre og eldre deltakere. Her undersøkte vi aldersrelaterte forskjeller i konsolideringen av prospektivt minne (PM), en type hukommelse som involverer kodingshandlinger som må hentes ut ved senere opptreden av et spesifikt signal, for eksempel å sende en melding til en kollega. øyeblikk de kommer på jobb [24, 25].
For å teste dette i laboratoriet, er en potensiell minneoppgave der deltakerne er pålagt å utføre en handling som svar på et signal, vanligvis integrert i en pågående oppgave (f.eks. en semantisk kategoriseringsoppgave). Vellykket potensiell erindring innebærer å hente innholdet i intensjonen (retrospektiv komponent) på en rettidig måte som svar på den riktige hendelsen (prospektiv komponent). Potensielle hukommelsessvikt står for 50 prosent –80 prosent av alle hverdagslige minneplager [26], noe som understreker dens funksjonelle betydning. Nyere bevis tyder også på at minner med rikere kontekstuelle signaler (f.eks. "hva", "hvor", "når" detaljer) også kan være beskyttet mot aldersrelaterte fall i søvnkonsolidering [27].

cistanche kroppsbygging
Gitt at rettidig utførelse av intensjoner nødvendigvis avhenger av vellykket bruk av miljømessig og tidsmessig informasjon, forsøkte vi å undersøke om potensiell hukommelseskonsolidering ville bli bevart med aldring. I vår forrige studie på unge voksne [28] fant vi at sammenlignet med våkenhet på dagtid, gagnet en periode med nattsøvn spontan henting av intensjoner som omfatter relaterte cue-action-par (f.eks. å slå på en alarm som svar på målordet "klokke" ) [29].
I motsetning til dette forbedret ikke søvn utførelsen av semantisk urelaterte cue-action-par (f.eks. å lukke en bok som svar på "speil"), noe som tyder på at den søvnen fortrinnsvis kan lette intensjoner som omfatter allerede eksisterende assosiasjoner. Dessuten skjedde høyere utførelse av relaterte intensjoner etter søvn uten ekstra kostnader til den pågående oppgaven, noe som indikerer en søvnspesifikk effekt på spontan henting i motsetning til den oppmerksomhetskrevende prosessen med signalovervåking. Varigheten av post-encoding N3-søvn var positivt korrelert til utførelsen av relaterte intensjoner. Gitt at langsomme bølgevarighet [30] og amplitude av langsomme svingninger [31, 32]
reduseres betydelig med aldring, er det et åpent spørsmål om nedsatt søvn hos eldre voksne vil påvirke prospektiv hukommelse. Tidligere rapporterte en metaanalyse at effekten av søvn på prospektiv hukommelse hos eldre voksne var liten og ikke statistisk signifikant [33]. Imidlertid var denne effektstørrelsen utelukkende basert på observasjonsstudier, da det på det tidspunktet ikke var utført noe eksperiment for å sammenligne søvn- og våkneeffekter på eldre voksnes prospektive hukommelse. Nylig, ved å bruke et virtuelt miljøparadigme, har Rehel et al. rapporterte en søvnfordel på eldre voksnes prospektive hukommelse, spesielt for relaterte intensjoner [34].
Rollen til søvnarkitektur i intensjonskonsolidering ble imidlertid ikke evaluert. For å løse dette gapet, kontrasterte vi prospektiv hukommelsesytelse etter at polysomnografi overvåket søvn versus våken hos både yngre og eldre voksne og undersøkte om aldersforskjeller kunne tilskrives endringer i søvn-minne-forholdet. Vi antok at effekten av søvn på potensiell hukommelseskonsolidering ville bli redusert hos eldre voksne sammenlignet med unge voksne, og at dette ville bli ledsaget av endringer i assosiasjonen til søvn.
Metoder
Deltakere
Seksti friske eldre voksne (aldersspenn: 57–77 år) ble rekruttert og sammenlignet med 49 unge voksne (aldersspenn: 19–25 år) fra en presedensstudie [28].
Older adult participants were native English speakers recruited from the Singapore-Longitudinal Aging Brain Study [35] or by word of mouth. Participants had no history of significant vascular events (i.e. myocardial infarction, stroke, or peripheral vascular disease), malignant neoplasia of any form, cardiac, lung, liver, or kidney failure, active or inadequately treated thyroid disease, and no active neurological or psychiatric conditions. In addition, all participants scored >26 on the Mini-Mental State Examination [36], and >5 på den 15-elementet modifiserte screeningskalaen for geriatrisk depresjon som indikerer fravær av depresjonssymptomer [37].
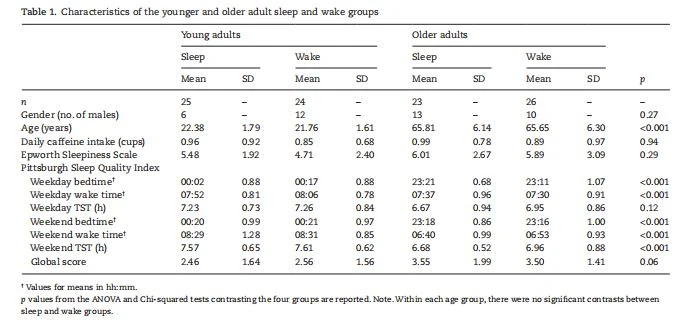
Deltakerne ble screenet for symptomer på søvnapné ved å bruke Berlin Questionnaire [38]. Alle deltakerne ga informert samtykke, i samsvar med en protokoll godkjent av National University of Singapore Institutional Review Board. Eldre voksne ble randomisert likt i søvn- og våkengrupper. Totalt misforsto 11 deltakere oppgaveinstruksjonene og indikerte at deres dårlige søvn i laboratoriet ikke var representativ for deres vanlige søvn. Etter å ha ekskludert disse 11 deltakerne fra alle analyser, besto den endelige prøven av 49 eldre voksne (gjennomsnittsalder ± SD: 65,7 ± 6,3 år, 23 menn, tabell 1) og 49 unge voksne (gjennomsnittsalder ± SD: 21,8 ± 1,61 år, 18 år) menn). Innen hver aldersgruppe skilte ikke søvn- og våkengrupper seg i alder, kjønnsfordeling, forbruk av koffeinholdige drikker per dag, nivå av søvnighet på dagtid målt ved Epworth Sleepiness Scale [39], eller selvrapporterte søvnvaner og subjektiv søvnkvalitet som målt ved Pittsburgh Sleep Quality Index [40] (p > 0.26). I tråd med trender rapportert andre steder [41–43], var søvnvanene forskjellig mellom aldersgruppene. Sammenlignet med unge voksne rapporterte eldre at de sov og våknet tidligere både på ukedager og i helgene (ps < 0.001).="" denne="" søvntidsforskjellen="" var="" spesielt="" fremtredende="" i="" helgene,="" noe="" som="" resulterte="" i="" signifikant="" kortere="" søvntid="" hos="" eldre="" voksne="" i="" helgene="" (p=""><>
Studieprotokoll
Deltakerne ble bedt om å følge en konsistent søvnplan de tre dagene før studien, og overholdelse av denne instruksjonen ble verifisert med håndleddsaktigrafi (Actiwatch 2, Philips Respironics, Murrysville, PA). Intensjonsøktene med koding og henting fant sted med 12 timers mellomrom og inkluderte enten en periode med polysomnografi-overvåket nattsøvn på laboratoriet eller en periode med våkenhet på dagtid (ingen lur tillatt).
Deltakere som ble tildelt søvngruppen, skulle etter planen ankomme laboratoriet kl. 21:00. Intensjonskodingsøkten ble gjennomført kl. 21.30 og varte i omtrent 30–40 minutter. Polysomnografi ble brukt og deltakerne sov og våknet til de vanlige søvntidspunktene (innen 23:00 pm og 08:00 am). Morgenen etter ble intensjonshentingen utført klokken 09:30. I våknegruppen ankom deltakerne laboratoriet om morgenen for intensjonskodingsøkten som startet klokken 09:30.
Etter at de var ferdige, ble de utskrevet og instruert om å engasjere seg i sin daglige rutine, men å unngå lur og inntak av koffeinholdig mat og drikke. Deltakerne skulle etter planen returnere til laboratoriet om kvelden for hentingsøkten som fant sted kl. 21:30.

cistanche kroppsbygging
Før hver økt ble deltakerne bedt om å rapportere sitt nivå av subjektiv våkenhet på Karolinska Sleepiness Scale (1—veldig våken, 9—veldig søvnig, stor innsats for å holde seg våken). På slutten av den endelige intensjonshentingsøkten ble deltakerne debriefet, og et kort intervju ble gjennomført for å undersøke strategiene de kan ha brukt, samt å verifisere at de fullt ut hadde forstått kravene til oppgaven. For eksempel klarte noen deltakere ikke å utføre intensjonene sine, ikke på grunn av å glemme, men fordi de ble forvirret over oppgaveinstruksjonene.
Prospektiv minneoppgave
Den potensielle minneoppgaven krevde at deltakerne husket å utføre handlinger når signalord blir møtt mens de utførte en pågående semantisk kategoriseringsoppgave [28]. Sannsynligheten for spontan gjenfinning av handlingen ble manipulert ved å variere slektskapet til signalordet og tilhørende handling. Sammenlignet med semantisk urelaterte cue-action-par ("speil lukk boken"), er semantisk relaterte cue-action-par ("phone unplug earphones") mer sannsynlig å utløse en spontan assosiativ gjenfinningsprosess, som bringer intensjonen refleksivt til tankene når cue ord påtreffes under den semantiske kategoriseringsoppgaven [29]. Intensjonskodingsøkten innebar å gjøre deltakerne kjent med den semantiske kategoriseringsoppgaven. Etter at deltakerne utførte denne oppgaven én gang, forklarte eksperimentatoren at i økten 12 timer senere ville de bli bedt om å utføre den semantiske kategoriseringsoppgaven på nytt, men de måtte nå også huske å utføre spesifikke handlinger når spesifikke ord blir møtt under oppgaven.
Dette utgjorde den potensielle minneoppgaven - deltakerne måtte huske å utføre disse handlingene som svar på riktig signal uten å bli påminnet av eksperimentatoren. På hver utprøving av den semantiske kategoriseringsoppgaven måtte deltakerne finne ut om et ord presentert til venstre på dataskjermen var medlem av kategoriordet som ble presentert til høyre for det ("hockey SPORT"). For å indikere "ja" eller "nei"-svar, trykket deltakerne på henholdsvis "1" og "2" på tastaturet. Den semantiske kategoriseringsoppgaven besto av 144 forsøk. Ytelsen ble indikert av andelen forsøk som ble korrekt reagert på. Median reaksjonstid (RT) for disse korrekte forsøkene for hver deltaker ble utledet. I intensjonskodingsøkten, etter å ha utført sin første semantiske kategoriseringsoppgave, ble deltakerne vist følgende instruksjoner: "I tillegg til denne semantiske kategoriseringsoppgaven har vi en sekundær interesse i din evne til å huske å utføre fremtidige handlinger. Når du går tilbake til lab senere, vil du utføre denne oppgaven igjen. Dette er en liste over ord, med handlinger knyttet til hvert ord. Når du ser noen av disse ordene mens du gjør oppgaven, må du huske å utføre den tilknyttede handlingen. du legger merke til ordet, trykk først 'Q' for å sette eksperimentet på pause, og utfør deretter handlingen. Hvis du husker etter at prøveperioden allerede har gått, kan du fortsatt trykke på 'Q' og utføre handlingen. Etter å ha utført handlingen, fortsett med neste utprøving av kategoriseringsoppgaven. Merk at målordene vil forekomme som en del av kategoriseringsoppgaven. De kan være til stede som ordet med små bokstaver, eller ordet med store bokstaver. Du vil IKKE bli minnet om t instruksjonen hans ved neste økt."
Deltakerne fortsatte deretter med å lære de åtte intensjonene, hvorav fire besto av relaterte cue-action-par (f.eks. slå på en alarm som svar på målordet "klokke"), og de fire andre omfattet semantisk urelaterte cue-action-par (f.eks. bok som svar på "speil"; se Leong et al. 2019 for fullstendige detaljer). Spesielt måtte intensjonene alle utføres fysisk på gjenstander plassert i testrommet. Deltakerne fikk 10 minutter på seg til å studere de åtte parene og ble pålagt å gjenkalle parene verbalt til eksperimentatoren til alle ble tilbakekalt riktig. Alle deltakerne oppnådde 100 prosent nøyaktighet på sitt første tilbakekallingsforsøk. I intensjonshentingsøkten 12 timer senere ble deltakerne presentert for den semantiske kategoriseringsoppgaven.
Eksperimentatoren minnet ikke deltakerne om den potensielle minneoppgaven. Hver cue forekom én gang i den semantiske kategoriseringsoppgaven og i samme rekkefølge for alle deltakerne. Nøyaktigheten på den potensielle minneoppgaven ble kvantifisert ved prosentandelen av signalord som ble korrekt svart på i løpet av fem forsøk med den semantiske kategoriseringsoppgaven. På slutten av den semantiske kategoriseringen fikk deltakerne en gjenkjennelsestest for signalord og handlinger. Dette gjorde det mulig for oss å finne ut om potensielle minnefeil skyldtes feil i den retrospektive komponenten av potensielt minne, det vil si manglende utførelse av intensjonen på grunn av at cue-action-paringen ble glemt eller feil i den potensielle komponenten, dvs. manglende mulighet til å utføre intensjonen.
Polysomnografi
Elektroencefalografiske (EEG) signaler under nattesøvn ble registrert ved hjelp av en seks-kanals EEG-montasje (F3-A2, F4-A1, C3-A2, C4-A1, O1-A2 og O2-A1) i henhold til 10–20-systemet. Øyebevegelse og muskeltonus ble registrert gjennom venstre og høyre elektrookulografiske (EOG) og submentale elektromyografiske (EMG) elektroder som er henholdsvis referert til A2 og A1. Jord- og fellesreferanseelektrodene ble plassert ved henholdsvis Cz og FPz. EEG-, EOG- og EMG-signaler ble registrert ved bruk av et Comet Portable EEG-system fra Grass Technologies (Astro-Med, Inc., West Warwick, RI). Samplingshastigheten og lagringshastigheten var henholdsvis 800 og 200 Hz. Lavpass- og høypassfiltrene ble satt til 35 og 0,3 Hz for EEG-signalene og 70 og 10 Hz for EMG-signalene. Elektrodeimpedansen ble holdt under 5 kΩ. Søvnstadie ble utført i henhold til American Academy of Sleep Medicine kriterier [44].
TST og varigheten av hvert søvnstadium ble utledet. I lys av problemene rundt bruken av en fast amplitudeterskel for å definere N3 hos eldre voksne, noe som kan føre til en underestimering av N3-varighet og en påfølgende overestimering av N2-varighet hos eldre voksne [45], analyserte vi spektralkraft i deltaområdet (0.5–4 Hz) og sigma-rekkevidde (12–15 Hz) registrert fra C3 og F3. For å vurdere søvnspindler, utførte vi automatiske søvnspindeldeteksjonsanalyser ved å bruke Wonambi Python-pakken, v5.24 med en algoritme utviklet av Wamsley et al. [46] Kort fortalt ble en Morlet wavelet-transformasjon av artefaktfritt C3-A2-signal utført og et glidende gjennomsnitt ble beregnet på wavelet-skalaen tilsvarende 12–15 Hz ved bruk av et 100-ms skyvevindu . Spindler ble oppdaget når det bevegelige gjennomsnittet overskred en konstant terskel (4,5 ganger gjennomsnittlig signalamplitude for alle artefaktfrie epoker) i 0.3–3.0 s.
Vi valgte denne algoritmen da en tidligere studie rapporterte at den oppnådde den beste ytelsen sammenlignet med flere andre automatiserte spindeldetektorer, og oppnådde den mest balanserte gjenkallings- og presisjonsytelsen og den høyeste F1-score [47]. Spindelantall, tetthet (per min), varighet (s) og effekt (µV2/Hz) ble beregnet for alle NREM-epoker fra C3-A2-elektroder.
statistiske analyser
Alle analyser ble utført med SPSS 26.0 (IBM, Chicago, USA). For å avgjøre om søvn ville være til fordel for utførelsen av potensielle minneintensjoner sammenlignet med våknegruppen og om dette ville bli moderert av aldersgruppe og intensjonens beslektning, utførte vi en variansanalyse med gjentatte mål (ANOVA) for prosentandelen av potensielt minne. intensjoner utført med søvn (søvn, våken), aldersgruppe (ung, gammel) og slektskap (relatert, ikke-relatert) som prediktorer. For å undersøke om interaksjonseffekter kan forklares av forskjeller i subjektiv søvnighet, utførte vi en variansanalyse med gjentatte mål (ANOVA) for subjektiv søvnighet med søvn (søvn, våken), aldersgruppe (ung, gammel) og økt ( koding, gjenfinning) som prediktorer. Gruppekontraster ble testet med uavhengige prøver, og sammenligninger mellom forholdene ble testet ved bruk av parvise t-tester. For ytelse av gjenkjenningstest vurderte vi den statistiske signifikansen av eldre voksnes prestasjoner med en en-utvalgs t-test mot 100 prosent.
I tillegg utførte vi Pearson korrelasjonsanalyser i hver aldersgruppe separat for å undersøke forholdet mellom søvnparametere og søvnfordeler på hukommelsen. For å minimere falske positiver, utførte vi korrelasjoner hos eldre voksne kun for minnevariabler der en eksperimentell fordel med søvn fremfor våkenhet ble etablert hos unge voksne. Vi brukte en Fisher-z-transformasjon for å teste betydningen av forskjellen mellom korrelasjoner.
Til slutt ble det utført gjentatte mål ANOVAer for nøyaktighet og reaksjonstid på den pågående semantiske kategoriseringsoppgaven for å sammenligne den relative bruken av ressurser for overvåking mellom yngre og eldre voksne. Søvn (søvn, våken), aldersgruppe (ung, gammel) og økt (koding, henting) ble inkludert som prediktorer. Gruppekontraster ble testet med uavhengige prøver, og sammenligninger mellom økter ble testet ved bruk av parvise t-tester.
Resultater
Aldersforskjeller i polysomnografi søvnparametere
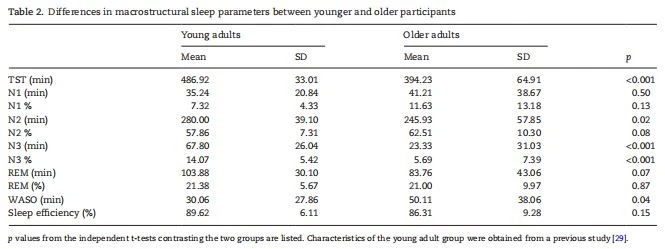
I løpet av natten med søvn i laboratoriet oppnådde eldre voksne betydelig mindre TST, N2 og N3 (ps < 0.02,="" tabell="" 2),="" og="" hadde="" mer="" waso="" (p="" {{5}="" }.04)="" sammenlignet="" med="" unge="" voksne.="" det="" var="" ingen="" aldersgruppeforskjeller="" i="" mengden="" n1="" og="" rem-søvn="" (ps=""> 0.07), eller søvneffektivitet (p=0.15). Eldre voksne hadde signifikant redusert NREM delta-kraft og sigma-kraft sammenlignet med unge voksne (ps < 0,001),="" og="" hadde="" også="" lavere="" spindelantall="" (p="0.01)" og="" kortere="" spindelvarighet="" (p="0.04" ).="" det="" var="" ingen="" signifikante="" forskjeller="" i="" spindeltetthet="" og="" kraft="" mellom="" aldersgrupper="" (p=""> 0,07).
Prospektiv minneytelse
Vi fant en signifikant søvn × aldersgruppe x slektskapsinteraksjon (F {{0}}.71, p=0.01, figur 1). For relaterte intensjoner, i forhold til våken på dagtid, gav nattsøvn ytelsen til gode hos unge voksne (t=3.79, p < 0.001),="" men="" ikke="" eldre="" voksne="" (t="1.05," s="0" .30,="" aldersgruppe="" x="" søvninteraksjon:="" f="1.09," s="0.30)." i="" motsetning="" til="" dette="" hadde="" ikke="" urelaterte="" intensjoner="" nytte="" av="" søvn="" sammenlignet="" med="" våken="" i="" begge="" aldersgruppene="" (ung:="" t="1.07," p="0.29," eldre:="" t="1.67," p="0.10," aldersgruppe="" ×="" søvninteraksjon:="" f="0.53," s="0.47)." dette="" indikerer="" at="" søvn="" lettet="" spontan="" henting="" av="" intensjoner="" som="" omfatter="" allerede="" eksisterende="" assosiasjoner="" bare="" hos="" unge,="" men="" ikke="" eldre="" voksne.="" til="" slutt="" observerte="" vi="" en="" hovedeffekt="" av="" aldersgruppen="" (f="14.75," p="">< 0.001),="" som="" indikerte="" at="" som="" forventet="" presterte="" unge="" voksne="" bedre="" på="" den="" prospektive="" hukommelsesoppgaven="" sammenlignet="" med="" eldre="">
For eldre voksne skyldtes 9,14 prosent av potensielle minnefeil handlinger utført som svar på feil signal. Sannsynligheten for at dette skulle skje var nesten to ganger større for urelaterte cue-action-par sammenlignet med relaterte cue-action-par (64,7 prosent mot 35,3 prosent). Mens alle unge voksne skåret 100 prosent på gjenkjennelsesoppgaven, gjorde eldre voksne det betydelig dårligere (gjennomsnittlig ± SEM: 82,35 prosent ± 4,68 prosent, t=3.77, p < 0.001),="" noe="" som="" understreker="" alder="" -relatert="" forverring="" i="" retrospektiv="" minnekonsolidering.="" gjenkjennelsespoeng="" for="" ordparene="" var="" numerisk="" høyere="" hos="" eldre="" voksne="" som="" sov="" sammenlignet="" med="" de="" som="" forble="" våkne="" etter="" koding,="" men="" denne="" forskjellen="" var="" ikke="" signifikant="" (gjennomsnitt="" ±="" sem;="" søvn:="" 86,98="" prosent="" ±="" 6,53="" prosent="" versus="" våken:="" 78,44="" prosent="" ±="" 6,68="" prosent="" ,="" t="3.81," p="">
I motsetning til unge voksne hvis potensielle hukommelsessvikt i sin helhet ble tilskrevet å glemme å utføre intensjonen til rett tid (dvs. feil i den potensielle komponenten), ble eldre voksne også vanskeligstilt ved at de glemte innholdet i intensjonen (dvs. feil i den retrospektive komponenten). .
Vi fant ingen signifikante interaksjoner eller hovedeffekter (ps > 0.22, tilleggstabell 1) på KSS-score, noe som indikerer at potensielle hukommelsesforskjeller mellom aldersgrupper ikke var drevet av forskjeller i subjektiv søvnighet.
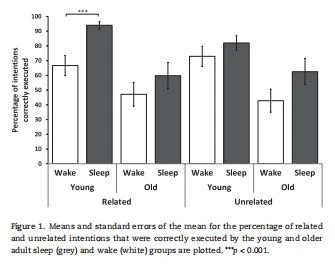
Forholdet mellom søvnarkitektur og potensiell minneytelse
Vi har tidligere rapportert at hos unge voksne var søvnforbedringen for utførelse av relaterte intensjoner assosiert med mengden N3 oppnådd etter intensjonskoding (r=0.46, p=0.0 2; Tabell 3). Selv om det ikke var noen søvn versus våken effekt på relaterte intensjoner hos eldre voksne, testet vi denne hukommelsessammenhengen med N3-varighet hos eldre voksne for å spesifikt undersøke om et endret søvn-minne forhold ville forklare den reduserte effekten av søvn hos eldre voksne. Spesielt, i motsetning til unge voksne, var det ingen signifikant sammenheng mellom N3- og PM-konsolidering hos eldre voksne (r=−0.16, p=0.46, z=2.10, p=0.02).

Vi fant ingen signifikante assosiasjoner mellom NREM deltakraft og utførelse av relaterte intensjoner hos noen av unge voksne (C3: r=0.04, p=0.87, F3: r {{ 6}}.08, p=0.76) eller eldre voksne (C3: r=0.25, p=0.25, F3: r {{16 }}.20, s=0.39). Interessant nok observerte vi en signifikant sammenheng med relaterte intensjoner og N2-søvnvarighet hos eldre voksne (r=0.66, s=0.001) som ikke var til stede hos unge voksne ( r=−0,35, p=0,09, z=−3,70, p < 0,001).="" på="" grunn="" av="" våre="" små="" utvalgsstørrelser="" bør="" imidlertid="" dette="" funnet="" behandles="" med="" forsiktighet.="" i="" tillegg="" var="" assosiasjoner="" mellom="" relaterte="" intensjoner="" og="" sigmakraft="" ikke="" statistisk="" signifikante="" i="" begge="" aldersgruppene="" (ps=""> 0,40). Tilsvarende var assosiasjoner med relaterte intensjoner og spindelantall, tetthet, varighet og kraft ikke signifikante i begge aldersgruppene (ps > 0,31). Det var ingen andre signifikante assosiasjoner med andre søvnparametre.
Semantisk kategoriseringsoppgaveytelse
Søvn × aldersgruppe × øktinteraksjon var ikke signifikant for nøyaktighet (F=3.73, p=0.06) eller reaksjonstid (F=0.31, p {{6} }.58), noe som indikerer at for begge aldersgruppene, modulerte ikke søvn de ekstra ressursene som kreves for å overvåke for signalordene i hentingen i forhold til kodingsøktene. Søvn økte med andre ord ikke omfanget av strategisk overvåking i noen av aldersgruppene.
Det var ingen signifikante toveisinteraksjoner (ps > 0.23). Hovedeffekten av økten var imidlertid signifikant for nøyaktighet (F=198.60, p < 0.001)="" og="" reaksjonstid="" (f="55.67," p="">< 0,001),="" noe="" som="" indikerer="" at="" uavhengig="" av="" om="" de="" sov="" eller="" forble="" våken,="" hadde="" begge="" gruppene="" dårligere="" nøyaktighet="" og="" lengre="" reaksjonstider="" i="" hentingen="" sammenlignet="" med="" kodingsøkten.="" dette="" tyder="" videre="" på="" at="" begge="" aldersgruppene="" utøvde="" samme="" nivå="" av="" strategisk="" signalovervåking="" i="" søvn-="" og="">
Diskusjon
Mens den aldersrelaterte reduksjonen av søvnens fordel på deklarativ hukommelseskonsolidering er etablert med eksperimentelle og meta-analytiske bevis [7, 9, 48], er av nyere interesse faktorene som kan modulere alderseffekten på søvnavhengig prospektiv hukommelse. Gitt påstanden om at relevansen av materialet som skal huskes kan påvirke effekten av søvn på hukommelseskonsolidering [17], undersøkte denne studien prospektiv hukommelse ved å bruke en oppgave som etterlignet hverdagslig huske av intensjoner som involverte den faktiske utførelsen av kodede intensjoner . Mens søvn økte utførelsen av relaterte intensjoner hos unge voksne, observerte vi ikke søvnrelaterte forbedringer for utførelse av intensjon i vår eldre voksne gruppe, noe som tyder på at alderssvekkelser sett i søvnavhengig deklarativ hukommelseskonsolidering kan strekke seg til prospektiv hukommelse. Vellykket utførelse av en intensjon innebærer henting av både den potensielle komponenten (dvs. selvinitiert rettidig utførelse) og den retrospektive komponenten (dvs. tilbakekalling av cue-action-paringer).
Rettidig utførelse er avhengig av en selvinitiert henting utløst av utseendet til signalet, som deretter etterfølges av det tilsiktede og direkte søket etter den riktige handlingen å utføre. Spesielt så vi aldersrelaterte svekkelser i den søvnavhengige konsolideringen av både de retrospektive (dvs. cue-action-paringer) og potensielle komponentene (dvs. rettidig utførelse) av PM-oppgaven. Mens underskudd i konsolideringen av den retrospektive komponenten er i tråd med tidligere studier som rapporterer svekkelser i konsolideringen av ordpar [15, 49, 50] og objektplasseringer [51] med økende alder, har aldersforskjeller i konsolideringen av den potensielle komponenten vært relativt mindre studert.
Prospektiv minneinnhenting kan skje via to veier: (1) strategisk overvåking av utseendet til signalet [29] og/eller (2) spontan henting av intensjonen. Overvåkingsatferd kan indekseres av redusert nøyaktighet og økte responstider på den pågående semantiske kategoriseringen i hentingsøkten sammenlignet med kodingsøkten. Mens vi, som forventet, observerte disse endringene fra kodingen til gjenfinningsøktene, skilte disse endringene seg ikke mellom søvn- og våkneoppbevaring, noe som tyder på at søvn ikke endret overvåkingsatferd. Disse endringene var også like mellom de to aldersgruppene, noe som indikerer at begge aldersgruppene ble overvåket i samme grad. For eldre voksne var endringer i ytelsen til semantisk kategorisering lik på tvers av både søvn- og våkneretensjonsintervaller, noe som indikerer at søvn ikke økte overvåkingsatferden deres. Søvn så heller ikke ut til å lette spontan uthenting hos eldre voksne.
Spontan henting, reflektert i vellykket utførelse av relaterte (høy sannsynlighet for spontan henting) snarere enn ikke-relaterte intensjoner (lav sannsynlighet for spontan henting), var ikke bedre etter søvn kontra våken hos eldre voksne. I motsetning til dette var det mer sannsynlig at unge voksne utførte relaterte enn ikke-relaterte intensjoner etter søvn sammenlignet med våkenhet, og avslørte de gunstige effektene av søvn for å lette spontan henting i denne aldersgruppen. Hvilke mekanismer kan ligge til grunn for denne aldersforskjellen i effekten av søvn på spontan uthenting? Hos unge voksne kan hukommelsesreaktivering drevet av N3-søvn styrke hvileaktiveringen av relaterte intensjoner, og lette spontan assosiativ gjenfinning når signalet oppstår [28, 52]. Det har blitt foreslått at en aldersrelatert reduksjon i N3 kan føre til svekkelser i episodisk hukommelseskonsolidering hos eldre voksne, og dette har blitt støttet av studier som rapporterer at aldersunderskudd i søvnavhengig konsolidering er proporsjonale med omfanget av SWS [53] og frontal SWA-alder synker [14, 54].
Det er også bevis på at forholdet mellom søvn og hukommelseskonsolidering kan være funksjonelt endret hos eldre voksne. For eksempel kan de signifikante og positive assosiasjonene mellom N3-mengde og episodisk hukommelseskonsolidering sett hos unge voksne være fraværende eller reversert hos eldre voksne [15, 16], noe som tyder på en begrenset rolle av N3-søvn for hukommelsen som kan forklare de inkonsekvente funnene i dette gruppe. Dette mønsteret stemmer overens med de nåværende funnene. I motsetning til unge voksne, fant vi ikke en signifikant korrelasjon mellom utførelse av intensjon og N3 i vårt eldre utvalg av voksne, noe som tyder på at funksjonen til N3 for potensielt minne i denne aldersgruppen kan være hemmet, noe som gjør den ineffektiv. Studier antyder at aldring kan forstyrre den nøyaktige koblingen mellom feltpotensialer under NREM-søvn som driver den hippocampus-neokortikale dialogen som er viktig for hukommelseskonsolidering [1].
Når saktebølgesvingninger ikke lenger effektivt involverer søvnspindler, kan reaktivering og transformasjon av minnespor over natten bli hindret [50, 55], noe som kan forklare hvorfor bare tilgjengeligheten av SWS kanskje ikke forutsier minneytelse hos eldre voksne. Den reduserte evnen til atrofierte hjerneområder til å støtte denne søvndrevne reaktiveringsprosessen kan også bidra til inkonsekvente funn. For eksempel, selv når reaktivering av tidligere lært materiale ble indusert eksternt, viste ikke eldre voksne forbedret tilbakekalling etter søvn til tross for oscillerende bevis på at cueing var vellykket [56]. Prospektiv hukommelse via spontan gjenfinning har vært assosiert med hippocampusvolum [57, 58], og aldersforskjeller i prospektiv hukommelsesytelse har vært knyttet til redusert aktivering i mediale temporale regioner [59].
Det er mulig at selv om søvn kan ha forsterket representasjonene av intensjonen, kan det hende at nevrale systemet som støtter spontan uthenting ikke har vært tilstrekkelig robust til å opprettholde den nødvendige aktiveringen som er nødvendig for at intensjonen skal kunne hentes spontant. Med andre ord kan aldersrelatert hjerneatrofi ikke bare svekke genereringen av kvalitet N3 [14,31], men kan også begrense den synaptiske plastisiteten som trengs for potensiell hukommelseskonsolidering. Interessant nok observerte vi hos eldre voksne en korrelasjon mellom relatert hensiktsutførelse og N2-søvn. Spesielt er N2-søvn relativt bevart med aldring og øker omtrent 5 prosent mellom 20 og 70, et omvendt mønster fra N3, som avtar med 2 prosent per tiår [30]. Selv om dette reiser spørsmålet om N2-søvn kan spille en kompenserende rolle for prospektiv hukommelse, må det utvises forsiktighet ved å tolke dette resultatet, da vi ikke fant en fordel for søvn versus våken for eldre voksnes prospektive hukommelse. I tillegg har en nylig studie også antydet at REM-søvn kan spille en økt rolle i potensiell hukommelseskonsolidering med aldring [60]. I likhet med N2, opprettholdes også REM-søvn relativt med aldring og kan spille en rolle i å støtte kognisjon når SWS avtar [61, 62]. Vi fant imidlertid ingen assosiasjon til REM-søvn i dette arbeidet. Fremtidige studier i større prøver med alder som en kontinuerlig variabel, som inkluderer en våkenkontrollgruppe er nødvendig for å løse disse utestående problemene innen søvnforskning og aldring.

cistanche kroppsbygging
Begrensninger
Selv om minne for "intensjon" versus "innhold" har blitt teoretisert å omfatte en performativ komponent som gir den en spesiell fremtreden [63, 64], er det mulig at eldre voksne fortsatt kan ha oppfattet den laboratoriebaserte PM-oppgaven som relativt abstrakt. Tidligere litteratur har notert et "alder-PM-paradoks", der aldersunderskuddet som ofte observeres i laboratoriebaserte PM-oppgaver reverseres når PM-oppgaver i stedet er innebygd i naturlige omgivelser (f.eks. huske å sende tekst til eksperimentatoren på en bestemt dato) [65, 66]. Spesielt fant en fersk studie som brukte et innen-fagdesign ved bruk av et virtuelt museumsparadigme søvnforbedringer i potensiell hukommelse for eldre voksne [34]. Derfor, selv om den nåværende PM-oppgaven hadde atferdsrelevans, kan den fortsatt ha manglet personlig relevans for eldre deltakere. Tidligere arbeid har antydet at kodingsstyrken til det første minnesporet kan påvirke søvnkonsolidering [67, 68].
Det er mulig at vi ikke observerte signifikante søvnavhengige minnekonsolideringseffekter i vår eldre voksne prøve på grunn av kodingskvaliteten til intensjoner. Svak koding kan imidlertid ikke forklare funnene våre, da vi sikret nøyaktigheten av kodingen under kodingsøkten før søvn og også ekskluderte fra analyser de som rapporterte forvirring angående oppgaveinstruksjoner. Videre, siden deltakerne bare ble testet én gang på parene etter koding, er det usannsynlig at assosiasjoner var robuste i den grad at søvnens effekter ble gjort overflødige [69].
Den nåværende studien inkluderte ikke en døgnkontrollgruppe for å kontrollere de forskjellige testtidspunktene i søvn- og våknegruppene. Ikke desto mindre fant vi ikke signifikante forskjeller i subjektive søvnighetsmål ved koding eller henting mellom våkne- og søvngrupper. Fremtidige studier kan vurdere å bruke et lur-paradigme der deltakerne kan kode og bli testet på samme tid for å utelukke circadian påvirkninger.
Konklusjoner
Funnene våre legger eksperimentelt bevis til hittil primært observasjonsbevis [33] som indikerer at søvn ikke gagner potensiell hukommelseskonsolidering hos eldre voksne. Til sammen bidrar dette arbeidet til litteraturen om faktorer som modulerer alderseffekter på søvnavhengig minnekonsolidering.
Våre funn tyder på at aldring demper søvnavhengig prospektiv hukommelseskonsolidering og at dette kan være knyttet til endringer i søvnens rolle i å støtte spontan uthenting.
Referanser
1. Diekelmann S, et al. Søvnens minnefunksjon. Nat Rev Neurosci. 2010;11(2):114–126.
2. Plihal W, et al. Effekter av tidlig og sen nattlig søvn på deklarativt og prosedyreminne. J Cogn Neurosci. 1997;9(4):534–547.
3. Stickgold R, et al. søvnavhengig minnetriage: utviklende generalisering gjennom selektiv prosessering. Nat Neurosci. 2013;16(2):139–145.
4. Fischer S, et al. Søvn danner minne for fingerferdigheter. Proc Natl Acad Sci USA. 2002;99(18):11987–11991.
5. Korman M, et al. Søvn på dagtid kondenserer tidsforløpet for konsolidering av motorminne. Nat Neurosci. 2007;10(9):1206–1213. 6. Robertson EM, et al. Aktuelle konsepter i prosessuell konsolidering. Nat Rev Neurosci. 2004;5(7):576–582.
7. Gui WJ, et al. Aldersrelaterte forskjeller i søvnbasert minnekonsolidering: en metaanalyse. Nevropsykologi. 2017;97:46–55.
8. Harand C, et al. Hvordan påvirker aldring søvnavhengig minnekonsolidering? Front Neurol. 2012;3:8.
9. Scullin MK, et al. Søvn, kognisjon og normal aldring: integrering av et halvt århundre med tverrfaglig forskning. Perspect Psychol Sci. 2015;10(1):97–137.
10. Gudberg C, et al. Søvnavhengig motorisk minnekonsolidering hos eldre voksne avhenger av oppgavekrav. Nevrobiol aldring. 2015;36(3):1409–1416.
11. Mantua J, et al. Søvn fordeler konsolidering av visuomotorisk tilpasningslæring hos eldre voksne. Exp Brain Res. 2016;234(2):587–595.
12. Tucker M, et al. Søvn optimaliserer motoriske ferdigheter hos eldre voksne. J Am Geriatr Soc. 2011;59(4):603–609. 13. Rahhal TA, et al. Sannhet og karakter: kilder som eldre voksne kan huske. Psychol Sci. 2002;13(2):101–105.
14. Mander BA, et al. Prefrontal atrofi, forstyrrede NREM langsomme bølger og svekket hippocampus-avhengig hukommelse ved aldring. Nat Neurosci. 2013;16(3):357–364.
15. Scullin MK. Søvn, hukommelse og aldring: koblingen mellom slow-wave søvn og episodisk hukommelse endres fra yngre til eldre voksne. Psykisk aldring. 2013;28(1):105–114.
16. Baran B, et al. Aldersrelaterte endringer i søvnavhengig omorganisering av deklarative minner. J Cogn Neurosci. 2016;28(6):792–802.
17. Aly M, et al. Effektene av søvn på episodisk hukommelse hos eldre og yngre voksne. Hukommelse. 2010;18(3):327–334.
18. Marshall L, et al. Søvnens bidrag til hippocampus-avhengig minnekonsolidering. Trender Cogn Sci. 2007;11(10):442–450.
19. Breton J, et al. Vri bryteren: mekanismer som regulerer minnekonsolidering. Trender Cogn Sci. 2014;18(12):629–634.
20. Drosopoulos S, et al. Søvns funksjon i spontan restitusjon og konsolidering av minner. J Exp Psychol Gen. 2007;136(2):169–183.
21. Fischer S, et al. Forventet belønning forbedrer offline læring under søvn. J Exp Psychol Lær Mem Cogn. 2009;35(6):1586–1593.
22. Abe M, et al. Belønning forbedrer langsiktig oppbevaring av et motorisk minne gjennom induksjon av offline minnegevinster. Curr Biol. 2011;21(7):557–562.
23. Wilhelm I, et al. Søvn forbedrer selektivt minnet som forventes å være av fremtidig relevans. J Neurosci. 2011;31(5):1563–1569.
24. Cohen G. Minne i den virkelige verden. Hove: Psykologipresse; 1996. 25. Kliegel M, et al. Prospektiv hukommelsesforskning: hvorfor er det relevant? Int J Psychol. 2003;38(4):193–194.
26. Crovitz HF, et al. Målinger av hverdagsminne: mot forebygging av å glemme. Bull Psychonomic Soc. 1984;22(5):413–414.
27. Abichou K, et al. Unge og eldre voksne drar nytte av søvn, men ikke av aktiv våkenhet for hukommelseskonsolidering av hva-hvor-når naturalistiske hendelser. Front Aging Neurosci. 2019;11:58.
28. Leong RLF, et al. Slow wave-søvn letter spontan henting i prospektivt minne. Sove. 2019;42(4):zsz003.
29. McDaniel MA, et al. Strategiske og automatiske prosesser i potensiell minneinnhenting: et multiprosessrammeverk. Appl Cogn Psychol. 2000;14:147–144.
30. Ohayon MM, et al. Metaanalyse av kvantitative søvnparametere fra barndom til alderdom hos friske individer: utvikling av normative søvnverdier gjennom menneskelig levetid. Sove. 2004;27(7):1255–1273.
31. Dubé J, et al. Kortikal tynning forklarer endringer i langsomme søvnbølger i voksen alder. J Neurosci. 2015;35(20):7795–7807.
32. Landolt HP, et al. Effekt av alder på søvn-EEG: saktebølgeaktivitet og spindelfrekvensaktivitet hos unge og middelaldrende menn. Brain Res. 1996;738(2):205–212.
33. Leong RLF, et al. Effektene av søvn på potensielt minne: en systematisk gjennomgang og metaanalyse. Sleep Med Rev. 2019;47:18–27.
34. Rachel S, et al. Effekter av søvn og alder på potensiell hukommelseskonsolidering: en tur i et virtuelt museum. Klokker Sleep. 2019;1(3):332–351.
35. Chee MW, et al. Kognitiv funksjon og hjernestrukturkorrelasjoner hos friske eldre østasiater. Nevrobilde. 2009;46(1):257–269.
36. Folstein MF, et al. "Mini-mental tilstand". En praktisk metode for å gradere pasientens kognitive tilstand for klinikeren. J Psychiatr Res. 1975;12(3):189–198.
37. Sheikh JI, et al. Geriatric Depression Scale (GDS): nyere bevis og utvikling av en kortere versjon. I: Brink TL, redaktør. Klinisk gerontologi: En guide til vurdering og intervensjon. New York: The Haworth Press; 1986.
38. Netzer NC, et al. Bruke Berlin-spørreskjemaet for å identifisere pasienter med risiko for søvnapnésyndrom. Ann Intern Med. 1999;131(7):485–491.
39. Johns MW. En ny metode for å måle søvnighet på dagtid: Epworth søvnighetsskala. Sove. 1991;14(6):540–545.
40. Buysse DJ, et al. Pittsburgh Sleep Quality Index: et nytt instrument for psykiatrisk praksis og forskning. Psykiatri Res. 1989;28(2):193–213.
41. Campbell SS, et al. Naturen til spontan søvn i voksen alder. J Søvn Res. 2007;16(1):24–32.
42. Duffy JF, et al. Aldring og døgnrytmer. Sleep Med Clin. 2015;10(4):423–434.
43. Munk TH. Aldrende menneskelige døgnrytmer: konvensjonell visdom er kanskje ikke alltid riktig. J Biol Rhythms. 2005;20(4):366–374.
44. Iber C, et al. AASM-manualen for scoring av søvn og tilknyttede hendelser: regler, terminologi og tekniske spesifikasjoner. 1. utg. Westchester, IL: American Academy of Sleep Medicine; 2007.
45. Muehlroth BE, et al. Forstå samspillet mellom søvn og aldring: metodiske utfordringer. Psykofysiologi. 2020;57(3):e13523.
46. Wamsley EJ, et al. Reduserte søvnspindler og spindelkoherens ved schizofreni: mekanismer for nedsatt hukommelseskonsolidering? Biol Psykiatri. 2012;71(2):154–161.
47. Warby SC, et al. Søvn-spindeldeteksjon: crowdsourcing og evaluering av ytelsen til eksperter, ikke-eksperter og automatiserte metoder. Nat-metoder. 2014;11(4):385–392.
48. Mander BA, et al. Søvn og menneskelig aldring. Nevron. 2017;94(1):19–36.
49. Scullin MK, et al. Effektene av en ettermiddagslur på episodisk hukommelse hos unge og eldre voksne. Sove. 2017;40(5):zsx035.
50. Helfrich RF, et al. Gamle hjerner kommer frakoblet i søvne: langsom bølge-spindelsynkronisering, hjerneatrofi og glemsel. Nevron. 2018;97(1):221–230.e4.
51. Cherdieu M, et al. Forverrer alder søvnavhengig hukommelseskonsolidering? J Søvn Res. 2014;23(1):53–60.
52. Diekelmann S, et al. Søvn forbedrer potensiell hukommelse ved å lette spontan-assosiative gjenfinningsprosesser. PLoS One. 2013;8(10):e77621.
53. Backhaus J, et al. Midlife-nedgang i deklarativ hukommelseskonsolidering er korrelert med en nedgang i slow-wave søvn. Lær Mem. 2007;14(5):336–341.
54. Varga AW, et al. Effekter av aldring på slow-wave søvndynamikk og konsolidering av menneskelig romlig navigasjonsminne. Nevrobiol aldring. 2016;42:142–149.
55. Muehlroth BE, et al. Nøyaktig langsom oscillasjon-spindelkobling fremmer minnekonsolidering hos yngre og eldre voksne. Sci Rep. 2019;9(1):1940.
56. Cordi MJ, et al. Ingen effekt av reaktivering av ordforråd hos eldre voksne. Nevropsykologi. 2018;119:253–261.
57. McDaniel MA, et al. Doble veier til potensiell erindring. Front Hum Neurosci. 2015;9:392.
58. Gordon BA, et al. Strukturelle korrelater av potensielt minne. Nevropsykologi. 2011;49(14):3795–3800.
59. Pereira N, et al. Aldersforskjeller i hjernesystemer som støtter forbigående og vedvarende prosesser involvert i prospektivt minne og arbeidsminne. Nevrobilde. 2016;125:745–755.
60. Scullin MK, et al. Rask søvn for øyebevegelser medierer aldersrelatert nedgang i potensiell hukommelseskonsolidering. Sove. 2019;42(6):zsz055.
61. Scullin MK, et al. Dynamiske bidrag fra saktebølgesøvn og REM-søvn til kognitiv levetid. Curr Sleep Med Rep. 2018;4(4):284–293.
62. Song Y, et al.; Studiegruppe for osteoporotiske brudd hos menn (MrOS). Forhold mellom søvnstadier og endringer i kognitiv funksjon hos eldre menn: MrOS Sleep Study. Sove. 2015;38(3):411–421.
63. Goschke T, et al. Representasjon av intensjoner: vedvarende aktivering i minnet. J Exp Psychol Lær Mem Cogn. 1993;19(5):1211-1226.
64. Kvavilashvili L. Huske intensjon som en distinkt form for hukommelse. Br J Psychol. 1987;78:507-518.
65. Henry JD, et al. En metaanalytisk gjennomgang av potensielt minne og aldring. Psykisk aldring. 2004;19(1):27–39.
66. Ihle A, et al. Aldersfordeler i hverdagens prospektive minne: påvirkning av personlig oppgaveviktighet, bruk av påminnelser og hverdagsstress. Neuropsychol Dev Cogn B Aldring Neuropsychol Cogn. 2012;19(1-2):84–101.
67. Muehlroth BE, et al. Minnekvalitet modulerer effekten av aldring på minnekonsolidering under søvn: redusert vedlikehold, men intakt gevinst. Nevrobilde. 2020;209:116490.
68. Sonni A, et al. Søvn beskytter minner mot forstyrrelser hos eldre voksne. Nevrobiol aldring. 2015;36(7):2272–2281.
69. Schoch SF, et al. Modulerende påvirkninger av minnestyrke og sensitivitet til gjenfinningstesten på påvisbarheten av søvnkonsolideringseffekten. Neurobiol Lær Mem. 2017;145:181–189.