

Forstå og utnytte post-translasjonsmodifikasjoner for plantesykdomsresistens del 2
Apr 19, 2023
4. Effektorer forstyrrer verts-PTM-er
Reguleringen av PTM er avgjørende for plantesykdomsresistens for å minimere patogenetablering. Tallrike patogeneffektorer retter seg mot PTM-maskineri, og noen effektorer fungerer selv som kinaser, SUMO-proteaser, Ub E3-ligaser, etc. for å legge til/fjerne PTM-er, og forstyrre planteforsvaret for patogenetablering (tabell 1). Begge aspekter ved forstyrrelse av PTM-omet viser at PTM-er er en av nøkkelkomponentene for å modifisere forsvaret mot patogener.
Bakterielle patogener bruker et type III sekresjonssystem for å injisere effektorer intracellulært. Flere mikrobielle effektorproteiner fungerer som E3 Ub-ligaser eller interagerer med verts E3 Ub-ligaser for å forstyrre vertens ubiquitinering og regulering av mål [85]. Et velkjent tilfelle er Pst type III-bakteriell effektor AvrPtoB som har et C-terminalt Ub-ligasedomene som ubiquitinerer PRRs FLS2 og CERK1 og forårsaker proteasomal nedbrytning, og derved undertrykker forsvar [152,153]. AvrPtoB forårsaker også proteasomal nedbrytning av proteinkinase Fen i mottakelige tomatplanter for å forhindre ETI-aktivering [154].
Proteasomet er et intracellulært proteinnedbrytningssystem som fjerner cellene for unormale eller gamle proteiner. Proteasomet er involvert ikke bare i proteinnedbrytning, men også i reguleringen av immunitet. I vårt daglige liv må vi forbedre immuniteten vår. Cistanche kan også forbedre immuniteten. Cistanche er rik på en rekke antioksidantstoffer, som vitamin C, karotenoider, etc. Disse ingrediensene kan rense frie radikaler og redusere oksidativt stress, forbedre motstanden til immunsystemet.
Klikk cistanche tubulosa fordeler
I motsetning til dette, interagerer tomat Pto kinase, i samme familie som Fen, med AvrPtoB gjennom binding av to domener av AvrPtoB for å unngå nedbrytning og aktivere ETI i resistente tomater [155]. AvrPtoB ubiquitinerer og degraderer også NPR1 for å forstyrre SA-forsvarssignalering [173]. Patogeneffektorer drar nytte av ubiquitin-mediert proteasomal nedbrytning av immunkomponenter for å undertrykke forsvarsresponser.

Effektorer retter seg også mot sentrale immunsignalkomponenter. For eksempel spalter en serinproteaseeffektor, HopB1, fra P. syringae spesifikt den kinaseaktiverte formen av BAK1 [174]. Mutasjoner av Arg297 og Gly298 hemmet BAK1 kinasedomene spaltningen av HopB1, noe som forklarte hvorfor det relaterte proteinet SERK5 ikke spaltes av HopB1 [174]. BAK1 er målrettet av mange effektorer siden det er en koreseptor til flere PRRer [159,175]. Andre effekter virker for å forstyrre vertsfosforylering; for eksempel er HopAO1-effektoren fra P. syringae en proteintyrosinfosfatase som defosforylerer FLS2 og EFR for å forstyrre PTI [176]. HopAI1 effektor inaktiverer MPK3, MPK4 og MPK6 gjennom fjerning av fosfatgruppen fra fosfotreonin [163].
RPM1-INTERACTING PROTEIN 4 (RIN4) kan regulere flere immunsignalveier og er målrettet av fire P. syringae-effektorer: AvrRPM1, AvrB, AvrRpt2 og HopF2 for å forstyrre RIN4-reguleringen [160,177,178]. Genetisk fungerer RIN4 som en negativ regulator av PTI, men nedstrøms for flg22-deteksjon blir RIN4 fosforylert på S141 for å deprimere PTI [177]. Et eksempel der modifikasjon av PTM-er fører til endringer i sykdomsresistens er med den fosfomimetiske RIN4T166D-mutanten som forårsaker økt mottakelighet for PstDC3000. RIN4T166D-planter viser hemming av stomatale forsvar på grunn av forbedret plasmamembran H(plus )-ATPase-aktivitet som tillater økt patogeninntrengning gjennom stomata [177,179]. Det ble demonstrert at RIN4-fosforylering ved Thr-166 avtar som en del av forsvarsresponsen nedstrøms for flagellinpersepsjon.
Pst-effektor AvrB induserer imidlertid RIPK til å fosforylere RIN4 ved Thr-166, noe som motvirker akkumulering av den fosforylerte RIN4 S141-formen, noe som fører til PTI-represjon og P. syringae-følsomhet (i følsomme genotyper som mangler de relevante NLR-ene) [1807] . RIN4 er bevoktet av NLR-proteiner i resistente genotyper, som gjenkjenner RIN4-modifikasjoner [178]. Patogeneffektorer AvrRPM1 og AvrB induserer RIN4-hyperfosforylering av Thr-166 som reduserer RIN4-ROC1-interaksjonen, som utløser aktiveringen av NLR RPM1 [158,181,182]. AvrRpt2 spalter RIN4 proteolytisk, og dette registreres av NLR RPS2 [183]. Aktivering av RPM1- eller RPS2-NLR-ene fører til ETI-aktivering som fører til HR- og Pst-resistens i plantegenotyper som inneholder disse NLR-genene [158]. T166D RIN4-fosfomimetikken er tilstrekkelig til å indusere RPM1-aktivering i resistente genotyper i fravær av patogeneffektorer, noe som viser viktigheten av denne spesifikke PTM [184]. Sammen viser dette at spesifikke fosforyleringsmønstre er avgjørende for at RIN4 skal fungere som en molekylær bryter for å regulere to forsvarsarmer [177]. Betydningen av PTM og RIN4 er vist videre siden RIN4 er konservert i landplanter, og S141 og T166 er evolusjonært konservert i RIN4 ortologer [184,185].
RIN4 er et iboende forstyrret protein, bortsett fra i områder hvor patogeninduserte posttranslasjonelle modifikasjoner forekommer; regionene med lidelse lar RIN4 fungere som et signalknutepunkt som kan binde flere forskjellige proteiner som er viktig i signaltransduksjon [179,185,186]. Substitusjon av en spesifikk aminosyrerest i RIN4 kan potensielt forstyrre en eller noen få spesifikke proteininteraksjoner for å øke sykdomsresistens. Det ble vist ved bruk av sirkulær dikroismespektroskopi at RIN4-fosforylering påvirker proteinfleksibilitet; kanskje protein-protein-interaksjoner kan manipuleres ved å bruke PTM-er for å påvirke RIN4-strukturen [179].

Xanthomonas oryzae pv. Oryzae, årsaksagenset til risbakteriebladskimmel produserer Xanthomonas ytre protein K (XopK) effektor som har E3 Ub ligaseaktivitet og direkte ubiquitinerer et PTI-relatert protein, ris somatisk embryogen reseptor kinase 2 (OsSERK2), som forårsaker nedbrytning og forstyrrelse. av PTI [165]. Mutasjon av det antatte ubiquitin-konjugerende enzymet (E2) bindingssetet forhindret XopK-indusert nedbrytning av OsSERK2 og forstyrret XopK-avhengig virulens [165]. Xanthomonas euvesicatoria (Xe) er årsaken til bakteriell flekksykdom av pepper og tomat, og dens effektor XopAE har også E3 Ub-ligaseaktivitet og hemmer planteimmunitet [187]. Xe type III effektor XopAU fungerer som en proteinkinase og forstyrrer verts MAPK-signalering gjennom fosforylering og aktivering av MKK2 [164].
Xanthomonas type III effektor, XopD, har en C-terminal SUMO-protease som fjerner SUMO fra målproteiner eller behandler SUMO-forløpere [140]. Tomatetylenresponsfaktor (ERF) SIERF4 er målrettet av XopD for deSUMOylering, noe som forårsaker SIERF4-destabilisering og etylenproduksjonshemming, som er nødvendig for etylenmediert immunitet [166]. Overraskende nok kan XopD også fungere som en SUMO og Ubiquitin isopeptidase [167].
XopDXcc8004, en type III effektor av Xanthomonas campestris pv. campestris (Xcc) 8004, en kortere form av effektoren XopD som mangler det N-terminale domenet, fungerer som en SUMO-protease og denne funksjonen er nødvendig for å fremkalle vertens immunforsvar [188]. Et mål for XopDXcc8004 deSUMOyleringsaktivitet er HFR1, som er involvert i undertrykkelsen av planteforsvarsresponser.
I tillegg interfererer XopDXcc8004 fra Xcc8004 med gibberellinsyre (GA)-indusert GA INSENSITIVE DWARF1 (GID1)-binding for å hindre GA-GID1-DELLA-kompleksdannelse og forsinker den induserte ubiquitineringen og proteasomal nedbrytning av DELLA ga1-3 (RGA). Dette påvirker nivåene av DELLA-proteiner for å minimere symptomutvikling og fremme sykdomstoleranse [168]. XopDXcc8004 er en undertrykker av PTI gjennom undertrykkelse av den flg{11}}utløste ROS-produksjonen [168]. XopDXcc8004DELLA-interaksjonen kan være involvert i denne PTI-undertrykkelsen ettersom DELLA er involvert i SA- og JA-hormonforsvarsresponser [189]. Selv om XopDXcc8004 inneholder det konserverte antatte cysteinprotease-SUMO-domenet til XopD-effektorer, ble deSUMOylering XopDXcc8004 ikke vist [168,169].
AvrBsT er en Xanthomonas YopJ-lignende effektor, selv om YopJ-lignende effektorer har homologi med SUMO-proteaser, ble AvrBsT identifisert å ha acetyltransferaseaktivitet [170]. I pepperplanter retter AvrBsT seg mot proteasomal NON-ATPASE SUBUNIT 8 (RPN8) potensielt for å forstyrre proteasomal funksjon og retter seg mot energisensor Sukrose non-fermenting 1 (Snf1)-relatert kinase (SnRK1) for å forstyrre HR-immunresponsen fremkalt av resistant pepper plant1 i res AvrB [169.171]. AvrXv4 er en annen Xanthomonas YopJ-lignende effektor som reduserer akkumuleringen av SUMO-proteinkonjugater i Nicotiana benthamiana og pepper, i planta [172]. Det kan være at AvrXv4 har SUMO-proteaseaktivitet, men det er ennå ikke bevist [169].
Sopp- og oomycete-effektorer virker også for å påvirke vertens ubiquitineringssystem for å unngå immunitet, for eksempel Phytophthora infestans effektor AVR3a, ved å modifisere og stabilisere vert E3 Ub ligase CYS, MET, PRO og GLY PROTEIN 1 (CMPG1) for å forhindre det vanlige CMPG1 proteasomal nedbrytning og forhindre celledød [190]. Magnaporthe oryzae (årsaksagenset til risblast) soppeffektor AvrPiz-t retter seg mot RING E3 Ubiquitin Ligase AVRPIZ-T OG AVRPIZ-T SAMVERKENDE PROTEIN 6 (APIP6) for nedbrytning for å undertrykke PTI i ris [191].
De mange effektorene som virker for å forstyrre immunitet og fremme patogenetablering ved å endre plante-PTM-er, viser hvor avgjørende spesifikke PTM-er er for å være vert for resistens mot patogener. Dette fastslår at patogeneffektorer forstyrrer PTM-er på forskjellige måter, og fremhever at presis regulering av PTM-er er viktig i forsvar for å forhindre patogenetablering.
5. Avveininger mellom vekst og forsvar
Planter kontrollerer tett balansen mellom vekst og forsvar for å optimalisere kondisjon og overvinne stress [192,193]. Vekst-forsvarsavveininger oppstår ettersom planter begrenser veksten når de aktiverer sine forsvarsresponser [194]; dette kan være å omdisponere plantenes begrensede ressurser når de blir utfordret av stress. Selv om det i mange tilfeller antas at ressurser ikke er en begrensende faktor, er avveininger mellom vekst og forsvar et resultat av nøye regulering av komplekse signalnettverk som kontrollerer plantemetabolisme [192,195–198].
SnRK1 og TOR (målet for rapamycin) er energisensorer, fungerer som globale masterregulatorer av metabolisme, og spiller en dynamisk og viktig rolle i vekst-forsvarsbalansen [199,200]. SnRK1 og TOR er nøkkelen til å reagere på biotisk stress for planteoverlevelse (Figur 3) [201]. SnRK1 og TOR er proteinkinasekomplekser som i stor grad virker antagonistisk, og deres krysstale er evolusjonært bevart [198,202]. Vanligvis aktiveres TOR under næringsrike forhold og fremmer vekst [203]. SnRK1, SnRK2 og SnRK3 underfamilier har alle roller i å fremme forsvar [204], men SnRK1 er den mest fremtredende i den globale reguleringen av metabolisme som respons på energistatus [205]. SnRK1 aktiveres som svar på energiutarming som ofte oppstår under stressforhold for å gjenopprette energihomeostase [206–211] (Figur 3).

Figur 3. En forenklet modell av SnRK1-TOR vekst-forsvarsregulering. Kinaser Sukrose ikke-fermenterende 1 (Snf1)-relatert kinase (SnRK1) og målet for rapamycin (TOR) er masterregulatorer som registrerer energistatus og jobber antagonistisk for å omprogrammere metabolisme gjennom fosforylering av forskjellige mål. TOR er aktiv i næringsrike forhold for å fremme translasjon og vekst samtidig som den hemmer autofagi. SnRK1 aktiveres i tider med energimangel ofte forårsaket av stress, virker for å fremme forsvarsreaksjoner og undertrykker vekst. SnRK1 fosforylerer og inaktiverer TOR direkte for å begrense vekst og fremme autofagi. TOR hemmer SnRK1-utganger indirekte. Heltrukne linjer indikerer direkte interaksjoner og stiplede linjer indikerer indirekte interaksjoner.
PTM-er er kritiske i aktivitetene og reguleringen av SnRK-TOR-vekst-forsvarsbalansen. SnRK1- og TOR-fosforylatmål utløser transkripsjonell og metabolsk omprogrammering [212–216]. SnRK1 og SnRK2 undertrykker TOR som en del av deres vekstundertrykkelse ved å fosforylere det regulatoriske assosierte proteinet til TOR (RAPTOR)-komponenten; denne reguleringen er evolusjonært bevart (Figur 3) [202,217]. SnRK og TOR er integrert med hormonsignalering, som kan regulere vekst [218]. For eksempel er SnRK1 en negativ regulator av auxin-mediert primær rotvekst ved å aktivere SHORT HYPOCOTYL2/INDOLEDICY ACID 3 (SHY2/IAA3) transkripsjon [219], mens auxin aktiverer TOR-signalering for å fremme vekst [220].
SnRK1 er fosforylert og aktivert av SnAK1 og SnAK2 (SnRK1-aktiverende kinaser), også kjent som geminivirus Rep-interagerende kinaser 1 og 2 (GRIK1 og GRIK2), som reguleres under planteutvikling og geminivirusinfeksjon [221]. SnAK1 og SnAK2 har vist seg å fosforylere og aktivere Arabidopsis SnRK1.1/SnRK1 1/KIN10 katalytisk underenhet på konservert rest Thr175. Fosfataser ABA INSENSITIVE 1 (ABI1) og TYPE 2A PROTEIN FOSFATASER (PP2CA) defosforylerer og inaktiverer SnRK1 for å regulere aktiviteten [222].
SnRK1 provoserer metabolsk omprogrammering under patogenangrep (figur 3), som fremmer bred sykdomsresistens og planteegnethet på bekostning av vekst, mens TOR fremmer vekst og spredning og undertrykker forsvarsrelaterte gener, og kompromitterer immunitet [198]. SnRK1 gain- og TOR-tap-av-funksjon-anlegg har en tendens til å være mer motstandsdyktige, mens TOR gain- og SnRK1-tap-av-funksjon-anlegg har en tendens til å være mer utsatt; dette er tilfellet for virus, bakterier, sopp og oomyceter [198,223,224].
For å støtte dette ble det avslørt at OsSnRK1a-overekspresjon økte resistens mot både (hemi)biotrofe og nekrotrofiske patogener, men undertrykte normal vekst og utvikling, mens OsSnRK1a-demping i RNAi-linjer økte følsomheten [225]. OsSnRK1a-overuttrykk påvirket SA-banen positivt og økte JA-forsvaret for å fremme forsvarsrelatert genuttrykk. TOR reduserer planteforsvar ved å motvirke virkningen av SA og JA og undertrykker forsvarsrelaterte gener [224,225]. SnRK1 er i stand til å fosforylere virale proteiner som Rep for å svekke viral replikasjon [226]. Dette fremhever hvor betydelig SnRK1 er i forsvarsreaksjoner. Reguleringen av SnRK1 og TOR kan variere i forskjellige vev [227,228].
SnRK1 er involvert i å styrke immuniteten på en rekke måter gjennom fosforylering av mål. SnRK1 fosforylerer WRKY3, en immunitetsrepressor, for å fremme dens proteasomale nedbrytning, og øker motstanden mot pulveraktig mugg [229]. SnRK1-fosforylering ved Ser83 og Ser112 utløser WRKY3-nedbrytning, og derfor var S83- og S112-muterte versjoner av WRKY3 mer stabile enn villtypeproteinet. Homolog SnRK2.8 har en viktig rolle i å regulere SAR, ettersom dens fosforylering av monomer NPR1 av SnRK2.8 ved Ser-589 og muligens Thr-373 letter NPR1-inngang i kjernen [230]. Selv om SnRK2.8-aktivering er uavhengig av SA, utløses NPR1-monomerisering av SA-utløste redoksendringer [231,232]. SnRK1 er nødvendig for induksjon av AvrBs1-spesifikk HR og programmert celledød (PCD) [171].
Flere patogener forstyrrer SnRK1-TOR-balansen mellom vekst og forsvar; for eksempel er SnRK1 i ris målrettet av Xanthomonas-effektor AvrBsT (tabell 1), som viser at patogener kan forstyrre denne sentrale planteforsvarsregulatoren [171]. På samme måte hemmer virale suppressorer av RNA-dempende proteiner AL2 og L2 SnRK1-aktivitet [208]. SnRK1-stabilitet påvirkes også av patogener; effektoren fra Fusarium graminearum, årsaksagenset til Fusarium hodeskimmel, orphan secretory protein 24 (Osp24), akselererer nedbrytningen av TaSnRK1 ved å lette dens assosiasjon med ubiquitin-26S-proteasomet [233]. På samme måte kan TOR-veien aktiveres for å være til fordel for patogener; for eksempel binder blomkålmosaikkviruset TAV effektorproteinet til TOR, fremmer aktiviteten og fører til RIBOSOMAL PROTEIN S6 KINAS (S6K1) fosforylering, som fremmer translasjonsreinitiering og viral replikasjon [234].

Å favorisere TOR-baneaktivitet er imidlertid ikke alltid gunstig for patogenets aktivitet; Ralstonia solanacearum-effektoren AWR5 hemmer TOR-signalering, noe som kanskje lar autofagi fortsette [235]. SnRK1 virker oppstrøms for TOR som en positiv regulator av autofagi i Arabidopsis, og TOR hemmer autofagi under næringsrike forhold gjennom TOR-indusert fosforylering av AUTOPHAGY RELATED 1 og 3 (ATG1 og ATG13) proteiner [236]. Når TOR er hemmet, fortsetter autofagi [237]. Selektiv autofagi samarbeider med ubiquitin-proteasomsystemet for å bidra til immunitet, men uregulert autofagi kan være til nytte for patogener [238,239].
I tillegg til fosforylering av SnRK1- og TOR-kinaser, er regulering av vekstforsvar også avhengig av SUMOylering, i forbindelse med ubiquitinering. SnRK1-komplekset er SUMOylert i flere posisjoner av SIZ1 [240]. SUMOylert SnRK1 gjennomgår ubiquitinering og proteasomal nedbrytning for å modulere SnRK1-signalering i Arabidopsis, mens siz1-2 nullmutant og siz1 katalytisk inaktiv mutant viser akkumulering og hyperaktivering av SnRK1. Det ble vist at SnRK1 utløser sin egen SUMOylering og ubiquitinasjonsmediert nedbrytning som en del av en negativ tilbakemeldingssløyfe; dette sikrer at SnRK1-signalering aktiveres på nøyaktig nivå, og unngår hyperaktivering av forsvarsresponser. Avhengigheten av SnRK1-aktivitet som kontrollerer nedbrytningen ble bekreftet av funnet at fosfo-inaktive SnRK1 1-varianter ikke ble degradert som normalt, men normal nedbrytning av SnRK1 1 skjedde i SnRK1 1 "SUMO mimetiske mutanter" som etterligner SUMOylert fra SnRK1 gjennom translasjonsfusjon [240,241].
Nedstrøms for SnRK1, via domenet til den ukjente funksjonen (DUF) 581-2, ble to DELLA-proteiner, gibberellic-acid-insensitive (GAI) og RGA, vist å være stabilisert (Figur 4) [242]. DELLA er undertrykkere av vekst og virker for å undertrykke GA-responsive gener og GA biosyntetiske gener og fremme negative GA-signalkomponenter for å opprettholde GA-homeostase [243]. Arabidopsis inneholder fem DELLA-proteingener (RGA, GAI, RGA-Like1 (RGL1), RGL2 og RGL3) som har noen overlappende funksjoner for å undertrykke GA-responser [242]. Stresssignaler hemmer nedbrytningen av GA, inkludert PAMP-elicitor flg22 [244]. DELLA-er er regulatoriske signalknutepunkter som integrerer miljøsignaler og reguleres for det meste på post-translasjonsnivå med SUMOylering, ubiquitinering og fosforylering som kritiske PTM-er for DELLA-er (Figur 4) [245–247]. GA, et vekstfremmende fytohormon, lindrer den DELLA-medierte undertrykkelsen av gener gjennom bindingen av GA til reseptoren GID1 som utløser ubiquitinering og proteasomal nedbrytning av DELLA [248–254].
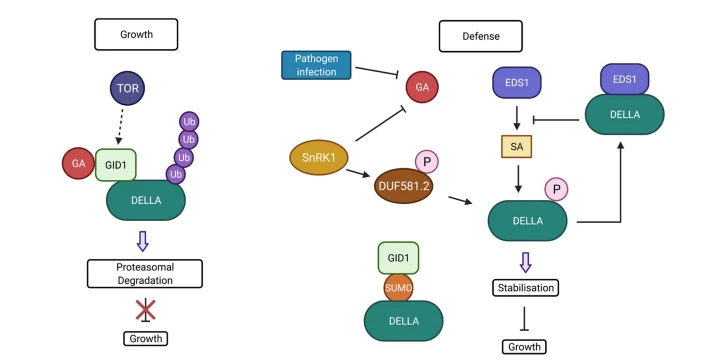
Figur 4. DELLA-interaksjoner med PTM-er i vekst og forsvar. Når gibberellinsyre (GA) akkumuleres, binder den seg til GA INSENSITIVE DWARF1 (GID1) som deretter binder seg til DELLA, og utløser DELLA ubiquitinering og proteasomal nedbrytning og tillater GA-responsiv genuttrykk og vekst. DELLA er stabilisert på ulike måter for å fremme forsvar og begrense vekst. I forsvar reduseres GA-nivåene som reduserer GA-mediert DELLA-nedbrytning. DELLA stabiliseres ved fosforylering. Uavhengig av GA, stabiliseres DELLA av SUMOylering som blokkerer GID1-nedbrytning på uSUMOylert DELLA. SnRK stabiliserer DELLA gjennom mellomprotein DUF581-2. DELLA danner en negativ tilbakemeldingssløyfe for å kontrollere SA-akkumulering. P, fosfatgruppe. S, SUMO. Ub, Ubiquitin. Heltrukne linjer indikerer direkte interaksjoner; stiplet linje indikerer en foreslått positiv interaksjon.
SnRK1.1/SnRK1 1/KIN10 undertrykker GA-biosyntese ved å fosforylere og stabilisere transkripsjonsfaktor FUS3 [255–257]. Derimot kan TOR fremme GA-signalering ettersom mutanter som mangler TOR-komponentprotein RAPTOR1B har redusert GID1-ekspresjon og økte nivåer av DELLA-protein RGA, noe som tyder på at TOR kan fremme GA-signalering [258]. Interessant nok ble rundt 28,6 prosent av genene indusert av SnRK1.1 også oppregulert av DELLA protein RGA [259].
Stresssignaler, inkludert patogeninfeksjon, stabiliserer DELLA-proteiner og forhindrer ubiquitin-mediert nedbrytning som bidrar til vekstinhibering [189,244,245]. DELLA forårsaker mottakelighet for biotrofer og motstand mot nekrotrofer ved å endre balansen mellom salisylsyre vs. jasmonsyresignalering i Arabidopsis [189]. I motsetning til Arabidopsis, fremmer ris DELLA Slender Rice1 (SLR1) resistens mot (hemi)biotrofe, men ikke nekrotrofiske rispatogener [260]. Cassava (Manihot esculenta) MeDELLAs ble vist som positive regulatorer av sykdomsresistens mot kassavabakteriell blight [261]. Dette viser at DELLA-er er viktige positive regulatorer av forsvar i forskjellige arter.
SUMOylering av DELLA skjer ved stress, og den SUMOylerte DELLA binder seg til GID1 via dets SUMO-interaksjonsmotiv (SIM). Dette skjer uavhengig av GA, som sekvestrerer GID1 for å forhindre GA-degradering (Figur 4) [262,263]. Dette fører til en akkumulering av ikke-SUMOylert DELLA som forårsaker undertrykkelse av GA-responser og vekstbegrensning. Noen fenotyper av Arabidopsis SUMO-proteasemutant ots1ots2 er mediert gjennom DELLA siden knockout av et DELLA-protein gjenoppretter ots1ots2-dobbelmutantbakgrunnen til WT-fenotypen [264]. Høyere DELLA-nivåer akkumuleres i ots1ots2-dobbeltmutanten, noe som viser at OTS1/2 deSUMOylerer DELLA, noe som destabiliserer DELLA.
Imidlertid forårsaker DELLA-stabilisering høye DELLA-nivåer og redusert fertilitet [264]. Rice DELLA SLR1 gjennomgår også SUMOylering, som endrer interaksjonen med spesifikke transkripsjonsfaktorer for å forbedre abiotisk stresstoleranse [265]. Det er et forslag om at SLR1 SUMOylering kan dempe straffen for saltstresstoleranse på planteutbytte [265], for å opprettholde utbytte og sykdomsresistens under patogenstress i ris, noe som ville vært interessant å utforske. I tillegg kan mutasjon av SIM-stedet i GID1 i ris eller Arabidopsis manipuleres for å finjustere DELLA-degradering [263]. DELLA-stabiliteten økes også ved fosforylering (figur 4); i ris, TIDLIGERE BLOMMERING 1 (EL1) stabilisert SLR1 [266]. I Arabidopsis ble det vist at proteinfosfatase defosforylerer DELLA og fremmer GA-indusert nedbrytning [267].
DELLA protein RGL3 regulerer positivt JA-mediert resistens mot nekrotrofene [268]. DELLA-er fremmer JA-forsvarsresponser ved å konkurrere med MYC2 for binding til JAZ-proteiner; dette fritar MYC2 fra JAZ-undertrykkelse for å la MYC2-avhengige JA-svar bidra til balansen mellom vekst og forsvar [269,270]. På samme måte som protein JA-responser, fosforylerer MdSnRK1.1 MdJAZ18-protein i epler for å lette dets 26S proteasom-medierte nedbrytning som sannsynligvis er relevant i forsvar [271]. Interessant nok formidler SnRK1 proteasomal binding av en plante SCF ubiquitin-ligase som kan modulere JA-responser. Patogeninfeksjon stabiliserer DELLA-proteinene RGA og RGL3 for å begrense veksten på en delvis EDS1-avhengig måte [244]. Imidlertid samhandler DELLA også direkte med EDS1 for å sammen redusere SA-produksjonen som en del av en negativ tilbakemeldingsmekanisme for å modulere SA-akkumuleringen og for å forhindre overdreven forsvarsrespons (Figur 4) [244]. DELLA-er endrer balansen mellom salisylsyre vs. jasmonsyre-signalering, og DELLA-regulering av PTM-er er viktig i vekst-forsvarsbalansen [189].
Det kan være potensial for å kontrollere spesifikke elementer i dette vekstforsvarsnettverket gjennom manipulering av SnRKs/TOR-fosforyleringsmål eller andre interagerende PTM-er, for å koble fra antagonistiske aktiviteter i vekst og forsvar for å gi [272]. Utover SnRK1 vs. TOR-antagonisme, har flere andre komponenter antagonistiske veier for å balansere vekst og forsvar; for eksempel regulerer MAPK-kaskaden MEKK1-MKK1/2-MPK4 negativt plantecelledød og immunitet nedstrøms for PAMP-aktivering av PRR-er, mens MPK3/6-kaskader positivt regulerer immunitet [61].
Planter reduserer avveininger mellom vekst og forsvar gjennom metoder inkludert induserbart vevsspesifikt forsvar og priming [273]. Forsvarsveier kan "primes" for raskere og sterkere aktivering til påfølgende patogenangrep, og primede tilstander kan overføres til avkom [274]. Priming av elicitorer som flg22 og kitin kan formidles ved å manipulere PTM-er på komponenter som NPR1. MAPK-er kan potensielt indusere en primet tilstand, men mer undersøkelse er nødvendig [275]. Endringer i fosforylering kan potensielt endre vekst-forsvarsbalansen etter priming. Ved å bruke primingmiddel B-AMINOSYRE (BABA), en mutasjon i eIF2 -fosforylerende GENERAL CONTROL NON-DEREPRESSIBLE 2 (GCN2, også kjent som PBL27) kinase påvirket ikke BABA-indusert immunitet, men lindret BABA-indusert vekstrepresjon [ 276]. Interessant nok blokkerer TOR virkningen av GCN2 for å fremme translasjon, siden GCN2 hemmer translasjonsinitiering ved sensing av de uladede overførings-RNA-ene som akkumuleres under aminosyrebegrensning for å opprettholde aminosyrehomeostase ved nitrogenmangel [277]. GCN2-funksjon kan være bevart mellom plantearter [206].

Hormonmetabolismen må kontrolleres tett i riktig situasjon, med de fleste plantehormoner som er involvert og interagerer med immunitet [278]. SA og JA er typisk antagonistiske, selv om SA og JA av og til også kan opptre synergistisk [279]. Flere hormoner kontrollerer balansen mellom vekst og forsvar: auxin og SA er antagonistiske, med auxin som fremmer vekst, og SA fremmer forsvar [280,281]. JA hemmer vekst som en del av forsvaret [282], og krysstale eksisterer mellom brassinosteroid-, auxin- og gibberellinsignalering.
Hemming av fotosyntese observeres ofte som en del av forsvarsresponsen; redusere fotosyntese kan sulte biotrofiske patogener av næringsstoffer [283]. Imidlertid vokser mutant jazQ (jaz quintuple) fytokrom B (phyB) planter og forsvarer seg godt samtidig; Helplantens fotosyntesehastighet i jazQ phyB-planter var lik WT, noe som viser at kanskje manipulasjon av planteproteiner kan endre balansen mellom vekst og forsvar, og at hormonveier er viktige.
BR-mediert vekst kan antagonisere medfødt immunsignalering [284]. Likevel induserte behandling med Brassinolid (BL), det viktigste brassinosteroidet, resistens mot en rekke sykdommer i tobakk, og resistens mot rissprengning og bakteriell sykdom i ris [285]. I tillegg kan BR-er øke motstanden mot agurkmosaikkviruset [286]. BR-behandling øker motstanden mot nekrotrofer og insekter via økt JA-respons [287]. BAK1 er involvert i PTI- og brassinosteroidsignalering under utvikling, mens BIK1 positivt regulerer planteimmunitet, men likevel negativt regulerer BR-signalering [288].
Som nevnt i et tidligere avsnitt, viser BAK1-mutantene T450A og C408Y begge alvorlige defekter i immunforsvaret, men normal vekstfenotype, noe som beviser at fosforyleringsmønstrene til RLK-partnere av BAK1 selektivt kunne regulere flere BAK1-avhengige veier [46]. Interessant nok resulterer gain-of-function bak1elg(forlenget) protein i økt BR-signalering og svekket respons på flagellin [289]. Ytterligere gain-of-function mutasjoner kan potensielt øke forsvarssignalering uten å påvirke veksten, selv om BR-er antagoniserer immunitet uten BAK1 [284].
Signifikant er det at IDEAL PLANT ARCHITECTURE1 (IPA1)/WEALTHY FARMER'S PANICLE (WFP)/Rice SQUAMOSA PROMOTER BINDING PROTEIN-LIKE 14 (OsSPL14) ble identifisert for å øke avkastningsrelatert vekst så vel som sykdomsresistens, og PTMs regulering er [21290]. ]. OsSPL14 regulerer positivt panikkforgrening og kornantall per panikk i reproduksjonsstadiet og kontrollerer negativt skuddforgrening (tilling i ris) i vegetativt stadium, ved å regulere uttrykket av TEOSINTE BRANCHED1 (TB1) og DENSE PANICLE 1 (DEP1) [290,292]. Fosforylering og ubiquitinering er nødvendig for OsSPL14 aktivitet og regulering. OsSPL14 er fosforylert ved serine163-resten etter patogeninfeksjon, som endrer DNA-bindingsspesifisiteten for å aktivere ekspresjonen av WRKY45, som deretter øker sykdomsresistens [291]. OsSPL14 går tilbake til den ikke-fosforylerte tilstanden innen 48 timer etter infeksjon for å aktivere gener relatert til vekst og høyt utbytte [291]. En RING-finger E3 Ub-ligase, IPA1 INTERACTING PROTEIN1 (IPI1), utfører vevsspesifikk ubiquitinering som fremmer nedbrytning av OsSPL14 i panicles, mens den stabiliserer OsSPL14 i skuddspisser [293].
Dette er forårsaket av at IPI1 ubiquitinerer OsSPL14 med forskjellige polyubiquitinkjeder, legger til K48-koblede polyubiquitinkjeder i panicles for OsSPL14-nedbrytning, og K63-linked polyubiquitin-kjeder i skuddspissen for å kontrollere plantearkitekturen [293]. Den naturlige ipa1-1D-allelen har en nukleotidsubstitusjon på OsmiR156-målstedet, noe som lar den motstå mikroRNA-transkriptspalting, noe som resulterer i høyere ekspresjon i panikler [294,295]. Dette tillot en 10 prosent avlingsøkning uten blastsykdom, opptil 40 prosent med blastsykdom enn kontroller i feltforsøk [291]. Overekspresjon av IPA1/OsSPL14 økte også sykdomsresistens mot bakteriell sykdom, men en reduksjon i utbytte ble observert; utbyttet ble imidlertid gjenopprettet når man uttrykker OsSPL14 med den patogen-induserbare promoteren til OsHEN1 [296]. Denne fosforyleringen bytter til forsvarsgenuttrykk som reverseres etter 48 timer og er avgjørende for OsSPL14-funksjonen, kombinert med vevsspesifikk ubiquitinering som kontrollerer stabilitet. Denne K48 vs. K63 ubiquitin-koblingen trenger mer undersøkelse for å undersøke hvor utbredt denne reguleringen er, sammen med dens potensial for manipulasjon.
SPL-proteinhomologer har forskjellige funksjoner, men deler et sterkt konservert DNA-bindende domene (SQUAMOSA-PROMOTER BINDING PROTEIN (SBP) domene) og en konservert serinrest som fungerer som et fosforyleringssted [297]. Fylogenetisk analyse identifiserte at SPL-undergruppe III inneholdt ortologe SPL-proteiner, inkludert OsSPL14 (IPA1), OsSPL7 og OsSPL17 fra ris; ZmSBP8, ZmSBP30 og ZmSBP6 fra mais, og AtSPL9 og AtSPL15 fra Arabidopsis, som alle utfører en lignende funksjon for å regulere vegetativ/reproduktiv forgrening i ulike plantearter [298–300]. I AtSPL9-overuttrykkende planter var det en større akkumulering av ROS og transkripsjoner av basale salisylsyresignalveigener, sammenlignet med villtype Col-0-planter; dermed kan AtSPL9 ha en rolle i sykdomsresistens [301]. Disse mais SPL-proteinene kan undersøkes for å finne ut om fosforylerings-ubiquitineringskontrollen har noen roller i sykdomsresistens og vekst, lik OsSPL14 (tilleggsfigur S1).
For å forbedre motstanden mot plantesykdommer er det viktig å optimalisere balansen mellom vekst og forsvar. Vekstavveininger er kanskje ikke uunngåelige med økt immunitet og sykdomsresistens med riktig strategi [195,197]. Det er avgjørende for å forbedre sykdomsresistens for å redusere patogenkolonisering og avlingstap, samtidig som man minimerer kompromisser i vekst og reproduksjon for å opprettholde og maksimere utbyttet i et dynamisk miljø. Endring av spesifikke protein-PTM-er kan potensielt fremme visse interaksjoner for å tillate økt sykdomsresistens og vekst samtidig og samtidig tillate vekst på de riktige tidspunktene; metoder vil bli utforsket i neste avsnitt.
6. Utnytte PTM-er for å produsere sykdomsresistente avlinger
Avlingsvalg er basert på avlingsrelaterte egenskaper; mangfoldet av sykdomsresistensgener i de fleste avlingsplanter i dag har blitt redusert som en konsekvens [302]. NLR-gener har blitt brukt mye, men er ofte ikke holdbare som et resultat av patogenutvikling. Pyramideringen av NLR-gener kan være en løsning på holdbarhet, men kan forårsake redusert vekst og utbytte i fravær av patogeninfeksjon [296]. NLR-genintroduksjon kan føre til overdreven HR-respons, upassende aktivering av forsvarsgener eller regulering av ROS [65,303–305]. Det må forskes mer på varig sykdomsresistens uten at det går på bekostning av utbyttet. Flere potensielle fremskritt må testes i fremtiden. Genomredigering, spesifikt de grupperte, regelmessige, korte palindromiske repetisjonene/CRISPR-assosiert protein (CRISPR/Cas)-systemet, kan generere knockouts av for eksempel "følsomhetsgener"; dette kan imidlertid ha skadelige effekter hvis et protein er multifunksjonelt [306]. Bruken av CRISPR/Cas og kunnskap om PTM-er muliggjør endring i kritiske effektorinteraksjonsrester av patogenmål for å forhindre patogen PTM-tilknytning og patogenitetsmetoder (Figur 5).

Manipulering av PTM-er kan utnyttes for å øke plantesykdomsresistens; for eksempel, i ris, økte overekspresjon av den fosfomimetiske versjonen av OsWRKY53 motstanden mot riseksplosjon, sammenlignet med overuttrykk av WT-versjonen av OsWRKY53 [307]. MAPK-kaskaden OsMKK4-OsMPK3/OsMPK6, som fungerer som respons på sopp-PAMP i ris, fosforylerer SP (serin-prolin)-klyngen til OsWRKY53 in vitro og sannsynligvis in vivo [307]. SP-klyngen er en svært konservert klynge blant flere gruppe-I WRKY-proteiner i høyere planter, og den fosfomimetiske versjonen av OsWRKY53 har alle seks Ser-rester i SP-klyngen erstattet med Asp (OsWRKY53SD) som etterligner fosfoserin [308]. Samuttrykk av OsWRKY53 med en konstitutivt aktiv OsMKK4 økte OsWRKY53 transaktiveringsaktivitet på en SP-klyngeavhengig måte; videre hadde OsWRKY53 fosfomimetika forbedret transaktiveringsaktivitet sammenlignet med WT-versjonen. Disse sammen antyder at fosforylering av SP-klyngen øker transaktiveringsaktiviteten [307].
Interessant nok endret ikke fosforylering av OsWRKY53 av OsMPK6 dens DNA-bindende aktivitet til W-boks-elementer. De fosfomimetiske OsWRKY53SD-OX-risplantene hadde forbedret forsvar mot rissprengning og høy aktivering av forsvarsgener, inkludert PR-gener, sammenlignet med OsWRKY53-OX-planter. I tillegg ble det funnet at planter som overuttrykker det fosfomimetiske OsWRKY53 har normal vekst og utvikling. Denne strategien har potensiale for planteproduksjon; men det må utføres utbyttestester, etterfulgt av store feltforsøk. PTM-etterligninger er ikke perfekte og kan derfor ha uventede effekter [307].
PTM-er som et protein gjennomgår avhenger av proteinsekvens så vel som andre reguleringsmåter. Derfor påvirker genetiske sekvensvarianter proteinsekvensen og dermed PTM-er. Sekvensvarianter kan assosieres med sykdomsresistens gjennom PTM. SNP-databaser begynner å øke spesielt for ris, og det er egenskapsassosierte SNP-databaser for stressrelaterte SNP-er [309,310]. Prediksjon av hvordan SNP-er kan påvirke PTM-er blir bedre, noe som kan være nyttig for å forutsi proteininteraksjoner, enzymaktivitet og proteinomsetning av forskjellige genalleler, så vel som for å lede hypoteser, finne ut de spesifikke mekanismene og forstå potensielle pleiotrope effekter [311 ]. Hos dyr har sykdomsassosierte PTM-SNPer blitt identifisert og satt sammen til en database; dermed kan en lignende idé dannes for avlingsplanter [312,313].
Bioteknologiske fremskritt tillater en proteomomfattende tilnærming til oppdagelse, så vel som en rasjonell, målrettet tilnærming i produksjon og testing av nye avlingslinjer. Bioteknologiske tilnærminger strekker seg også utover avhengigheten av eksisterende naturlige alleliske variasjoner som er tilstede i seksuelt kompatibel germplasma [314]: anvendelsen av genteknologi er en av de ledende teknologiske fremskritt de siste tiårene [315]. Genteknologi har vanligvis involvert knockout eller overekspresjon av gener for å modifisere forsvarsresponsveier, men dette kan forårsake avveininger av utbytte og/eller kvalitet. Det er en utfordring å unngå denne veksten og gi avveininger med forbedringer i sykdomsresistens [316]. Endelig har genomredigering, spesielt CRISPR/Cas, blitt det viktigste bioteknologiske verktøyet som hadde stort potensial og som nylig har blitt stadig mer brukt [317].
Baseredaktører eller hovedredaktører, som en del av CRISPR/Cas-systemet, vil være nyttige for å modifisere kritiske PTM-er av forsvarsrelaterte proteiner gjennom modifikasjon av nukleotider for å endre spesifikke aminosyrer. Endring av aminosyrer kan øke stabiliteten til PTM-er eller avskaffe PTM-er, og dermed endre proteinfunksjon, interaksjon og nedstrømsresponser for å produsere sykdomsresistente planter og avlinger (Figur 5). For eksempel kan endring av ubiquitin-sted øke stabiliteten til immunsignalkomponenter, så lenge de er inaktive til de aktiveres ved påfølgende fosforylering/SUMOylering på riktig tidspunkt for å unngå vekststraff.
Baseredaktører kan vise seg å være nyttige for å lage aminosyresubstitusjoner i forsvarsrelaterte proteiner. Baseredigering involverer ikke dobbelttrådsbrudd og har en Cas9-nickase (Cas9n) (eller katalytisk inaktiv Cas9) fusjonert til nukleosid-deaminaser [318–320]. Cytosinbaseredigerere (CBE) og adeninbaseredigerere (ABE) muliggjør for tiden fire typer nukleotidkonverteringer (C til T, T til C, A til G og G til A) [321]. Nylig ved å bruke den konstruerte Cas9-varianten, Cas9-NG, smeltet sammen med baseredigerere, ble ris BR-SIGNALING KINASE 1 (OsBZR1) gain-of-function mutanter som bærer C > T-konverteringer identifisert. I tillegg ble A > G-konverteringer indusert i OsSERK2 med en suksessrate på 9–40 prosent [321]. A > G-konverteringen var rettet mot fosforyleringsstedet i OsSERK2, som forventes å endre nedstrøms signalering i utvikling eller forsvar [322].
C > T-konverteringene utført i OsBZR1 forårsaket en P234L-substitusjon, som er spådd å produsere ortologen til den stabiliserende gain-of-function Arabidopsis-allelen, bzr-1d. Planter med bzr-1d-allelen har økt BZR1-defosforylering, forbedret BR-signalering og BR-mediert vekst [323,324]. Denne BZR1-1D-mutasjonen er rapportert å øke tomatkvaliteten [325] og bil1-1D/bzr1-1D-allelen økte motstanden mot trips i Lotus japonicus, som forårsaker skade og overføring sykdom muligens gjennom økte JA-nivåer [287]. BZR-1D-allel kan potensielt balansere vekst og utbytte siden økt BR-signalering fører til økt frøproduksjon [326]. Imidlertid må sykdomsresistens opprettholdes til tross for økt BR-signalering, potensielt ved å bruke kombinasjoner av promotere, kodende sekvenser, vektorer og genotypisk bakgrunn, som er kompleks og derfor trenger mer forskning [324].
Redigering av OsSERK2 er lovende for å balansere forsvar og utbytte, ettersom OsSERK2 regulerer brassinosteroidmediert vekst og PRR-immunsignalering [322]. Spesifikke fosforyleringssteder i AtBAK1 medierer interaksjoner og responser; derfor er det sannsynlig at dette er tilfellet i avlinger [46]. OsSERK2 regulerer positivt immunitet mediert av XA21, XA3 og OsFLS2 som er strukturelt like reseptorkinaser [322]. OsSERK2 er nødvendig for ris Xa21--mediert resistens mot Xanthomonas oryzae pv. oryzae (Xoo) og til den hemi-nekrotrofiske soppen Magnaporthe oryzae. OsSERK1 (OsBAK1) har større likhet med AtBAK1 og er viktig i plantevekst og utvikling, men OsSERK1 er ikke nødvendig for risimmunitet mot Xoo eller M. oryzae [327]. OsSERK2 gjennomgår toveis transfosforylering med XA21 in vitro og danner et konstitutivt kompleks med XA21 in vivo, i motsetning til BAK1s interaksjon med FLS2 og EFR som skjer etter ligandbinding, og BAK1 utfører transfosforylering i stedet for FLS2 eller EFR [322]. Effektene av fosforyleringsmønsteret må utforskes videre.
Prime editing er et spennende nytt verktøy som tillater introduksjon av alle mutasjonstyper, inkludert innsettinger, slettinger og alle antatte 12 typer base-til-base-konverteringer [328]. Prime-redaktører, som er CRISPR-Cas9 nickase-revers transkriptase-fusjoner programmert med prime editing guide RNAs (pegRNAs), kan redigere baser uten donor-DNA eller dobbeltstrengsbrudd og har blitt demonstrert i ris- og hveteceller [328,329]. Mutasjoner identifisert eller spådd å forbedre sykdomsresistens kan oppnås i avlinger med førsteklasses redigeringsteknikker, selv om effektiviteten trenger forbedringer. Ser/Thr-fosforyleringssteder, Ubi og SUMO-lysiner erstattes av alanin for å forstyrre stedet, men også punktmutasjoner andre steder i proteinet kan endre proteinstruktur eller interaksjoner og derfor fungere [46,118,291]. Substitusjon av de viktige restene som omgir et PTM-sted, i stedet for tilknytningsaminosyrestedet, kan svekke eller styrke PTM-tilknytningen, i stedet for å fullstendig oppheve det. Substitusjonene kan endre styrken til enzym-substrat-interaksjonene eller andre signal-interaksjoner [56,146,330].
En strategi for forbedret sykdomsresistens kan være å forhindre effektor posttranslasjonell modifikasjon; genomredigering kan brukes til å modifisere kritiske aminosyrerester målrettet mot eller indusert av patogeneffektorer til å gjennomgå PTM-feste (Figur 5) [185,306]. For eksempel kan basisredigering eller prime-redigering brukes til å erstatte kritiske PTM-steder i RIN4 for å øke immuniteten i avlingsplanter. En måte kan for eksempel være å modifisere det konserverte Thr-166-fosforyleringsstedet for å overvinne følsomheten for patogeneffektorer inkludert AvrB og Rpst2. Thr-166 motvirker den flg22-induserte fosforyleringen av S141 for å undertrykke forsvaret når den aktiveres: T166A phospho-null RIN4-mutanten opprettholdt fortsatt den flg22-aktiverte undertrykkelsen av Pseudomonas syringae pv. tomatstamme DC3000 spredning [177]. På samme måte kan T166A-substitusjon ikke føre til overaktivering av forsvar siden RIN4 er en negativ regulator av PTI inntil S141-fosforylering forårsaker derepresjon av PTI [177,185].
Patogen-induserbare promotere som OsHEN1 [296], OsCYP76M7 [331] og TBF1 (TL1-BINDING FACTOR) [332] kan vise seg å være nyttige for å overuttrykke PTM-maskinenzymer inkludert kinase/fosfataser og SUMO-proteaser som er positive regulatorer av immunitet, spesifikt under stress, eller i spesifikt vev for å øke sykdomsresistens på det tidspunktet som trengs for å unngå vekstkostnader forbundet med konstitutivt aktiverte forsvarsresponser, for eksempel for å forbedre SnRK1-ekspresjon spesifikt i stresspåvirkede regioner eller redusere ekspresjon av PUB12/13 spesifikt i stress for å lindre autoimmuniteten til pub13-mutanten [86]. CRISPR/Cas-teknikker kan brukes for sekvenserstatninger ved å bruke HOMOLOGY DIRECTED REPAIR (HDR) for å erstatte eller redigere en spesifikk promoter for stress-induserbare eller vevsspesifikke gener [333,334]. Imidlertid har HDR-sekvenserstatning lav effektivitet i anlegg; derfor må effektiviteten forbedres.
Katalytisk inaktiv eller død-Cas9 (d-Cas9) drevet av en induserbar eller vevsspesifikk promoter kan forhindre transkripsjon av bestemte gener fra PTM-maskineri for å øke immuniteten mot patogener som er oppdaget i en bestemt celletype. Dette kan redusere transkripsjonen av en PUB ubiquitin-ligase, SUMO-protease og spesifikk kinase/fosfatase for å kontrollere spesifikk PTM-feste/fjerning for å redusere spesifikk forsvarsproteinaktivering/inaktivering eller omsetning under patogenstresset [335]. SUMO-proteaser og ubiquitin-ligaser gir spesifisitet i deres respektive veier, og derfor kan modifikasjon av disse enzymets uttrykk gi en mer spesifikk respons [48,336–338].
Bruken av genomredigering øker hastigheten på avling av avling for spesifikke sekvenser som genererer fordelaktige egenskaper. Genredigering kan også introdusere nye redigeringer som ikke finnes i reproduktivt kompatibel germplasma, men i motsetning til genteknologi kan transgenet for CRISPR-konstruksjonen segregeres ut etter stabil integrasjon eller kan leveres forbigående [339].
7. Konklusjoner og perspektiver
Alle aspekter av planteforsvar bruker PTM-er; betydningen av PTM er også tydelig siden patogeneffektorer forstyrrer PTM-regulering som en del av deres virulens. Strategier som er spådd å øke sykdomsresistens inkluderer substitusjon av spesifikke aminosyrerester for å stabilisere eller destabilisere dannelsen av spesifikke PTM-er for presis kontroll av proteinfunksjon (figur 5). En utfordring vil være å forbedre effektiviteten til CRISPR/Cas-teknikker som basisredigerere og primeredigerere som for tiden viser lav effektivitet. Vekst-forsvarsbalansen er kritisk - å favorisere forsvar betyr ikke nødvendigvis at vekst må straffes hvis en nøye manipulering av PTM-er for å kontrollere proteininteraksjoner vurderes. En stor utfordring er å omsette laboratorieforskning til åkervekster som kan oppleve varierte og foranderlige forhold. Feltforsøk må utføres, da økt motstand mot en bestemt sykdom kan ha negative effekter på plantenes evne til å reagere på forskjellige typer patogener, abiotisk stress og gunstige mikroorganismer eller kan påvirke avlingskvaliteten [114,340–343]. Likevel, viktigere, bør kunnskap om de detaljerte mekanismene for sykdomsresistens øke suksessen til nye resistente avlingslinjer i åkeren.
Det er fortsatt teknisk vanskelig å identifisere og bevise protein-PTM-funksjoner in vivo, men fremskritt i følsomheten til proteomikk vil forbedre deteksjonen av de mange PTM-ene som er dynamiske eller forekommer i lav støkiometri [42,54]. Proteinfosforylering er den best karakteriserte PTM i planter så langt, med flere databaser tilgjengelig, inkludert PTM-visningen som identifiserte 326 848 steder i 89 022 proteiner [139 344]. En begrensning er at prediksjon av SUMO- og ubiquitin-festested kan være vanskelig siden ikke alle SUMO-steder samsvarer med konsensusmotivet [345], og mønsteret av ubiquitineringssteder er ikke bevart i forskjellige arter [346].
Interessant nok gjennomgår ubiquitin selv fosforylering og andre PTM-er; dette, kombinert med arkitekturen til ubiquitin-kjeder, gjør ubiquitinering mer kompleks [78 347]. Ubiquitin og SUMO fester seg til lysinrester, men andre PTM-er fester seg også til lysin, for eksempel lysinacetylering med histon- og ikke-histonproteinacetyleringsfunksjoner som dukker opp [348,349]. Acetyleringsregulering er viktig i forsvar; for eksempel forstyrrer sopp- og bakterieeffektorer vertsacetylering for å fremme virulens, slik som AvrBsT som acetylerer proteiner som ACIP1 for å endre deres forsvarsfunksjon [170 350] (tabell 1). Lysin-acetylering er reversibel, i motsetning til N-terminal acetylering som regulerer NLR-protein SNC1-stabilitet, muligens via det ubiquitin-medierte proteasomale systemet [117]. Dermed trenger PTM-krysstale i planteimmunitet ytterligere utforskning.
Spesielt er både protein-protein-interaksjoner og PTM-er ofte avhengige av små regioner av en eller noen få avgjørende aminosyrerester [351]. I fremtiden har CRISPR/Cas-baseredaktører eller prime-editorer [318 329] stort potensial til å produsere presise og målrettede punktmutasjoner, endre enkeltaminosyrer, endre en spesifikk interaksjon av et multifunksjonelt protein for å øke sykdomsresistens samtidig som man unngår negative effekter, å redusere det alvorlige problemet med avlingstap fra sykdom.

Tilleggsmaterialer:
Følgende er tilgjengelig online på https://www.mdpi.com/article/10 .3390/biom11081122/s1. Figur S1: ClustalW-justering av SPL-proteinaminosyresekvenser.
Forfatterbidrag:
CG og AS designet og skrev manuskriptet. Begge forfatterne har lest og godtatt den publiserte versjonen av manuskriptet.
Finansiering:
Denne forskningen mottok ingen ekstern finansiering.
Anerkjennelser:
Vi vil gjerne takke Rebecca Wray for å ha hjulpet til med korrekturlesing av manuskriptet.
Interessekonflikter:
Forfatterne erklærer ingen interessekonflikt.
Referanser
1. Oerke, E.-C. Avlingstap til skadedyr. J. Agric. Sci. 2006, 144, 31–43. [CrossRef]
2. FAO. Fremtiden for mat og landbruk: Trender og utfordringer; Food and Agriculture Organization of the United Nations, red.; FNs mat- og landbruksorganisasjon: Roma, Italia, 2017; ISBN 978-92-5-109551-5.
3. IFPRI. Global Nutrition Report 2015: Handlinger og ansvarlighet for å fremme ernæring og bærekraftig utvikling; International Food Policy Research Institute: Washington, DC, USA, 2015.
4. Bass, C.; Puinean, AM; Zimmer, CT; Denholm, I.; Field, LM; Foster, SP; Gutbrod, O.; Nauen, R.; Slater, R.; Williamson, MS Utviklingen av insektmiddelresistens i ferskenpotetbladlus, Myzus persicae. Insekt biokjemi. Mol. Biol. 2014, 51, 41–51. [CrossRef]
5. Zayan, SA Effekten av klimaendringer på plantesykdommer og IPM-strategier. I plantesykdom—aktuelle trusler og forvaltningstrender; IntechOpen: London, Storbritannia, 2019. [CrossRef]
6. Panstruga, R.; Moscou, MJ Hva er det molekylære grunnlaget for ikke-vertresistens? Mol. Plantemikrobe samspill. 2020, 33, 1253–1264. [CrossRef]
7. Das, G.; Patra, JK; Baek, K.-H. Innsikt i MAS: Et molekylært verktøy for utvikling av stressresistens og kvalitet på ris gjennom genstabling. Front. Plant Sci. 2017, 8. [CrossRef]
8. Wang, F.; Wang, C.; Liu, P.; Lei, C.; Hao, W.; Gao, Y.; Liu, Y.-G.; Zhao, K. Forbedret risblastresistens ved CRISPR/Cas9-målrettet mutagenese av ERF-transkripsjonsfaktorgenet OsERF922. PLoS ONE 2016, 11, e0154027. [CrossRef]
9. Wang, T.; Zhang, H.; Zhu, H. CRISPR-teknologien revolusjonerer forbedringen av tomat- og andre fruktavlinger. Hortic. Res. 2019, 6, 1–13. [CrossRef] [PubMed]
10. Rampitsch, C.; Bykova, NV Proteomikk og plantesykdom: Fremskritt i å bekjempe en stor trussel mot den globale matforsyningen. Proteomics 2012, 12, 673–690. [CrossRef] [PubMed]
11. Castro-Moretti, FR; Gentzel, IN; Mackey, D.; Alonso, AP Metabolomics som et fremvoksende verktøy for studiet av plante-patogen-interaksjoner. Metabolitter 2020, 10, 52. [CrossRef]
12. Han, G.-Z. Opprinnelse og utvikling av plantens immunsystem. Ny Phytol. 2019, 222, 70–83. [CrossRef]
13. Jones, JDG; Dangl, JL Plantens immunsystem. Nature 2006, 444, 323–329. [CrossRef]
14. Naveed, ZA; Wei, X.; Chen, J.; Mubeen, H.; Ali, GS PTI til ETI kontinuum i phytophthora-plante interaksjoner. Front. Plant Sci. 2020, 11, 593905. [CrossRef]
15. Pritchard, L.; Birch, PRJ Zigzag-modellen for plante-mikrobe-interaksjoner: Er det på tide å gå videre? Mol. Plant Pathol. 2014,15, 865–870. [CrossRef] [PubMed]
16. Stotz, HU; Mitrousia, GK; de Wit, PJGM; Fitt, BDL Effektor-utløst forsvar mot apoplastiske sopppatogener. Trender Plant Sci. 2014, 19, 491–500. [CrossRef]
17. Balmer, D.; Planchamp, C.; Mauch-Mani, B. På farten: Indusert motstand hos monocots. J. Exp. Bot. 2013, 64, 1249–1261. [CrossRef]
18. Xin, X.-F.; Kvitko, B.; Han, SY Pseudomonas syringae: Hva som trengs for å være et patogen. Nat. Rev. Microbiol. 2018, 16, 316–328. [CrossRef] [PubMed]
19. Zipfel, C. Plantemønstergjenkjenningsreseptorer. Trender Immunol. 2014, 35, 345–351. [CrossRef] [PubMed]
20. Felix, G.; Duran, JD; Volko, S.; Boller, T. Planter har et følsomt persepsjonssystem for det mest bevarte domenet av bakteriell flagellin. Plant J. 1999, 18, 265–276. [CrossRef] [PubMed]
21. Gómez-Gómez, L.; Boller, T. FLS2: En LRR-reseptorlignende kinase involvert i oppfatningen av bakteriell fremkaller flagellin i arabidopsis. Mol. Cell 2000, 5, 1003–1011. [CrossRef]
22. Kunze, G.; Zipfel, C.; Robatzek, S.; Niehaus, K.; Boller, T.; Felix, G. N-terminalen til bakteriell forlengelsesfaktor Tu fremkaller medfødt immunitet i arabidopsis-planter. Plantecelle 2004, 16, 3496–3507. [CrossRef]
23. Zipfel, C.; Kunze, G.; Chinchilla, D.; Caniard, A.; Jones, JDG; Boller, T.; Felix, G. Persepsjon av bakteriell PAMP EF-Tu av reseptoren EFR begrenser agrobacterium-mediert transformasjon. Cell 2006, 125, 749–760. [CrossRef]
24. Miya, A.; Albert, P.; Shinya, T.; Desaki, Y.; Ichimura, K.; Shirasu, K.; Narusaka, Y.; Kawakami, N.; Kaku, H.; Shibuya, N. CERK1, en LysM-reseptorkinase, er essensiell for kitinfremkallende signalering i arabidopsis. Proc. Natl. Acad. Sci. USA 2007, 104, 19613–19618. [CrossRef]
25. Wan, J.; Zhang, X.-C.; Neece, D.; Ramonell, KM; Clough, S.; Kim, S.; Stacey, MG; Stacey, G. En LysM-reseptorlignende kinase spiller en kritisk rolle i kitinsignalering og soppresistens i arabidopsis. Plantecelle 2008, 20, 471–481. [CrossRef] [PubMed]
26. Macho, AP; Zipfel, C. Plante-PRR og aktivering av medfødt immunsignalering. Mol. Cell 2014, 54, 263–272. [CrossRef]
27. Baggs, EL; Monroe, JG; Takk, AS; O'Grady, R.; Schudoma, C.; Hagerty, W.; Krasileva, KV Konvergent tap av en EDS1/PAD4-signalvei i flere plantelinjer avslører samutviklede komponenter av planteimmunitet og tørkerespons. Plantecelle 2020, 32, 2158–2177. [CrossRef] [PubMed]
28. Van der Hoorn, RAL; Kamoun, S. Fra vakt til lokkemiddel: En ny modell for persepsjon av plantepatogeneffektorer. Plantecelle 2008, 20, 2009–2017. [CrossRef]
29. Jones, JDG; Vance, RE; Dangl, JL Intracellulære medfødte immunovervåkingsenheter i planter og dyr. Science 2016, 354. [CrossRef]
30. Bernoux, M.; Ve, T.; Williams, S.; Warren, C.; Hattemakere, D.; Valkov, E.; Zhang, X.; Ellis, JG; Kobe, B.; Dodds, PN Strukturell og funksjonell analyse av et planteresistensprotein TIR-domene avslører grensesnitt for selvassosiasjon, signalering og autoregulering. Cell Host Microbe 2011, 9, 200–211. [CrossRef]
31. Castel, B.; Ngou, P.-M.; Cevik, V.; Redkar, A.; Kim, D.-S.; Yang, Y.; Ding, P.; Jones, JDG Diverse NLR-immunreseptorer aktiverer forsvar via RPW8-NLR NRG1. Ny Phytol. 2019, 222, 966–980. [CrossRef]
32. Wu, Z.; Li, M.; Dong, OX; Xia, S.; Liang, W.; Bao, Y.; Wasteneys, G.; Li, X. Differensiell regulering av TNL-mediert immunsignalering av redundante hjelpe-CNL-er. Ny Phytol. 2019, 222, 938–953. [CrossRef] [PubMed]
33. Wagner, S.; Stuttmann, J.; Rietz, S.; Guerois, R.; Brunstein, E.; Bautor, J.; Niefind, K.; Parker, JE Strukturelt grunnlag for signalering av eksklusive EDS1 heteromere komplekser med SAG101 eller PAD4 i plante medfødt immunitet. Cell Host Microbe 2013, 14, 619–630. [CrossRef]
34. Lapin, D.; Kovacova, V.; Sun, X.; Dongus, JA; Bhandari, D.; von Born, P.; Bautor, J.; Guarneri, N.; Rzemieniewski, J.; Stuttmann, J.; et al. En samtidig utviklet EDS1-SAG101-NRG1-modul medierer celledødssignalering av TIR-domene immunreseptorer. Plantecelle 2019, 31, 2430–2455. [CrossRef]
35. Peng, Y.; van Wersch, R.; Zhang, Y. Konvergent og divergent signalering i PAMP-utløst immunitet og effektor-utløst immunitet. Mol. Plantemikrobe samspill. 2017, 31, 403–409. [CrossRef]
36. Luna, E.; Pastor, V.; Robert, J.; Flors, V.; Mauch-Mani, B.; Ton, J. Callose Deposition: A Multifaceted Plant Defence Response. Mol. Plantemikrobe samspill. 2010, 24, 183–193. [CrossRef]
37. Torres, MA ROS i biotiske interaksjoner. Physiol. Anlegg 2010, 138, 414–429. [CrossRef]
38. Torres, MA; Jones, JDG; Dangl, JL Reaktive oksygenarter som signaliserer som svar på patogener. Plant Physiol. 2006, 141, 373–378. [CrossRef] [PubMed]
39. Glazebrook, J. Kontrasterende mekanismer for forsvar mot biotrofiske og nekrotrofiske patogener. Annu. Rev. Phytopathol. 2005, 43, 205–227. [CrossRef]
40. Xu, X.; Liu, X.; Yan, Y.; Wang, W.; Gebretsadik, K.; Qi, X.; Xu, Q.; Chen, X. Sammenlignende proteomisk analyse av resistens mot agurk pulveraktig mugg mellom en enkelt-segment substitusjonslinje og dens tilbakevendende forelder. Hortic. Res. 2019, 6, 1–13. [CrossRef] [PubMed]
41. Tahir, J.; Rashid, M.; Afzal, AJ Post-translasjonelle modifikasjoner i effektorer og planteproteiner involvert i vert-patogen-konflikter. Plant Pathol. 2019, 68, 628–644. [CrossRef]
42. Withers, J.; Dong, X. Post-translasjonell regulering av planteimmunitet. Curr. Opin. Plant Biol. 2017, 38, 124–132. [CrossRef] [PubMed]
43. Bhattacharjee, S.; Noor, JJ; Gohain, B.; Gulabani, H.; Dnyaneshwar, IK; Singla, A. Post-translasjonelle modifikasjoner i reguleringen av patogenovervåking og signalering i planter: The inside- (og perturbations from) outside story. IUBMB Life 2015, 67, 524–532. [CrossRef]
44. Bigeard, J.; Hirt, H. Kjernefysisk signalering av anleggs MAPK-er. Front. Plant Sci. 2018, 9. [CrossRef]
45. Lin, W.; Li, B.; Lu, D.; Chen, S.; Zhu, N.; Han, P.; Shan, L. Tyrosin-fosforylering av proteinkinasekompleks BAK1/BIK1 medierer Arabidopsis medfødt immunitet. Proc. Natl. Acad. Sci. USA 2014, 111, 3632–3637. [CrossRef]
46. Wang, Y.; Li, Z.; Liu, D.; Xu, J.; Wei, X.; Yan, L.; Yang, C.; Lou, Z.; Shui, W. Vurdering av BAK1-aktivitet i forskjellige plantereseptorlignende kinasekomplekser ved kvantitativ profilering av fosforyleringsmønstre. J. Proteom. 2014, 108, 484–493. [CrossRef]
47. Laluk, K.; Luo, H.; Chai, M.; Dhawan, R.; Lai, Z.; Mengiste, T. Biokjemiske og genetiske krav til funksjon av immunresponsregulatoren BOTRYTIS-INDUSERT KIASE1 i plantevekst, etylensignalering og PAMP-utløst immunitet i Arabidopsis. Plantecelle 2011, 23, 2831–2849. [CrossRef] [PubMed]
48. Orosa, B.; Yates, G.; Verma, V.; Srivastava, AK; Srivastava, M.; Campanaro, A.; Vega, DD; Fernandes, A.; Zhang, C.; Lee, J.; et al. SUMO-konjugering til mønstergjenkjenningsreseptoren FLS2 utløser intracellulær signalering i plantens medfødte immunitet. Nat. Commun. 2018, 9, 5185. [CrossRef]
49. Kadota, Y.; Sklenar, J.; Derbyshire, P.; Stransfeld, L.; Asai, S.; Ntoukakis, V.; Jones, JD; Shirasu, K.; Menke, F.; Jones, A.; et al. Direkte regulering av NADPH-oksidase RBOHD av den PRR-assosierte kinase BIK1 under planteimmunitet. Mol. Cell 2014, 54, 43–55. [CrossRef] [PubMed]
50. Li, L.; Li, M.; Yu, L.; Zhou, Z.; Liang, X.; Liu, Z.; Cai, G.; Gao, L.; Zhang, X.; Wang, Y.; et al. Den FLS2-assosierte kinase BIK1 fosforylerer direkte NADPH-oksidase RbohD for å kontrollere planteimmunitet. Cell Host Microbe 2014, 15, 329–338. [CrossRef] [PubMed]
51. Kim, T.-W.; Wang, Z.-Y. Brassinosteroid signaltransduksjon fra reseptorkinaser til transkripsjonsfaktorer. Annu. Rev. Plant Biol. 2010, 61, 681–704. [CrossRef]
52. Yan, L.; Kan.; Liu, D.; Wei, X.; Sun, Y.; Chen, X.; Zhao, H.; Zhou, J.; Wang, Z.; Shui, W.; et al. Strukturelt grunnlag for virkningen av fosforylering på aktiveringen av plantereseptorlignende kinase BAK1. Cell Res. 2012, 22, 1304–1308. [CrossRef] [PubMed]
53. Wang, X.; Kota, U.; Han, K.; Blackburn, K.; Li, J.; Goshe, MB; Huber, SC; Clouse, SD Sekvensiell transfosforylering av BRI1/BAK1-reseptorkinasekomplekset påvirker tidlige hendelser i brassinosteroidsignalering. Dev. Cell 2008, 15, 220–235. [CrossRef]
54. Schwessinger, B.; Roux, M.; Kadota, Y.; Ntoukakis, V.; Sklenar, J.; Jones, A.; Zipfel, C. Fosforyleringsavhengig differensiell regulering av plantevekst, celledød og medfødt immunitet av den regulatoriske reseptorlignende kinase BAK1. PLoS Genet. 2011, 7, e1002046. [CrossRef] [PubMed]
55. Chinchilla, D.; Zipfel, C.; Robatzek, S.; Kemmerling, B.; Nürnberger, T.; Jones, JDG; Felix, G.; Boller, T. Et Flagellin-indusert kompleks av reseptoren FLS2 og BAK1 initierer planteforsvar. Nature 2007, 448, 497–500. [CrossRef]
56. Perraki, A.; DeFalco, TA; Derbyshire, P.; Avila, J.; Séré, D.; Sklenar, J.; Qi, X.; Stransfeld, L.; Schwessinger, B.; Kadota, Y.; et al. Den fosfidavhengige funksjonelle dikotomien til en vanlig ko-reseptor i plantesignalering. Natur 2018, 561, 248–252. [CrossRef]
57. Jagodzik, P.; Tajdel-Zielinska, M.; Ciesla, A.; Marczak, M.; Ludwikow, A. Mitogen-aktiverte proteinkinase-kaskader i plantehormonsignalering. Front. Plant Sci. 2018, 9. [CrossRef]
58. Bi, G.; Zhou, Z.; Wang, W.; Li, L.; Rao, S.; Wu, Y.; Zhang, X.; Menke, FLH; Chen, S.; Zhou, J.-M. Reseptorlignende cytoplasmatiske kinaser kobler direkte forskjellige mønstergjenkjenningsreseptorer til aktiveringen av mitogenaktiverte proteinkinasekaskader i Arabidopsis. Plantecelle 2018, 30, 1543–1561. [CrossRef] [PubMed]
59. Berriri, S.; Garcia, AV; dit Frey, NF; Rozhon, W.; Pateyron, S.; Leonhardt, N.; Montillet, J.-L.; Leung, J.; Hirt, H.; Colcombet, J. Konstitutivt aktiv mitogenaktivert proteinkinaseversjoner viser funksjoner til Arabidopsis MPK4 i patogenforsvarssignalering. Plantecelle 2012, 24, 4281–4293. [CrossRef]
60. Genot, B.; Lang, J.; Berriri, S.; Garmier, M.; Girard, F.; Pateyron, S.; Haustraete, K.; Van Der Straeten, D.; Hirt, H.; Colcombet, J. Konstitutivt aktiv Arabidopsis MAP Kinase 3 utløser forsvarsresponser som involverer salisylsyre og SUMM2-resistensprotein1. Plant Physiol. 2017, 174, 1238–1249. [CrossRef] [PubMed]
61. Kong, Q.; Qu, N.; Gao, M.; Zhang, Z.; Ding, X.; Yang, F.; Li, Y.; Dong, OX; Chen, S.; Li, X.; et al. MEKK1-MKK1/MKK2-MPK4-kinasekaskaden regulerer negativt immunitet mediert av en mitogenaktivert proteinkinasekinase-kinase i Arabidopsis. Plantecelle 2012, 24, 2225–2236. [CrossRef]
62. Petersen, M.; Brodersen, P.; Naested, H.; Andreasson, E.; Lindhart, U.; Johansen, B.; Nielsen, HB; Lacy, M.; Austin, MJ; Parker, JE; et al. Arabidopsis MAP kinase 4 regulerer systemisk ervervet resistens negativt. Cell 2000, 103, 1111–1120. [CrossRef]
63. Mao, G.; Meng, X.; Liu, Y.; Zheng, Z.; Chen, Z.; Zhang, S. Fosforylering av en WRKY-transkripsjonsfaktor av to patogenresponsive MAPK-er driver fytoalexinbiosyntesen i Arabidopsis. Plantecelle 2011, 23, 1639–1653. [CrossRef] [PubMed]
64. Zhou, N.; Tootle, TL; Glazebrook, J. Arabidopsis PAD3, et gen som kreves for camalexin biosyntese, koder for en antatt cytokrom P450 monooksygenase. Plantecelle 1999, 11, 2419–2428. [CrossRef]
65. Su, J.; Yang, L.; Zhu, Q.; Wu, H.; Hei.; Liu, Y.; Xu, J.; Jiang, D.; Zhang, S. Aktiv fotosyntetisk hemming mediert av MPK3/MPK6 er avgjørende for effektor-utløst immunitet. PLoS Biol. 2018, 16, e2004122. [CrossRef]
66. Zhang, Z.; Wu, Y.; Gao, M.; Zhang, J.; Kong, Q.; Liu, Y.; Ba, H.; Zhou, J.; Zhang, Y. Forstyrrelse av PAMP-indusert MAP-kinase-kaskade av en Pseudomonas syringae-effektor aktiverer planteimmunitet mediert av NB-LRR-proteinet SUMM2. Cell Host Microbe 2012, 11, 253–263. [CrossRef] [PubMed]
67. Zhang, Z.; Liu, Y.; Huang, H.; Gao, M.; Wu, D.; Kong, Q.; Zhang, Y. NLR-proteinet SUMM2 registrerer forstyrrelsen av en immunsignalerende MAP-kinasekaskade via CRCK3. EMBO Rep. 2017, 18, 292–302. [CrossRef]
68. Wang, W.; Feng, B.; Zhou, J.-M.; Tang, D. Planteimmunsignalering: Fremskritt på to grenser. J. Integr. Plant Biol. 2020, 62, 2–24. [CrossRef]
69. Segonzac, C.; Macho, AP; Sanmartín, M.; Ntoukakis, V.; Sánchez-Serrano, JJ; Zipfel, C. Negativ kontroll av BAK1 av proteinfosfatase 2A under plante medfødt immunitet. EMBO J. 2014, 33, 2069–2079. [CrossRef]
70. Couto, D.; Niebergall, R.; Liang, X.; Bücherl, CA; Sklenar, J.; Macho, AP; Ntoukakis, V.; Derbyshire, P.; Altenbach, D.; Maclean, D.; et al. Arabidopsis-proteinet fosfatase PP2C38 regulerer den sentrale immunkinasen BIK1 negativt. PLOS Pathog. 2016, 12, e1005811. [CrossRef]
71. Liu, J.; Liu, B.; Chen, S.; Gong, B.-Q.; Chen, L.; Zhou, Q.; Xiong, F.; Wang, M.; Feng, D.; Li, J.-F.; et al. En tyrosinfosforyleringssyklus regulerer soppaktivering av en plantereseptor Ser/Thr-kinase. Cell Host Microbe 2018, 23, 241–253.e6. [CrossRef] [PubMed]
72. Schweighofer, A.; Kazanaviciute, V.; Scheikl, E.; Teige, M.; Doczi, R.; Hirt, H.; Schwanninger, M.; Kant, M.; Schuurink, R.; Mauch, F.; et al. PP2C-type fosfatase AP2C1, som negativt regulerer MPK4 og MPK6, modulerer medfødt immunitet, jasmonsyre og etylennivåer i Arabidopsis. Plantecelle 2007, 19, 2213–2224. [CrossRef] [PubMed]
73. Shubchynskyy, V.; Boniecka, J.; Schweighofer, A.; Simulis, J.; Kvedaviciute, K.; Stumpe, M.; Mauch, F.; Balazadeh, S.; MuellerRoeber, B.; Boutrot, F.; et al. Proteinfosfatase AP2C1 regulerer negativt basal motstand og forsvarsresponser mot Pseudomonas syringae. J. Exp. Bot. 2017, 68, 1169–1183. [CrossRef] [PubMed]
74. Anderson, JC; Bartels, S.; Besteiro, MAG; Shahollari, B.; Ulm, R.; Peck, SC Arabidopsis MAP kinase fosfatase 1 (AtMKP1) regulerer negativt MPK6-mediert PAMP-respons og resistens mot bakterier. Plant J. 2011, 67, 258–268. [CrossRef] [PubMed]
75. Bartels, S.; Anderson, JC; González Besteiro, MA; Carreri, A.; Hirt, H.; Buchanan, A.; Métraux, J.-P.; Peck, SC; Ulm, R. MAP kinasefosfatase1 og proteintyrosinfosfatase1 er repressorer av salisylsyresyntese og SNC1-mediert respons i Arabidopsis. Plantecelle 2009, 21, 2884–2897. [CrossRef]
76. Park, HC; Sang, EH; Nguyen, XC; Lee, K.; Kim, KE; Kim, HS; Lee, SM; Kim, SH; Bae, DW; Yun, D.-J.; et al. Arabidopsis MAP kinase fosfatase 1 er fosforylert og aktivert av substratet AtMPK6. Plant Cell Rep. 2011, 30, 1523–1531. [CrossRef] [PubMed]
77. Callis, J. Ubiquitineringsmaskineriet til ubiquitinsystemet. Arabidopsis Book 2014, 12. [CrossRef] [PubMed]
78. Komander, D.; Voldtekt, M. Ubiquitin-koden. Annu. Rev. Biochem. 2012, 81, 203–229. [CrossRef]
79. Vierstra, RD Ubiquitin-26S-proteasomsystemet i forbindelse med plantebiologi. Nat. Rev. Mol. Celle. Biol. 2009, 10, 385–397. [CrossRef]
80. Zhou, B.; Zeng, L. Konvensjonell og ukonvensjonell ubiquitinering i planteimmunitet. Mol. Plant Pathol. 2017, 18, 1313–1330. [CrossRef] [PubMed]
81. Kachewar, NR; Gupta, V.; Ranjan, A.; Patel, HK; Sonti, RV Overekspresjon av OsPUB41, en ris E3 ubiquitin-ligase indusert av celleveggnedbrytende enzymer, forbedrer immunresponsen i ris og Arabidopsis. BMC Plant Biol. 2019, 19, 530. [CrossRef]
82. Becker, F.; Buschfeld, E.; Schell, J.; Bachmair, A. Endret respons på virusinfeksjon av tobakksplanter forstyrret i ubiquitinsystemet. Plant J. 1993, 3, 875–881. [CrossRef]
83. Goritschnig, S.; Zhang, Y.; Li, X. Ubiquitin-veien er nødvendig for medfødt immunitet i Arabidopsis. Plant J. 2007, 49, 540–551. [CrossRef] [PubMed]
84. Saeki, Y. Ubiquitin-gjenkjenning av proteasomet. J. Biochem. 2017, 161, 113–124. [CrossRef]
85. Duplan, V.; Rivas, S. E3 Ubiquitin-ligaser og deres målproteiner under reguleringen av plantens medfødte immunitet. Front. Plant Sci. 2014, 5. [CrossRef]
86. Lu, D.; Lin, W.; Gao, X.; Wu, S.; Cheng, C.; Avila, J.; Heese, A.; Devarenne, TP; Han, P.; Shan, L. Direkte ubiquitinering av mønstergjenkjenningsreseptor FLS2 svekker plantens medfødte immunitet. Science 2011, 332, 1439–1442. [CrossRef] [PubMed]
87. Zhou, J.; Lu, D.; Xu, G.; Finlayson, SA; Han, P.; Shan, L. Det dominerende negative ARM-domenet avdekker flere funksjoner til PUB13 i Arabidopsis-immunitet, blomstring og senescens. J. Exp. Bot. 2015, 66, 3353–3366. [CrossRef] [PubMed]
88. Liao, D.; Cao, Y.; Sun, X.; Espinoza, C.; Nguyen, CT; Liang, Y.; Stacey, G. Arabidopsis E3 ubiquitin ligase plante U-BOX13 (PUB13) regulerer kitin reseptor lysin motiv reseptor kinase5 (LYK5) protein overflod. Ny Phytol. 2017, 214, 1646–1656. [CrossRef] [PubMed]
89. Wang, J.; Grubb, LE; Wang, J.; Liang, X.; Li, L.; Gao, C.; Ma, M.; Feng, F.; Li, M.; Li, L.; et al. En regulatorisk modul som kontrollerer homeostase av en planteimmunkinase. Mol. Cell 2018, 69, 493–504.e6. [CrossRef]
90. Desaki, Y.; Takahashi, S.; Sato, K.; Maeda, K.; Matsui, S.; Yoshimi, I.; Miura, T.; Jumonji, J.-I.; Takeda, J.; Yashima, K.; et al. PUB4, en CERK1-interagerende ubiquitinligase, regulerer positivt MAMP-utløst immunitet i Arabidopsis. Plant Cell Physiol. 2019, 60, 2573–2583. [CrossRef]
91. Thines, B.; Katsir, L.; Melotto, M.; Niu, Y.; Mandaokar, A.; Liu, G.; Nomura, K.; Han, SY; Howe, GA; Bla gjennom, J. JAZ-repressorproteiner er mål for SCF COI1-komplekset under jasmonatsignalering. Nature 2007, 448, 661–665. [CrossRef]
92. Xie, D.-X.; Feys, BF; James, S.; Nieto-Rostro, M.; Turner, JG COI1: Et Arabidopsis-gen som kreves for jasmonatregulert forsvar og fruktbarhet. Vitenskap 1998, 280, 1091–1094. [CrossRef]
93. Xu, L.; Liu, F.; Lechner, E.; Genschik, P.; Crosby, WL; Ma, H.; Peng, W.; Huang, D.; Xie, D. SCFCOI1 ubiquitin-ligase-kompleksene er nødvendige for jasmonatrespons i Arabidopsis. Plantecelle 2002, 14, 1919–1935. [CrossRef]
94. Huang, S.; Chen, X.; Zhong, X.; Li, M.; Ao, K.; Huang, J.; Li, X. Plante TRAF-proteiner regulerer NLR-immunreseptoromsetning. Cell Host Microbe 2016, 19, 204–215. [CrossRef] [PubMed]
95. Mazzucotelli, E.; Belloni, S.; Marone, D.; De Leonardis, A.; Guerra, D.; Di Fonzo, N.; Cattivelli, L.; Mastrangelo, A. E3 ubiquitin-ligase-genfamilien i planter: regulering ved nedbrytning. Curr. Genom. 2006, 7, 509–522. [CrossRef] [PubMed]
96. Vierstra, RD Det ekspanderende universet av ubiquitin og ubiquitin-lignende modifikatorer. Plant Physiol. 2012, 160, 2–14. [CrossRef]
97. Wu, Z.; Tong, M.; Tian, L.; Zhu, C.; Liu, X.; Zhang, Y.; Li, X. Plante E3-ligaser SNIPER1 og SNIPER2 regulerer i stor grad homeostasen til sensor NLR-immunreseptorer. EMBO J. 2020, e104915. [CrossRef]
98. Nijman, SMB; Luna-Vargas, MPA; Velds, A.; Brummelkamp, TR; Dirac, AMG; Sixma, TK; Bernards, R. En genomisk og funksjonell oversikt over deubiquitinerende enzymer. Cell 2005, 123, 773–786. [CrossRef]
99. Ewan, R.; Pangestuti, R.; Thornber, S.; Craig, A.; Carr, C.; O'Donnell, L.; Zhang, C.; Sadanandom, A. Deubiquitinerende enzymer AtUBP12 og AtUBP13 og deres tobakkshomolog NtUBP12 er negative regulatorer av planteimmunitet. Ny Phytol. 2011, 191, 92–106. [CrossRef]
100. Jeong, JS; Jung, C.; Seo, JS; Kim, J.-K.; Chua, N.-H. Deubiquitinerende enzymene UBP12 og UBP13 regulerer MYC2-nivåer positivt i jasmonatresponser. Plantecelle 2017, 29, 1406–1424. [CrossRef]
101. Bailey, M.; Srivastava, A.; Conti, L.; Nelis, S.; Zhang, C.; Florance, H.; Kjærlighet, A.; Milner, J.; Napier, R.; Grant, M.; et al. Stabiliteten til små ubiquitin-lignende modifiseringsproteaser (SUMO) er altfor tolerante for salt1 og -2 modulerer salisylsyresignalering og SUMO1/2-konjugering i Arabidopsis thaliana. J. Exp. Bot. 2016, 67, 353–363. [CrossRef] [PubMed]
102. Colignon, B.; Delaive, E.; Dieu, M.; Demazy, C.; Muhovski, Y.; Wallon, C.; Raes, M.; Mauro, S. Proteomics-analyse av det endogene, konstitutive bladet SUMOylome. J. Proteom. 2017, 150, 268–280. [CrossRef]
103. Ingole, KD; Dahale, SK; Bhattacharjee, S. Proteomisk analyse av SUMO1-SUMOylome-endringer under forsvarsfremkalling i Arabidopsis. J. Proteom. 2021, 232, 104054. [CrossRef]
104. Miller, MJ; Barrett-Wilt, GA; Hua, Z.; Vierstra, RD Proteomiske analyser identifiserer et mangfoldig utvalg av kjernefysiske prosesser påvirket av liten ubiquitin-lignende modifiseringskonjugering i Arabidopsis. Proc. Natl. Acad. Sci. USA 2010, 107, 16512–16517. [CrossRef] [PubMed]
105. Kim, SH; Gao, F.; Bhattacharjee, S.; Adiasor, JA; Nam, JC; Gassmann, W. Arabidopsis Resistance-Like Gene SNC1 aktiveres av mutasjoner i SRFR1 og bidrar til resistens mot bakterieeffektoren AvrRps4. PLoS Pathog. 2010, 6, e1001172. [CrossRef]
106. Bhattacharjee, S.; Halane, MK; Kim, SH; Gassmann, W. Patogeneffektorer retter seg mot Arabidopsis EDS1 og endrer dets interaksjoner med immunregulatorer. Science 2011, 334, 1405–1408. [CrossRef] [PubMed]
107. Hammoudi, V.; Vlachakis, G.; Schranz, ME; van den Burg, HA Helgenomduplikasjoner etterfulgt av tandemduplikasjoner driver diversifisering av proteinmodifikatoren SUMO i angiospermer. Ny Phytol. 2016, 211, 172–185. [CrossRef] [PubMed]
108. Kurepa, J.; Walker, JM; Smalle, J.; Gosink, MM; Davis, SJ; Durham, TL; Sung, D.-Y.; Vierstra, RD Det lille ubiquitin-like modifier (SUMO) proteinmodifikasjonssystemet i Arabidopsis-akkumulering av sumo1- og -2-konjugater økes av stress. J. Biol. Chem. 2003, 278, 6862–6872. [CrossRef]
109. Van den Berg, HA; Kini, RK; Schuurink, RC; Takken, FLW Arabidopsis små ubiquitin-lignende modifiseringsparaloger har distinkte funksjoner i utvikling og forsvar. Plantecelle 2010, 22, 1998–2016. [CrossRef]
110. Merrill, JC; Melhuish, TA; Kagey, MH; Yang, S.-H.; Sharrocks, AD; Wotton, D. En rolle for ikke-kovalente SUMO-interaksjonsmotiver i Pc2/CBX4 E3-aktivitet. PLoS ONE 2010, 5, e8794. [CrossRef] [PubMed]
111. Villajuana-Bonequi, M.; Elrouby, N.; Nordström, K.; Griebel, T.; Bachmair, A.; Coupland, G. Forhøyede salisylsyrenivåer forårsaket av økt ekspresjon av isochorismatsyntase 1 Bidrar til hyperakkumulering av SUMO1-konjugater i Arabidopsis-mutanten tidlig på korte dager 4. Plant J. 2014, 79, 206–219. [CrossRef] 112. Lee, J.; Nam, J.; Park, HC; Na, G.; Miura, K.; Jin, JB; Yoo, CY; Baek, D.; Kim, DH; Jeong, JC; et al. Salisylsyremediert medfødt immunitet i Arabidopsis er regulert av SIZ1 SUMO E3 ligase. Plant J. 2007, 49, 79–90. [CrossRef] [PubMed]
113. Gou, M.; Huang, Q.; Qian, W.; Zhang, Z.; Jia, Z.; Hua, J. Sumoylation E3 Ligase SIZ1 modulerer planteimmunitet delvis gjennom immunreseptorgenet SNC1 i Arabidopsis. Mol. Plantemikrobe samspill. 2017, 30, 334–342. [CrossRef]
114. Hammoudi, V.; Fokkens, L.; Beerens, B.; Vlachakis, G.; Chatterjee, S.; Arroyo-Mateos, M.; Wackers, PFK; Jonker, MJ; van den Burg, HA Arabidopsis SUMO E3 Ligase SIZ1 medierer den temperaturavhengige avveiningen mellom planteimmunitet og vekst. PLoS Genet. 2018, 14, e1007157. [CrossRef] [PubMed]
115. Niu, D.; Lin, X.-L.; Kong, X.; Qu, G.-P.; Cai, B.; Lee, J.; Jin, JB SIZ1-Mediert SUMOylering av TPR1 undertrykker planteimmunitet i Arabidopsis. Mol. Anlegg 2019, 12, 215–228. [CrossRef] [PubMed]
116. Gou, M.; Shi, Z.; Zhu, Y.; Bao, Z.; Wang, G.; Hua, J. F-Box-proteinet CPR1/CPR30 regulerer negativt R-protein SNC1-akkumulering. Plant J. 2012, 69, 411–420. [CrossRef]
117. Zhang, Y.; Zeng, L. Krysstale mellom ubiquitinering og andre post-translasjonelle proteinmodifikasjoner i planteimmunitet. Plantekommun. 2020, 100041. [CrossRef] [PubMed]
118. Srivastava, AK; Orosa, B.; Singh, P.; Cummins, I.; Walsh, C.; Zhang, C.; Grant, M.; Roberts, MR; Anand, GS; Fitches, E.; et al. SUMO Undertrykker aktiviteten til jasmonsyrereseptoren koronatin-ufølsom1. Plantecelle 2018, 30, 2099–2115. [CrossRef]
119. Cao, Y.; Aceti, DJ; Sabat, G.; Song, J.; Makino, S.-I.; Fox, BG; Bent, AF-mutasjoner i FLS2 Ser-938 dissekerer signalaktivering i FLS2-mediert Arabidopsis-immunitet. PLoS Pathog. 2013, 9, e1003313. [CrossRef]
120. Chinchilla, D.; Bauer, Z.; Regenass, M.; Boller, T.; Felix, G. Arabidopsis-reseptorkinase FLS2 binder Flg22 og bestemmer spesifisiteten til flagellinoppfatning. Plantecelle 2006, 18, 465–476. [CrossRef]
121. Lu, D.; Wu, S.; Gao, X.; Zhang, Y.; Shan, L.; Han, P. En reseptorlignende cytoplasmatisk kinase, BIK1, assosieres med et flagellinreseptorkompleks for å initiere medfødt planteimmunitet. Proc. Natl. Acad. Sci. USA 2010, 107, 496–501. [CrossRef]
122. Sun, Y.; Li, L.; Macho, AP; Han, Z.; Hu, Z.; Zipfel, C.; Zhou, J.-M.; Chai, J. Strukturelt grunnlag for Flg22-indusert aktivering av Arabidopsis FLS2-BAK1-immunkomplekset. Science 2013, 342, 624–628. [CrossRef] [PubMed]
123. Ma, X.; Claus, LAN; Leslie, ME; Tao, K.; Wu, Z.; Liu, J.; Yu, X.; Li, B.; Zhou, J.; Savin, DV; et al. Ligand-indusert monoubiquitinering av BIK1 regulerer planteimmunitet. Natur 2020, 581, 199–203. [CrossRef]
124. Monaghan, J.; Matschi, S.; Romeis, T.; Zipfel, C. Den kalsiumavhengige proteinkinasen CPK28 regulerer negativt den BIK1-mediert PAMP-indusert kalsiumutbrudd. Anleggssignal. Oppførsel. 2015, 10. [CrossRef]
125. Yin, J.; Yi, H.; Chen, X.; Wang, J. Post-translasjonelle modifikasjoner av proteiner har allsidige roller i å regulere planters immunrespons. Int. J. Mol. Sci. 2019, 20, 2807. [CrossRef]
126. Withers, J.; Dong, X. Posttranslasjonelle modifikasjoner av NPR1: Et enkelt protein som spiller flere roller i planteimmunitet og fysiologi. PLoS Pathog. 2016, 12, e1005707. [CrossRef]
127. Després, C.; DeLong, C.; Glaze, S.; Liu, E.; Fobert, PR Arabidopsis NPR1/NIM1-proteinet øker DNA-bindingsaktiviteten til en undergruppe av TGA-familien av BZIP-transkripsjonsfaktorer. Plantecelle 2000, 12, 279–290. [CrossRef]
128. Saleh, A.; Withers, J.; Mohan, R.; Marqués, J.; Fyr.; Yan, S.; Zavaliev, R.; Nomoto, M.; Tada, Y.; Dong, X. Posttranslasjonelle modifikasjoner av hovedtranskripsjonsregulatoren NPR1 muliggjør dynamisk, men tett kontroll av planteimmunresponser. Cell Host Microbe 2015, 18, 169–182. [CrossRef]
129. Spoel, SH; Mou, Z.; Tada, Y.; Spivey, NW; Genschik, P.; Dong, X. Proteasommediert omsetning av transkripsjonskoaktivatoren NPR1 spiller to roller i å regulere planteimmunitet. Cell 2009, 137, 860–872. [CrossRef]
130. Fu, ZQ; Yan, S.; Saleh, A.; Wang, W.; Ruble, J.; Oka, N.; Mohan, R.; Spoel, SH; Tada, Y.; Zheng, N.; et al. NPR3 og NPR4 er reseptorer for immunsignalet salisylsyre i planter. Nature 2012, 486, 228–232. [CrossRef] [PubMed]
131. Van Loon, LC; Rep, M.; Pieterse, CMJ Betydningen av induserbare forsvarsrelaterte proteiner i infiserte planter. Annu. Rev. Phytopathol. 2006, 44, 135–162. [CrossRef]
132. He, Z.; Huang, T.; Ao, K.; Yan, X.; Huang, Y. Sumoylering, fosforylering og acetylering finjusterer omsetningen av planteimmunitetskomponenter mediert av ubiquitinering. Front. Plant Sci. 2017, 8. [CrossRef] [PubMed]
133. Backer, R.; Naidoo, S.; van den Berg, N. The no express or of pathogenese-relaterte gener 1 (NPR1) and related family: Mechanistic insights in plantesykdomsresistens. Front. Plant Sci. 2019, 10. [CrossRef] [PubMed]
134. Lim, G.-H.; Hoey, T.; Zhu, S.; Clavel, M.; Yu, K.; Navarre, D.; Kachroo, A.; Deragon, J.-M.; Kachroo, P. COP1, en negativ regulator av fotomorfogenese, regulerer positivt plantesykdomsresistens via dobbelttrådede RNA-bindende proteiner. PLoS Pathog. 2018, 14, e1006894. [CrossRef]
135. Lin, X.-L.; Niu, D.; Hu, Z.-L.; Kim, DH; Jin, YH; Cai, B.; Liu, P.; Miura, K.; Yun, D.-J.; Kim, W.-Y.; et al. En Arabidopsis SUMO E3-ligase, SIZ1, regulerer fotomorfogenesen negativt ved å fremme COP1-aktivitet. PLoS Genet. 2016, 12, e1006016. [CrossRef]
136. Kim, JY; Jang, I.-C.; Seo, HS COP1 kontrollerer abiotiske stressresponser ved å modulere AtSIZ1-funksjonen gjennom sin E3 ubiquitin-ligaseaktivitet. Front. Plant Sci. 2016, 7. [CrossRef]
For more information:1950477648nn@gmail.com


