Zika-virus ikke-strukturelt protein 4B interagerer med DHCR7 for å lette viral infeksjon
Dec 21, 2023
ABSTRAKT
Zika-virus (ZIKV) utvikler ikke-strukturelle proteiner for å unngå immunrespons og sikre effektiv replikasjon i vertscellene. Kolesterolmetabolsk enzym 7-dehydrokolesterolreduktase (DHCR7) ble nylig rapportert å påvirke medfødt immunrespons ved ZIKV-infeksjon. Imidlertid er det vitale ikke-strukturelle proteinet og mekanismene involvert i DHCR7-mediert viral unnvikelse ikke godt belyst. I denne studien demonstrerte vi at ZIKV-infeksjon lettet DHCR7-ekspresjon. Spesielt lettet den oppregulerte DHCR7 i sin tur ZIKV-infeksjon, og blokkerte DHCR7-undertrykte ZIKV-infeksjon. Mekanisk interagerte ZIKV ikke-strukturelt protein 4B (NS4B) med DHCR7 for å indusere DHCR7-ekspresjon. Dessuten hemmet DHCR7 TANK-bindende kinase 1 (TBK1) og interferon regulatorisk faktor 3 (IRF3) fosforylering, noe som resulterte i reduksjon av interferon-beta (IFN-) og interferon-stimulerte gener (ISGs) produksjoner. Derfor foreslår vi at ZIKV NS4B binder seg til DHCR7 for å undertrykke TBK1- og IRF3-aktivering, som igjen hemmer IFN- og ISG-er, og dermed letter ZIKV-unnvikelse. Denne studien utvider innsikten i hvordan virale ikke-strukturelle proteiner antagoniserer medfødt immunitet for å lette virusinfeksjon via kolesterolmetabolske enzymer og mellomprodukter.

cistanche tubulosa-forbedre immunsystemet
1. Introduksjon
Som et myggbåret flavivirus ble Zika-virus (ZIKV) opprinnelig identifisert fra rhesus-makak i Uganda i 1947. ZIKV-epidemien har gjennomgått flere utbrudd over hele verden, og har blitt en kumulativ global helsetrussel på grunn av den eksplosive ekspansjonen gjennom myggruter, verdensomspennende reiser med asymptomatiske transportører og seksuell overføring. De fleste ZIKV-infeksjoner i tidligere epidemier var asymptomatiske eller milde (Wang et al., 2016), men i de siste epidemiene har ZIKV-infeksjon ført til ødeleggende sykdommer, inkludert nevrologiske følgetilstander under graviditet (mikrocefali og fosterdød) og nevrologisk lidelse (Guillain-Barre syndrom) hos voksne (Cao-Lormeau et al., 2016; Pierson og Diamond, 2020; Rasmussen et al., 2016). Det medfødte immunsystemet er den første og kritiske linjen i vertens immunforsvar mot virusinfeksjon. Etter ZIKV-infeksjon ble viralt RNA gjenkjent av intracellulært retinsyre-induserbart gen I (RIG-I) (Chazal et al., 2018; Hertzog et al., 2018; Kato et al., 2006), som initierte det nedstrøms medfødte immunforsvaret responser, inkludert TANK-bindende kinase 1 (TBK1) aktivering, interferon regulatorisk faktor 3 (IRF3) fosforylering og deretter fører til type I interferon (IFN-I) produksjon (Fitzgerald et al., 2003; Grant et al., 2016; Xia et al., 2018) og uttrykket av dusinvis av interferon-stimulerte gener (ISG) med ulike antivirale effekter (Savidis et al., 2016; Schneider et al., 2014). Vertsimmunsystemet produserer IFN-er og ISG-er for å begrense virusinfeksjon, men ZIKV utviklet selv en rekke fluktmekanismer for å sikre vellykket overlevelse og replikasjon i vertscellen, for eksempel koding av spesifikke ikke-strukturelle (NS) proteiner. ZIKV genomisk RNA genererer syv ikke-strukturelle proteiner, inkludert NS1, NS2A, NS2B, NS3, NS4A, NS4B og NS5 (Berhoux, 2020). ZIKV NS1 rekrutterer vertsdeubiquitinase USP8 for å stabilisere caspase-1 og demper type I IFN-signalering til fordel for ZIKV-infeksjon (Zheng et al., 2018). En mutant NS1 er rapportert å binde seg til TBK1 og redusere fosforyleringen av TBK1, noe som fører til redusert IFN-produksjon (Xia et al., 2018). ZIKV NS3 binder seg til og sekvestrerer humane stillasproteiner (14-3-3ε og 14-3-3η) (Riedl et al., 2019), mens NS4A interagerer med MAVS for å svekke RIG-I- og MDA{{50} }mediert medfødt immunrespons (Ma et al., 2018). Spesielt binder og degraderer ZIKV NS5 signaltransduser og aktivator av transkripsjon 2 (STAT2) for å dempe type I IFN-signalering (Grant et al., 2016; Kumar et al., 2016). Dessuten ble NS5 også bevist å samhandle med RIG-I og undertrykke den K63--koblede polyubiquitineringen av RIG-I, og derved undertrykke IFN-produksjon (Li et al., 2020). I tillegg har ZIKV NS2A, NS2B, NS4A og NS4B også blitt vist å overvinne IFN-produksjon ved å målrette mot diskrete elementer i RIG-I-banen (Xia et al., 2018). For å oppnå effektiv replikasjon i pattedyrceller, er ZIKV også avhengig av vertscellulære lipidmetabolske komponenter for å danne en konvolutt og komplett viral partikkelsammenstilling (Chen et al., 2020; Leier et al., 2020). Kolesterol er en av lipidkomponentene i cellemembraner og deltar i flere biologiske funksjoner (Ikonen, 2008). Cellulær kolesterolhomeostase er tett modulert av kolesterolsyntese, inkludert absorpsjon fra lipoproteinpartikler og frigjøring til ekstracellulære akseptorer. Så godt som alle pattedyrceller er avhengig av kolesterolmetabolisme (Luo et al., 2020). Akkumulerende bevis har indikert at kolesterolmetabolisme deltar i medfødt immunrespons mot virusinfeksjon (Blanc et al., 2013; Petersen et al., 2014; York et al., 2015). Ved virusinfeksjon ble kolesterolsyntesen markant endret og ledsaget av det forbedrede uttrykket av IFN-I og ISG i makrofager (Li et al., 2017; Liu et al., 2008; York et al., 2015). Som nøkkelenzymet i kolesterolmetabolismen, omdanner kolesterol-25-hydroksylase (CH25H) kolesterol til 25-hydroksykolesterol (25HC), som har blitt identifisert som det biologiske produktet som bidrar til en medfødt immunrespons mot et stort flertall av virus, inkludert humant immunsviktvirus 1 (HIV-1), vesikulært stomatittvirus (VSV), herpes simplex-virus 1 (HSV-1), ebolavirus (EBOV), ZIKV, murint gammaherpesvirus ( MHV68), riftdalfebervirus (RVFV) og russisk vår-sommer encefalittvirus (RSSEV) (Blanc et al., 2013; Li et al., 2017; Liu et al., 2013). Nåværende studier er begrenset når det gjelder å undersøke hvordan kolesterolmetabolske produkter (f.eks. 25HC) kan manipulere signaloverføring og delta i medfødt immunitet. Til dags dato er enzymene eller mellomproduktene oppstrøms for kolesterolbiosyntesen fortsatt ikke godt belyst. Som det vitale kolesterolmetabolske enzymet, kan 7-dehydrokolesterolreduktase (DHCR7) slette C (7–8) dobbeltbindingen i B-ringen av steroler og katalysere kolesterolet fra 7-dehydrokolesterol ({{100} }DHC) (Luu et al., 2015). 7-DHC er også en forløper for vitamin D, og DHCR7-mutasjoner er knyttet til høyere vitamin D, noe som tyder på at DHCR7 viser kompliserte biologiske effekter i omdannelsen av kolesterol og vitamin D (Kuan et al., 2013; Prabhu et al. , 2016a). En godt presentert studie har vist at DHCR7-stillhet kan aktivere PI3K-AKT3-banen, noe som fører til IRF3 Ser385-fosforylering og fremme IFN-produksjon for å hemme multippel virusinfeksjon in vitro og in vivo (Xiao et al., 2020). Forståelsen av DHCR7-mediert kolesterolmetabolisme i ZIKV NS-proteinmediert immununnvikelse er imidlertid dårlig definert. Her belyser vi en distinkt mekanisme som ZIKV NS4B retter seg mot DHCR7, et nøkkelenzym i kolesterolsyntese, for å dempe IFN-I-responsen og lette ZIKV-infeksjon. Vi fant at ZIKV-infeksjon økte DHCR7-ekspresjonen. Interessant nok fremmer forbedret DHCR7 ZIKV-infeksjon, mens å slå ned eller målrette mot DHCR7 med inhibitorer kan undertrykke ZIKV-infeksjon. Dessuten kunne ZIKV NS4B binde DHCR7 og dermed indusere DHCR7-ekspresjon, noe som hemmet TBK1- og IRF3-aktivering og førte til redusert IFN- og ISG-produksjon. Derfor foreslår vi at ZIKV NS4B-binding til DHCR7 reduserer IRF3-aktivering, som igjen hemmer IFN- og ISG-er for å lette ZIKV-unnvikelse. Denne studien utvider ny innsikt om hvordan ZIKV ikke-strukturelt protein opphever medfødt immunitet for å lette virusinfeksjon gjennom interaksjon med kolesterolmetabolske enzymer.
cistanche tubulosa-forbedre immunsystemet
Klikk her for å se Cistanche Enhance Immunity-produkter
【Be om mer】 E-post:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
2. Materialer og metoder
2.1. Cellelinjer
U251-celler ble kjøpt fra China Center for Type Culture Collection (CCTCC) (Wuhan, Kina). Cercopithecus aethiops nyreceller (Vero), humane embryonale nyreceller (HEK 293T) og humane lungeadenokarsinomceller (A549) ble kjøpt fra American Tissue Culture Collection (ATCC). Celler ble opprettholdt i Dulbecco's Modified Eagle Medium (DMEM) (Gibco) supplert med 10 % føtalt bovint serum (FBS) (Gibco), penicillin (100 U/mL) og streptomycinsulfat (100 ug/ml) ved 37 C og 5 % CO2. Aedes albopictus (C6/36)-celler ble dyrket i Minimum Essential Medium (MEM) supplert med 10 % FBS, penicillin (100 U/mL) og streptomycinsulfat (100 ug/mL) ved 28 C med 5 % CO2.
2.2. ZIKV-amplifikasjon, titrering og infeksjon
ZIKV-isolatet z16006 (GenBank-aksessnummer, KU955589.1) ble dyrket i C6/36-celler, og ZIKV ble alikvotert i fryseglass og lagret ved 80 C. ZIKV-titre ble målt ved plakkanalyse. Cellene ble infisert med ZIKV ved den angitte infeksjonsmultiplisiteten (MOI) i 2 timer, etterfulgt av vasking med fosfatbuffer saltvann (PBS), og deretter dyrket, høstet og undersøkt.
2.3. Plasmider og reagenser
Ekspresjonsplasmid pcDNA3.1(þ)-3 Flagg ble brukt til å klone individuelle ZIKV-gener fra tilsvarende fragmenter av ZIKV-cDNA. For å konstruere pGEX6p-1-NS4B, ble ZIKV NS4B subklonet inn i pGEX6p-1 vektor ved bruk av ClonExpress II One Step Cloning Kit (Vazyme Biotech, Nanjing, Kina). cDNA-ene som koder for human DHCR7, RIG-I, TBK1 og IRF3 klonet inn i pCAGGS-HA vektor eller pcDNA3.1 (þ)-3 flaggvektor ble konstruert ved standard molekylær kloningsmetode. Missense-mutasjonen G410S av DHCR7 ble konstruert ved bruk av stedsrettet mutagenesemetode. Monoklonal kanin anti-ZIKV-konvolutt (GTX133314) ble kjøpt fra GeneTex (Irvine, CA, USA). Kanin polyklonal anti-DHCR7 (A8049), kanin monoklonal anti-ISG15 (A2416), kanin monoklonal anti-TBK1 (A3458), kanin monoklonal anti-P-TBK1 ved Ser172 (AP1026), kanin polyklonal anti-11F3A anti-1 -kanin IgG (ac005) og anti-muse IgG (ac011) ble kjøpt fra ABclonal Technology (Wuhan, Kina). Antimus FITC og anti-kanin Cy3 sekundære antistoffer ble kjøpt fra Abbkine (Wuhan, Kina). Kanin monoklonal anti-P-IRF3 ved Ser396 (29047S) og kanin monoklonal anti-ISG56 (14769S) ble kjøpt fra Cell Signaling Technology (CST, Boston, MA, USA). Mus monoklonal anti-Flag (F3165), kanin monoklonal anti-HA (H6908) og mus monoklonal anti-GAPDH (G9295) ble kjøpt fra Sigma (St Louis, MO, USA). Muse monoklonalt antiFlavivirus gruppe antigen-antistoff (MAB10216) ble kjøpt fra Millipore (Mass, USA). Lipofectamine 2000 (11668-027) og Trizol (15596018) ble kjøpt fra Invitrogen Corporation (Carlsbad, CA, USA). Poly(I:C) ble kjøpt fra InvivoGen (San Diego, CA, USA).
2.4. Plakkanalyse
ZIKV-inneholdende supernatant ble fortynnet med serumfritt DMEM og infiserte Vero-celler i en 12-brønnplate i 2 timer, etterfulgt av vask med 1 mL PBS to ganger. DMEM inneholdende 2% FBS og 2% lavsmeltende agarose ble blandet godt i henhold til et 1:1 volumforhold, og 1 ml blanding ble tilsatt til hver brønn. De infiserte cellene ble dyrket ved 37 C med 5 % CO2 i 5–7 dager. Cellene ble fiksert med 4 % paraformaldehyd i 1 time og farget med 0,5 % krystallfiolett i 30 minutter. 12-brønnplaten ble vasket med vann, og plakk ble beregnet.
2.5. Lentivirusproduksjon og infeksjon
Målrettingssekvensene til shRNA-er for human DHCR7 var som følger: sh-DHCR7-1: 50 -ATTGCCAGCACAGACGGATTT-30, sh-DHCR7-2: 50 -CGTGATTGACTTCTTCTGGAA{ {8}}. pLKO.1-vektoren som bærer et kryptert shRNA for en negativ kontroll (Sigma-Aldrich, St. Louis, MO, USA) eller den spesifikke målsekvensen ble transfektert inn i HEK293T-celler sammen med psPAX2 og pMD2.G med Lipofectamine 2{{19} }00. Virale partikler inneholdende supernatanter ble høstet 36 timer etter transfeksjon og deretter sentrifugert ved 210 g i 10 minutter. Den cellefrie supernatantfasen ble filtrert gjennom et 0,45 μm filter for å fjerne celleavfall. U251-celler ble infisert med lentivirale partikler i nærvær av 8 ug/ml polybren. Etter 48 timers kultur ble U251-celler valgt med puromycin (2 ug/ml, Sigma). Nedslåingseffektiviteten til sh-DHCR7 ble bestemt ved RT-PCR og Western blot-analyse.

cistanche tubulosa-forbedre immunsystemet
2.6. Western blot
Celler ble lysert med RIPA-buffer supplert med proteasehemmere og fosfatasehemmere på is i 1 time, deretter sentrifugert ved 4 C, 13, 000 g i 1{{10}} min for å samle cellen lysat. Proteinkonsentrasjon i cellelysat ble målt ved bicinchoninsyre (BCA) proteinanalyse. Proteinet ble separert ved SDS-PAGE og deretter overført til en polyvinyldifluorid (PVDF) membran. PVDF-membranen ble blokkert med immunoblotting-blokkerende buffer TBST (10 mmol/L Tris-HCl, pH 7,4, 0,15 mol/L NaCl og 0,05 % Tween-20) inneholdende 5 % BSA i 1 time. Etter vasking med TBST ble membranen inkubert med primære antistoffer og andre antistoffer og deretter påvist ved bruk av et Chemiluminescence-bildesystem (Bio-Rad).
2.7. Total kolesterolanalyse
Totalkolesterolet i cellene ble påvist ved å bruke et Tissue totalkolesterolanalysesett fra Applygen Technologies Inc. (Beijing, Kina). 5 mmol/L kolesterolstandarden ble utsatt for en seriefortynning med vannfri etanol for å tegne standardkurven, og mengdene av cellulært totalkolesterol ble beregnet i henhold til standardkurvene. Eksperimentet ble utført etter prosedyren gitt av produsenten.
2.8. Samimmunutfellingsanalyser
HEK293T-celler ble transfektert med de angitte plasmidene. Celler ble høstet og lysert med RIPA-lysebuffer supplert med proteasehemmere. Etter sentrifugering ved 18, 000 g i 15 minutter ved 4 C, ble cellelysater samlet og immunutfelt med Flag-Trap ProteinG Sepharose (GE Healthcare, Milwaukee, WI, USA) i 4 timer ved 4 C. De bundne proteinene ble eluert med 2 ladebuffer og analysert ved immunoblotting.
2.9. Sanntids PCR
Totale RNA-er ble ekstrahert fra celler ved å bruke TRIzol-reagens (Invitrogen Life Technologies), og cDNA ble produsert med et M-MLV revers transkriptasesett (Promega, Madison, WI, USA). RT-PCR ble utført ved bruk av SYBR RT-PCR-sett (DBI Bio-science) på Roche LC480. Glyceraldehyd-3-fosfatdehydrogenase (GAPDH) mRNA ble satt som den endogene referansen for å normalisere mRNAene og genekspresjonsnivåene ble beregnet ved bruk av 2 ΔΔCT-metoden. Sekvensene til RT-PCR-primere er vist i tilleggstabell S1. 2.10. Konfokal mikroskopi
U251-celler ble transfektert med plasmid og dyrket i 3 0 timer, deretter vasket tre ganger med PBS. Celler ble fiksert med 4 % paraformaldehyd i 15 minutter og permeert med PBS inneholdende 0,1 % TritonX-100 i 5 minutter. Etter vasking med PBS ble cellene forseglet med PBS inneholdende 5% BSA i 30 minutter. Celler ble vasket tre ganger med PBS og inkubert med anti-HA, anti-FLAG og anti-flavivirus, deretter inkubert med anti-mus FITC og anti-kanin Cy3 sekundære antistoffer. Celler ble farget med 40,6-Diamidino-2-phenylindole dihydrochloride (DAPI) og utført ved hjelp av et Olympus konfokalmikroskop.
2.11. GST nedtrekksanalyser
Plasmidet pGEX6p-1-NS4B ble transfektert inn i Escherichia coli (E. coli) stamme BL21. GST og GST-NS4B ble indusert av IPTG med en sluttkonsentrasjon på 0,5 mmol/L, og kulturene ble dyrket i ytterligere 6–8 timer ved 37 C. Og deretter GST-proteinet og GST- NS4B-protein ble renset fra E. coli-bakterier. GST- eller GST-NS4B-proteinet ble inkubert med glutation Sepharose-kuler (Novagen) og vasket tre ganger med PBS. GST- og GST-NS4B-protein ble inkubert med det eukaryote fusjonsproteinet HA-DHCR7, som stammet fra plasmider som koder for HA-DHCR7-uttrykte HEK293T-cellelysater i 4 timer ved 4 C. Utfellingene ble vasket fem ganger, kokt i 2 SDS-lastebuffer, og detektert ved Western blot med anti-GST og anti-HA antistoffer.
2.12. HA-DHCR7 stedsrettet mutagenese
Passende par av mutagene primere (tilleggstabell S1) ble syntetisert og brukt til å generere den muterte konstruksjonen ved PCR. HA-DHCR7 ble brukt som mal for PrimeSTAR® HS Premix (Takara). Etter PCR ble villtypeplasmidet som var igjen i PCR-produktet selektivt spaltet av DpnI (New England Biolabs). Det fordøyde PCR-produktet ble transfektert inn i E. coli-stamme DH5. Den ønskede mutanten ble bekreftet ved Sanger-sekvensanalyse.

cistanche planteøkende immunsystem
2.13. Statistisk analyse
Alle forsøk ble gjentatt minst tre ganger med lignende resultater. Data er uttrykt som gjennomsnittlig standardavvik (SD). Betydningen av variabiliteten ble bestemt av studentens to-halede uparrede t-test for to-gruppe eller enveis ANOVA med Dunnetts multiple sammenligningstest eller toveis ANOVA med Sidaks multiple sammenligningstest for flere gruppesammenligninger ved bruk av GraphPad Prism-programvaren (versjon 8.0.1). En verdi på P < 0.{{10}}5 ble ansett for å være statistisk signifikant, og P > 0.05 ble identifisert som statistisk ikke-signifikant. For alle dataene ble signifikansen presentert som *P < 0,05, **P < 0,01 og ***P < 0,001.
3. Resultater
3.1. ZIKV-infeksjon induserer DHCR7-ekspresjon
Akkumulerende bevis har vist at kolesterolmetabolisme påvirker vertens medfødte immunrespons mot flavivirusinfeksjon, slik som ZIKV og Dengue-virus (DENV) (Leier et al., 2020; Randall, 2018). DHCR7 koder for et enzym som transformerer 7-DHC til kolesterol, det siste trinnet i biosyntesen av kolesterol (Moebius et al., 1998). Vi oppdaget først DHCR7-ekspresjon ved ZIKV-infeksjon. Human astrocytt U251 ble infisert med ZIKV, som doseavhengig økte DHCR7-ekspresjon ved både mRNA og protein (fig. 1A-C). For å bekrefte fenomenet undersøkte vi deretter DHCR7-ekspresjon i Vero-celler og fant at ZIKV-infeksjon vesentlig induserte DHCR7-ekspresjon (fig. 1D-F), som var i samsvar med resultatene i U251-celler.

cistanche fordeler-styrker immunforsvaret
3.2. Målretting mot DHCR7 fremkaller en kritisk anti-ZIKV-aktivitet
For å evaluere effekten av DHCR7 mot ZIKV-infeksjon, ble U251- og A549-cellene transfektert med HA-DHCR7-kodende plasmid og deretter infisert med ZIKV (MOI ¼ 1). Resultatene viste at DHCR7-overekspresjon betydelig forbedret ZIKV mRNA-ekspresjon (fig. 2A og B). Spesielt med akkumulering av DHCR7-protein ble uttrykket av ZIKV strukturelt protein E også økt (fig. 2C og D). I tillegg gjennomførte vi videre en plakkanalyse ved å bruke supernatanten fra Fig. 2C og fant at DHCR7-overekspresjon steg signifikant opp i plakkdannende enheter, sammenlignet med kontrollgruppen (Fig. 2E og F). Missense-mutasjonen G410S av DHCR7 er rapportert å oppheve enzymaktivitet (Fitzky et al., 1998; Shim et al., 2004; Witsch-Baumgartner et al., 2000). For ytterligere å bestemme effekten av DHCR7 på ZIKV-infeksjon, konstruerte vi deretter en inaktiv mutant av DHCR7 (G410S). Sammenlignet med villtypen av DHCR7, kunne G410S-mutanten betydelig hemme ZIKV-infeksjon (fig. 2G). Vi utførte også en konfokal mikroskopianalyse for å bekrefte observasjonen. Som vist i fig. 2H, økte overekspresjon av DHCR7 ZIKV-infeksjon. For å finne ut om endogen DHCR7-enzymaktivitet er kritisk for ZIKV-infeksjon, designet vi to korte hårnåls-RNA-er (shDHCR7-1 og sh-DHCR7-2) spesifikt målrettet mot DHCR7 og generert DHCR7-dempet U251-celle linjer med shRNA-system (fig. 3A). Til slutt valgte vi en sh-DHCR7-1 for dens høyere lyddempingseffektivitet. Sammenlignet med cellelinjetransdusert kontroll shRNA, viste disse DHCR7 knockdown-cellene lavere mottakelighet for ZIKV-infeksjon (fig. 3B og C). Vi brukte deretter den selektive DHCR7-hemmeren AY9944 som hindrer 7-DHC i å konvertere til kolesterol (Xu et al., 2011), som har vist seg å hemme DHCR7 enzymaktivitet (Horlick, 1966; Moebius et al., 1998). Sammenlignet med kontroll hemmet AY9944-administrasjon doseavhengig ZIKV-infeksjon i U251-celler (fig. 3D-F). Plakkanalyse ble også utført i Vero-celler for ytterligere å vurdere effekten av DHCR7, og viser at AY9944 kunne undertrykke ZIKV-infeksjon betydelig (fig. 3G og H). Spesielt viste konfokal mikroskopi at ZIKV E-protein ble betydelig redusert i nærvær av AY9944 (fig. 3I). Disse funnene indikerte at målretting mot DHCR7 kunne hemme ZIKV-infeksjon.

Fig. 1. ZIKV-infeksjon induserer DHCR7-ekspresjon. A–F U251- og Vero-celler ble infisert med ZIKV (MOI ¼ 0, 1 og 2) i 24 timer, og de intracellulære RNA-nivåene av ZIKV (A, D) og DHCR7 (B, E) ble bestemt av RT-PCR med GAPDH som internkontroll. De relative proteinnivåene til DHCR7- og ZIKV-konvolutter ble påvist ved Western blot (C, F). Data er fra minst tre uavhengige eksperimenter (gjennomsnittlig SD) eller representative data (C, F). Statistisk signifikans ble beregnet ved å bruke enveis ANOVA med Dunnetts multiple sammenligningstest (A, B, D, E). **P < 0.01, ***P < 0,001. SD, standardavvik.
3.3. DHCR7 hemmer TBK1- og IRF3-aktivering for å redusere IFN- og ISG-produksjonen
Siden DHCR7 er det vitale enzymet for å konvertere 7-DHC til kolesterol (Moebius et al., 1998) og ZIKV-infeksjon kan øke DHCR7-ekspresjonen, målte vi dermed kolesterolnivået ved ZIKV-infeksjon. Vi avslørte at ZIKV-infeksjon har liten effekt på kolesterolsyntese i U251- og Vero-celler (fig. 4A og B), selv om DHCR7 ble økt (fig. 1A-D). Gitt den forbedrede DHCR7 ved ZIKV-infeksjon og nøkkelrollene til IFN-er i å konfrontere ZIKV-infeksjon, bestemte vi deretter effekten av DHCR7 på IFN-I-signalveien. Kontroll- og DHCR-{11}}dempende U251-celler ble infisert med ZIKV eller transfektert med poly(I:C), og IFN-ekspresjon ble utforsket. Sammenlignet med kontrollgruppen, forbedret ZIKV-infeksjon eller poly(I:C)-behandling markant IFN-ekspresjon i DHCR7-dempende U251-celler (fig. 4C og D). ISG-er er effektorer av interferon-handlinger og spiller store roller i medfødt immunforsvar mot ZIKV-infeksjon. Vi viste også at blokkering av DHCR7 betydelig kunne forsterke ISG15- og ISG56-uttrykk på både mRNA- og proteinnivåer (fig. 4E-J). Konsekvent kunne DHCR7-hemmer AY9944-behandling indusere IFN-, ISG15 og ISG56-ekspresjon (fig. 4K, L). Det er viktig at den inaktive mutanten G410S delvis kan reversere de hemmende effektene av DHCR7 på IFN- og ISG-ekspresjon (fig. 4M, N). TBK1- og IRF3-aktivering er avgjørende for IFNs-ISGs-induksjon, og derfor undersøkte vi deretter effekten av DHCR7 på TBK1- og IRF3-ekspresjon og aktivering. Vi demonstrerte at DHCR7 ikke bare doseavhengig hemmet proteinnivået, men også undertrykte nivået av TBK1- og IRF3-fosforylering (fig. 5A-C). Dessuten reverserte den inaktive mutanten G410S ufullstendig de hemmende effektene av DHCR7 på IRF3- og TBK1-fosforylering (fig. 5D). Uoverensstemmelse med funnene av DHCR7-overuttrykk, kunne AY9944-behandling indusere IRF3- og TBK1-aktivering i U251-celle (fig. 5E).
3.4. ZIKV NS4B interagerer med DHCR7 for å hemme TBK1- og IRF3-fosforylering
Montering av bevis har avslørt at ZIKV utviklet spesifikke NS-proteiner for å lette effektiv replikering i vertsceller ved direkte å unnvike verts medfødt og adaptiv immunitet via en mengde diskrete mekanismer. Vi utførte en co-IP-analyse for å screene for det individuelle ZIKV NS-proteinet som kunne samhandle med DHCR7. HEK293T-celler ble co-transfektert med pCMV-DHCR7-HA og plasmid som uttrykker individuelt NS-protein fusjonert med Flag-tag. Som vist i fig. 6A, binder DHCR7 seg bare til NS4B, men klarer ikke å samhandle med andre NS-proteiner. Gjensidige co-IP-analyser ble videre utført og viste at NS4B-protein interagerte med DHCR7 i HEK293T-celler (fig. 6B og C). For å bekrefte interaksjonen mellom NS4B og DHCR7, utførte vi deretter et konfokalt mikroskop og fant at NS4B-protein og DHCR7-protein ble kolokalisert i cytoplasmaet (fig. 6D). GST nedtrekksanalyse demonstrerte ytterligere interaksjonen mellom NS4B og DHCR7 (fig. 6E). Videre kan forbigående transfeksjon av NS4B i U251-celler dramatisk indusere DHCR7-ekspresjon (fig. 6F). Viktigere, NS4B kunne doseavhengig blokkere fosforylering av både TBK1 og IRF3, som var positivt korrelert med den forbedrede aktiveringen av TBK1 og IRF3 som respons på DHCR7 (fig. 6G og H). Imidlertid reduserte NS4B-overekspresjon i HEK293T-celler signifikant proteinnivået til TBK1, men hadde liten effekt på IRF3-protein (fig. 6G og H). For ytterligere å bekrefte disse observasjonene ble NS4B transfektert inn i DHCR7 knockdown U251-celler og viste hemmende effekter på endogene protein- og fosforyleringsnivåer av TBK1 og IRF3 (fig. 6I). Til sammen viste disse resultatene at ZIKV NS4B interagerte med DHCR7 og forbedret DHCR7-ekspresjon for å blokkere TBK1- og IRF3-aktivering og deretter lette ZIKV-infeksjon.
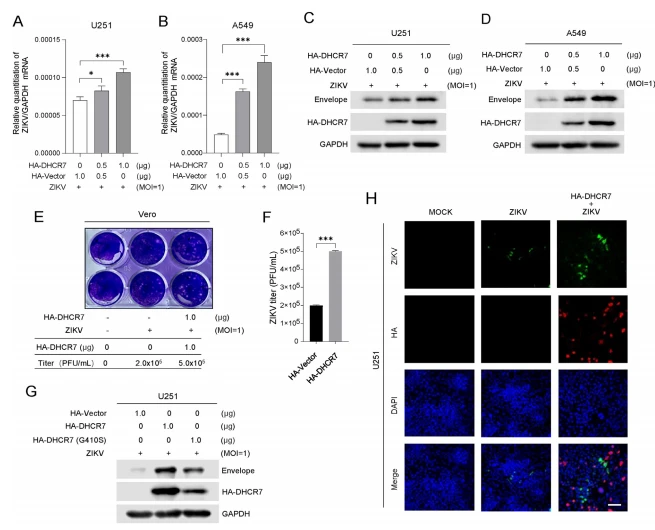
Fig. 2. Overekspresjon av DHCR7 fremmer ZIKV-replikasjon. A–D U251- og A549-celler ble transfektert med HA-vektor eller HA-DHCR7 ved de angitte konsentrasjonene i 12 timer og deretter infisert med ZIKV i ytterligere 36 timer. ZIKV RNA-nivåene ble påvist ved RT-PCR med GAPDH som en intern kontroll (A, B), og proteinnivåene til ZIKV-konvolutten, HA-DHCR7 og GAPDH ble påvist ved Western blot (C, D). E, F Vero-celler ble infisert med ZIKV-holdig supernatant fra Fig. 2C i 48 timer for å bestemme ZIKV-kopier ved plakkanalyse. G U251-celler ble transfektert med HA-vektor, HA-DHCR7 eller HA-DHCR7 (G410S) i 12 timer og infisert med ZIKV i 36 timer, og proteinnivåene til ZIKV-konvolutten, HA-DHCR7 og GAPDH ble påvist ved Western blot. H U251-celler ble transfektert med HA-vektor eller HA-DHCR7 (1 ug) i 12 timer infisert med ZIKV i 36 timer, og deretter inkubert med muse-anti-flavivirus og kanin-anti-HA-antistoffer, etter farget med FITC-konjugert antimus og Cy3-konjugerte anti-kanin sekundære antistoffer. Kjerner ble farget med DAPI. Bildene ble visualisert ved konfokalmikroskopi. Målestokk ¼ 100 μm. Data er fra minst tre uavhengige eksperimenter (gjennomsnittlig SD) eller representative data (C, D, E, G, H). Statistisk signifikans ble beregnet ved å bruke Students to-halede uparrede t-test (F) eller enveis ANOVA med Dunnetts multiple sammenligningstest (A, B). *P < 0,05, ***P < 0,001. SD, standardavvik.
4. Diskusjon
Type I IFN-er og deres nedstrøms ISG-er konfronterer en stor serie patogener og spiller en avgjørende rolle i vertens immunforsvar mot ZIKV (Lazear et al., 2016). For å unngå den IFN-medierte overvåkingen og oppnå tilstrekkelig replikasjon, utvikler ZIKV NS-proteiner rettet mot ulike punkter i IFN-signalveien for å flykte fra det cellulære medfødte immunsystemet (Lee et al., 2021). Monteringsstudier har illustrert at ZIKV NS1, NS3, NS4A og NS5 hemmer distinkte moduler av RIG-I/IFN-I-banen og letter virusinfeksjon ved å bruke uavhengige og forskjellige mekanismer (Grant et al., 2016; Kumar et al., 2016 ; Ma et al., 2018; Riedl et al., 2019; Xia et al., 2018; Zheng et al., 2018). Imidlertid er den spesifikke mekanismen til ZIKV NS4B som motvirker immunrestriksjon dårlig definert. ZIKV NS4B er et ekstremt hydrofobt protein som består av 251 aminosyrer og er lokalisert i den endoplasmatiske retikulummembranen med N-terminal (Zou et al., 2014). NS4B-hemming av IFN-I-signalveien har blitt identifisert i forskjellige flavivirus (Ding et al., 2013; Munoz-Jordan et al., 2003, 2005; Shan et al., 2021; Yi et al., 2016; Zhang et al. al., 2021). En fersk studie har rapportert at ZIKV INMI1-stammen isolert i Brasil bruker NS4B for å antagonisere nedstrøms for IFN-I-signalveien ved å knuse STAT1-fosforylering og følgelig avbryte STAT1-kjernetransport (Fanunza et al., 2021). I denne studien fant vi en distinkt mekanisme der ZIKV NS4B avskaffet IFN-produksjon ved å undertrykke TBK1 og IRF3 fosforylering, oppstrømskomponenten av IFN-I signalveien. Spesielt har aminosyresubstitusjon (G18R) blitt oppdaget i ZIKV NS4B, noe som bidro til redusert IFN-produksjon og svekket ISG-ekspresjon, og følgelig lettet virusinfeksjon i mus, noe som indikerer betydningen av NS4B som en determinant for patogenesen (Gorman et al. ., 2018). Nye bevis indikerte den kritiske betydningen av kolesterolmetabolisme som deltar i medfødt immunrespons (Akula et al., 2016; Dang et al., 2017; Reboldi et al., 2014; York et al., 2015). Selv om flere mellomprodukter i kolesterolmetabolismen har blitt dokumentert å ha brede antivirale effekter (Blanc et al., 2013; Li et al., 2017; Liu et al., 2013; Xiao et al., 2020), illustrerte vår studie en ny mekanisme at kolesterolmetabolsk enzym DHCR7 var involvert i ZIKV-infeksjon ved å dempe TBK1- og IRF3-aktivering for å lette virusinfeksjon. Som et nøkkelenzym involvert i desmosterol- og kolesterolmetabolisme, representerer DHCR7 en overgang for å konvertere 7-DHC til vitamin D i hudceller utsatt for UVB (Prabhu et al., 2016b). Dessuten er DHCR7 plassert ikke bare ved inngangsporten til Bloch-banen, men også på slutten av Kandutsch-Russell-banen (Prabhu et al., 2016a, 2016b), som spiller en viktig rolle i å kontrollere kolesterolsyntesen. Krysstalen av DHCR7 og dens interaksjon med andre enzymer i flere veier kan styrke flere funksjoner i forskjellige celletyper eller organer. Tidligere studie har avslørt at blokkering av DHCR7 kan redusere desmosterol, den umiddelbare forløperen til kolesterolbiosyntese, og dermed tilby tilstrekkelig beskyttelse mot HCV-infeksjon (Luu et al., 2015; Rodgers et al., 2012). Viktigere, Xiao et al. har vist at VSV-infeksjon reduserer DHCR7-ekspresjonen, noe som fører til redusert kolesterol, men mye mer 7-DHC-akkumulering i makrofager og leveren (Xiao et al., 2020). Makrofager behandlet med 7-DHC ga en forbedret antiviral respons; mens tilsetning av kolesterol viste mindre beskyttelse. DHCR7-hemmere og administrering av 7-DHC kan være nyttige tilnærminger for å bekjempe virusinfeksjoner som HIN1, HSV og VSV. I denne studien fant vi at DHCR7-hemmer AY9944 kunne undertrykke ZIKV-infeksjon. Imidlertid avslørte vår studie at ZIKV-infeksjon induserte DHCR7-ekspresjon, men hadde liten effekt på kolesterolbiosyntesen i gliaceller. Vi undersøkte ikke nivået av 7-DHC-ekspresjon etter ZIKV-infeksjon, men det er likevel verdt å undersøke videre om 7-DHC og AY9944 har en synergisk terapeutisk effekt for å behandle pasienter som har blitt infisert med ZIKV infeksjon i hjernen. DHCR7-overekspresjon fremmet ZIKV-infeksjon, mens behandlingen med DHCR7-selektiv hemmer (AY9944) økte IFN-produksjonen mot ZIKV-infeksjon sterkt. TBK1- og IRF3-aktivering er avgjørende for priming av IFN-I-signalering. Tidligere undersøkelser viste at DHCR7-demping eller 7-DHC-behandling aktiverte PI3K-AKT3-veien for å fosforylere IRF3, men ikke TBK1 i makrofager (Xiao et al., 2020). Likevel viste funnene våre at DHCR7 doseavhengig reduserte både IRF3- og TBK1-uttrykk, samt IRF3- og TBK1-fosforylering. Disse undersøkelsene antydet at DHCR7 kan bidra til ZIKV-infeksjon i en kolesterolmetabolismeuavhengig mekanisme i hjernen. Det har blitt godt belyst at ZIKV brukte NS-proteiner for å samhandle direkte med forskjellige komponenter i RIG-I/IFN-I-veien for å unngå immunrespons og lette viral replikasjon. Vi har tidligere rapportert interaksjonen av ZIKV NS5 med RIG-I for å dempe IFN-produksjon (Li et al., 2020). Andre viste at ZIKV NS1 og NS2B målrettet mot TBK1, NS3 målrettet mot RIG-I og MDA5 for å redusere produksjonen av IFN-I og ISG (Lee et al., 2021; Riedl et al., 2019). Imidlertid forblir funksjonen til ZIKV NS-proteiner rettet mot kolesterolmetabolisme stort sett unnvikende. I denne studien har vi også illustrert en urapportert interaksjon mellom det kolesterolmetabolske enzymet DHCR7 og ZIKV NS-proteiner. Vi viste DHCR7 spesifikt bundet til NS4B, ikke til andre NS-proteiner. Vi ga det kritiske beviset på at ZIKV NS4B interagerte med DHCR7, og vesentlig induserte dets uttrykk, noe som var i samsvar med resultater i U251-celler ved ZIKV-infeksjon. Viktigere, bortsett fra direkte å demonstrere engasjementet til DHCR7 og ZIKV NS4B, fant vi også at ZIKV NS4B økte DHCR7-ekspresjonen for å hemme TBK1- og IRF3-fosforylering og lette ZIKV-infeksjon. I samsvar med resultatene våre viste en nylig studie at DHCR7-mangel kunne aktivere IRF3- og IFN-signalering for å hemme VSV og andre virus i makrofager.
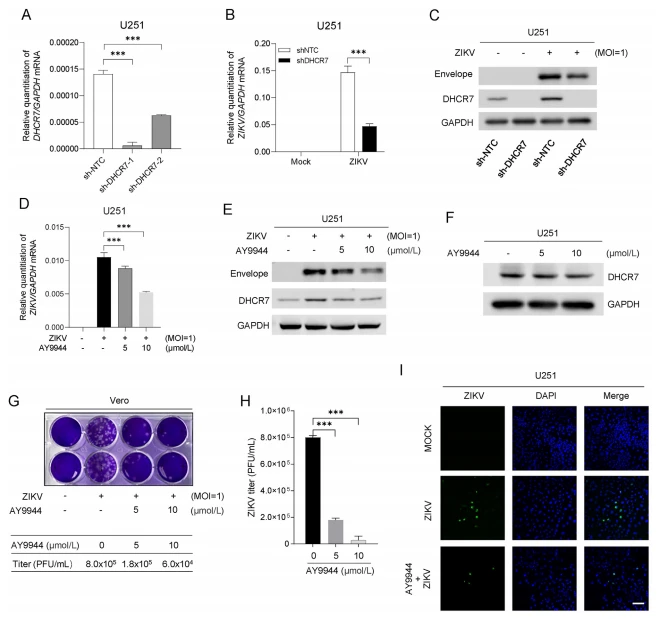
Fig. 3. Knockdown av DHCR7 reduserer ZIKV-infeksjon i U251-celler. U251-celler ble transdusert med de lentivirale partiklene som inneholdt shRNA mot DHCR7 (shDHCR7-1 og sh-DHCR7-2) eller en ikke-målsekvens (sh-NTC), etterfulgt av puromycinseleksjon i 14 dager. Knockdown-effektiviteten ble bestemt ved RT-PCR. B, C DHCR7-dempende U251 (sh-DHCR7)- og sh-NTC U251-celler ble falske eller ZIKV-infiserte (MOI ¼ 1) i 36 timer. Det intracellulære ZIKV RNA-nivået ble påvist ved RT-PCR med GAPDH som en intern kontroll (B), og proteinnivåene til ZIKV-konvolutten, DHCR7 og GAPDH ble påvist ved Western blot (C). D, E U251-celler ble behandlet med DHCR7-hemmer AY9944 ved den angitte konsentrasjonen i 2 timer, deretter infeksjon med ZIKV (MOI ¼ 1) i 48 timer. Cellene ble utsatt for RT-PCR for å påvise ZIKV RNA (D). Proteinnivåene til ZIKV-konvolutten, DHCR7 og GAPDH ble påvist ved Western blot (E). F U251-celler ble behandlet med DHCR7-hemmer AY9944 ved den angitte konsentrasjonen i 36 timer, og DHCR7 og GAPDH ble påvist ved Western blot. G, H Vero-celler ble infisert med ZIKV-holdig supernatant fra Fig. 3E i 48 timer for å bestemme ZIKV-kopier ved plakkanalyse. I U251-celler ble behandlet med AY9944 ved den angitte konsentrasjonen i 2 timer, deretter infeksjon med ZIKV ved MOI ¼ 1 i 36 timer. Bildene ble visualisert ved konfokalmikroskopi. Målestokk ¼ 100 μm. Data er fra minst tre uavhengige eksperimenter (gjennomsnittlig SD) eller representative data (C, E, F, G og I). Statistisk signifikans beregnes ved å bruke enveis ANOVA med Dunnetts multiple sammenligningstest (A, D, H) eller toveis ANOVA med Sidaks multiple sammenligningstest (B). ***P < 0,001. SD, standardavvik.
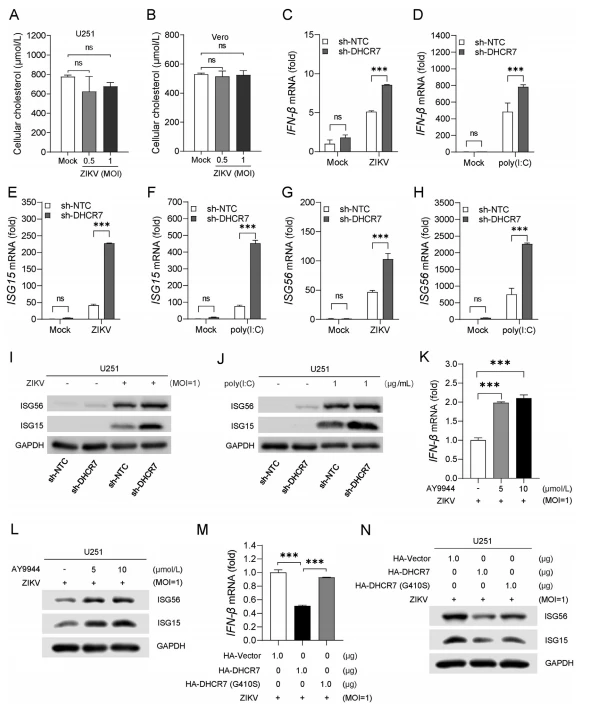
Fig. 4. DHCR7 hemmer IFN- og ISG-produksjon. A-, B U251- og Vero-celler ble infisert med ZIKV (MOI ¼ 0, 0.5 og 1) i 24 timer og cellulært kolesterol ble målt med analysesett for total-kolesterol i vev. C–H DHCR7-dempende U251 (sh-DHCR7) og sh-NTC U251-celler ble infisert med ZIKV (MOI ¼ 1) eller behandlet med Poly(I: C) (1 ug/mL) i 6 timer. Totalt cellulært RNA ble ekstrahert og utsatt for RT-PCR for mRNA-ekspresjonen med GAPDH som en intern kontroll. De relative uttrykkene for IFN- og ISG-er ble normalisert til det for sh-NTC-prøver i den falske gruppen, og foldendringer ble vist urimelige. IFN- (C, D), ISG15 (E, F) og ISG56 (G, H). I, J DHCR7-dempende U251 (sh-DHCR7) og sh-NTC U251-celler ble infisert med ZIKV (MOI ¼ 1) eller transfektert med Poly(I: C) (1 ug/ml) i 24 timer, og proteinnivåene til ISG15, ISG56 og GAPDH ble påvist ved Western blot. K U251-celler ble behandlet med den angitte dosen AY9944 i 2 timer, deretter infisert med ZIKV (MOI ¼ 1) i 6 timer. IFN-RNA-nivået ble påvist ved RT-PCR med GAPDH som en intern kontroll. L U251-celler ble behandlet med den angitte dosen AY9944 i 2 timer og deretter infisert med ZIKV (MOI ¼ 1) i 24 timer. Proteinnivåene til ISG15, ISG56 og GAPDH ble påvist ved Western blot. M U251-celler ble transfektert med HA-vektor, HA-DHCR7 eller HA-DHCR7 (G410S) i 24 timer og infisert med ZIKV (MOI ¼ 1) i 6 timer. IFN-RNA-nivåene ble påvist ved RT-PCR med GAPDH som en intern kontroll. N U251-celler ble transfektert med HA-vektor, HA-DHCR7 eller HA-DHCR7 (G410S) i 24 timer, og deretter infisert med ZIKV (MOI ¼ 1) i 24 timer. Proteinnivåene til ISG15, ISG56 og GAPDH ble påvist ved Western blot. Data er fra minst tre uavhengige eksperimenter (gjennomsnittlig SD) eller representative data (I, J, L, N). Statistisk signifikans beregnes ved å bruke enveis ANOVA med Dunnetts multiple sammenligningstest (A, B, K, M) eller toveis ANOVA med Sidaks multiple sammenligningstest (C–H). ns, P > 0,05, ***P < 0,001. SD, standardavvik.

Fig. 5. DHCR7 hemmer TBK1- og IRF3-aktivering. A, B HEK293T-celler ble co-transfektert med TBK1-kodende plasmid sammen med DHCR7-uttrykkende plasmid eller tom vektor (A). HEK293T-celler ble co-transfektert med IRF3-kodende plasmid, RIG-I-kodende plasmid, sammen med DHCR7-uttrykkende plasmid eller tom vektor (B). Celler ble høstet 24 timer etter transfeksjon og utsatt for Western blot med indikerte antistoffer [anti-TBK1, anti-P-TBK1(S172), anti-IRF3, anti-PIRF3(S396), anti-HA og anti-GAPDH ]. C U251-celler ble transfektert med den angitte dosen av DHCR7-uttrykkende plasmid eller tom vektor i 24 timer. Celler ble deretter infisert med ZIKV (MOI ¼ 1) høstet 6 timer etter infeksjon og utsatt for Western blot med indikerte antistoffer [anti-TBK1, anti-P-TBK1(S172), anti-IRF3, anti-P-IRF3( S396), anti-HA og anti-GAPDH]. D U251-celler ble transfektert med HA-vektor, HA-DHCR7 eller HA-DHCR7 (G410S) i 24 timer. Celler ble deretter infisert med ZIKV (MOI ¼ 1) høstet 6 timer etter infeksjon og utsatt for Western blot med indikerte antistoffer [anti-TBK1, anti-P-TBK1(S172), anti-IRF3, anti-PIRF3(S396) anti-HA og anti-GAPDH]. E U251-celler ble behandlet med den angitte dosen AY9944 i 2 timer og infisert med ZIKV (MOI ¼ 1) i 6 timer, deretter utsatt for Western blot med indikerte antistoffer [anti-TBK1, anti-P-TBK1(S172), anti -IRF3, anti-P-IRF3(S396) og anti-GAPDH]. Data er fra minst tre uavhengige eksperimenter og vist som representative data (A–E).
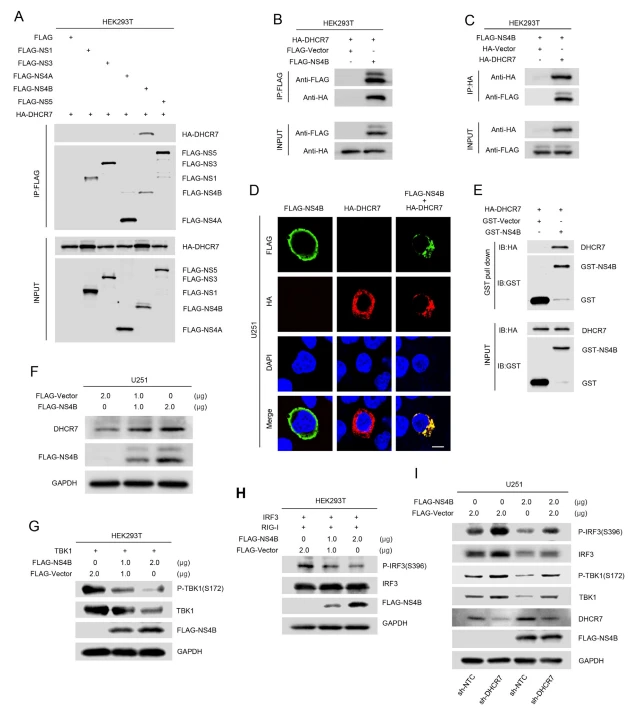
Fig. 6. ZIKV NS4B interagerer med DHCR7 for å hemme TBK1- og IRF3-fosforylering. A HEK293T-celler ble co-transfektert med plasmider som koder for HA-DHCR7, og plasmider som koder for ZIKV ikke-strukturelle proteiner (FLAG-NS1, FLAG-NS3, FLAG-NS4A, FLAG-NS4B og FLAG-NS5) eller tomt kontrollplasmid for 3 0 t. Cellelysatene ble immunutfelt med anti-Flag antistoffer og deretter analysert ved immunoblotting med indikerte antistoffer. B, C HEK293T-celler ble co-transfektert med plasmider som koder for HA-DHCR7, plasmider som koder for FLAG-NS4B, eller tomt kontrollplasmid i 30 timer. Cellelysatene ble immunutfelt med anti-HA-antistoff (B) eller anti-FLAG-antistoff (C) og deretter analysert ved immunoblotting med indikerte antistoffer. D U251-celler ble transfektert med FLAG-NS4B-plasmid sammen med plasmider som koder for HA-DHCR7. Lokaliseringen av FLAG-NS4B (grønn), HA-DHCR7 (rød), kjernemarkør DAPI (blå) og fusjon ble analysert med konfokalmikroskopi. Målestokk ¼ 10 μm. E Cellelysater fra HEK293T-celler transfektert med HA-DHCR7 ble inkubert med GST-protein eller GST-NS4B-protein som ble inkubert med glutation-Sepharose-kuler. Blandinger ble påvist ved Western blot med anti-HA og anti-GST antistoffer (øverst). Lysater fra transfekterte HEK293T-celler og de rensede proteinene ble påvist ved Western blot med anti-HA- og anti-GST-antistoffer (nederst). F U251-celler ble transfektert med plasmid som koder for FLAG-NS4B (0, 1, 2 ug). De relative proteinnivåene til DHCR7, FLAG-NS4B og GAPDH ble påvist ved Western blot. G, H HEK293T-celler ble kotransfektert med NS4B-uttrykkende plasmid eller tom vektor, sammen med TBK1-kodende plasmid (F), IRF3-uttrykkende plasmid og plasmider som koder for RIG-I (G) . Celler ble høstet 24 timer etter transfeksjon og utsatt for Western blot med indikerte antistoffer [anti-TBK1, anti-P-TBK1(S172), anti-IRF3, anti-P-IRF3(S396), anti-FLAG og antiGAPDH ]. I DHCR7-dempende U251 (sh-DHCR7) og sh-NTC U251 celler ble transfektert med NS4B-uttrykkende plasmid eller tom vektor. Celler ble høstet 6 timer etter transfeksjon og utsatt for Western blot med indikerte antistoffer [anti-TBK1, anti-P-TBK1(S172), anti-IRF3, anti-P-IRF3(S396), anti-FLAG og antiGAPDH ]. Data er representative for tre uavhengige eksperimenter.
5. Konklusjoner
Oppsummert viste en tidligere studie at kolesterolmetabolismeenzymet DHCR7 er involvert i medfødt immunrespons mot ulike virusinfeksjoner. Vår studie har presentert at ZIKV NS4B interagerte med DHCR7 og induserte DHCR7-ekspresjon. Den økte DHCR7 hemmer kraftig TBK1- og IRF3-aktivering og resulterer i redusert IFN- og ISG-produksjon, som dermed letter ZIKV-infeksjon i gliaceller. Disse funnene har avdekket en ny viral immununnslippende mekanisme som ZIKV overvinner immunrespons ved direkte å målrette DHCR7 med NS4B.
Referanser
Akula, MK, Shi, M., Jiang, Z., Foster, CE, Miao, D., Li, AS, Zhang, X., Gavin, RM, Forde, SD, Germain, G., Carpenter, S., Rosadini, CV, Gritsman, K., Chae, JJ, Hampton, R., Silverman, N., Gravallese, EM, Kagan, JC, Fitzgerald, KA, Kastner, DL, Golenbock, DT, Bergo, MO, Wang, D ., 2016. Kontroll av den medfødte immunresponsen ved hjelp av mevalonatveien. Nat. Immunol. 17, 922–929.
Berthoud, L., 2020. Begrensningen av flavivirus. Virol. Synd. 35, 363–377.
Blanc, M., Hsieh, WY, Robertson, KA, Kropp, KA, Forster, T., Shui, G., Lacaze, P., Watterson, S., Griffiths, SJ, Spann, NJ, Meljon, A., Talbot, S., Krishnan, K., Covey, DF, Wenk, MR, Craigon, M., Ruzsics, Z., Haas, J., Angulo, A., Griffiths, WJ, Glass, CK, Wang, Y. , Ghazal, P., 2013. Transkripsjonsfaktoren STAT-1 kobler makrofagsyntese av 25-hydroksykolesterol til den antivirale interferonresponsen. Immunitet 38, 106–118.
Cao-Lormeau, V.-M., Blake, A., Mons, S., Lastere, S., Roche, C., Vanhomwegen, J., Dub, T., Baudouin, L., Teissier, A., Larre, P., Vial, A.-L., Decam, C., Choumet, V., Halstead, SK, Willison, HJ, Musset, L., Manuguerra, J.-C., Despres, P., Fournier , E., Mallet, H.-P., Musso, D., Fontanet, A., Neil, J., Ghawche, F., 2016. Guillain-Barre Syndrome-utbrudd assosiert med Zika-virusinfeksjon i Fransk Polynesia: et tilfelle -kontrollstudie. Lancet 387, 1531–1539.
Chazal, M., Beauclair, G., Gracias, S., Najburg, V., Simon-Loriere, E., Tangy, F., Komarova, AV, Jouvenet, N., 2018. RIG-I gjenkjenner 5'eren region av dengue- og Zika-virusgenomer. Cell Rep. 24, 320-328.
Chen, Q., Gouilly, J., Ferrat, YJ, Espino, A., Glaziou, Q., Cartron, G., El Costa, H., AlDaccak, R., Jabrane-Ferrat, N., 2020. Metabolic omprogrammering av Zika-viruset provoserer betennelse i den menneskelige morkaken. Nat. Commun. 11, 2967. Dang, EV, McDonald, JG, Russell, DW, Cyster, JG, 2017. Oksysterolbegrensning av kolesterolsyntese forhindrer AIM2-inflammasomaktivering. Celle 171, 1057–1071 e1011.
Ding, Q., Cao, X., Lu, J., Huang, B., Liu, YJ, Kato, N., Shu, HB, Zhong, J., 2013. Hepatitt C-virus NS4B blokkerer interaksjonen mellom STING og TBK1 for å unngå verts medfødt immunitet. J. Hepatol. 59, 52–58.
Fanunza, E., Grandi, N., Quartu, M., Carletti, F., Ermellino, L., Milia, J., Corona, A., Capobianchi, MR, Ippolito, G., Tramontano, E., 2021 INMI1 Zika-virus NS4B antagoniserer interferonsignalering ved å undertrykke STAT1-fosforylering. Virus 13, 2448.
Fitzgerald, KA, McWhirter, SM, Faia, KL, Rowe, DC, Latz, E., Golenbock, DT, Coyle, AJ, Liao, SM, Maniatis, T., 2003. IKKε og TBK1 er essensielle komponenter i IRF3-signaleringen vei. Nat. Immunol. 4, 491-496.
Fitzky, BU, Witsch-Baumgartner, M., Erdel, M., Lee, JN, Paik, Y.-K., Glossmann, H., Utermann, G., Moebius, FF, 1998. Mutations i Δ{{ 3}}sterolreduktasegen hos pasienter med Smith-Lemli-Opitz syndrom. Proc. Natl. Acad. Sci. USA 95, 8181–8186.
Gorman, MJ, Caine, EA, Zaitsev, K., Begley, MC, Weger-Lucarelli, J., Uccellini, MB, Tripathi, S., Morrison, J., Yount, BL, Dinnon 3rd, KH, Ruckert, C. ., Young, MC, Zhu, Z., Robertson, SJ, McNally, KL, Ye, J., Cao, B., Mysorekar, IU, Ebel, GD, Baric, RS, Best, SM, Artyomov, MN, Garcia -Sastre, A., Diamond, MS, 2018. En immunkompetent musemodell av Zika-virusinfeksjon. Cell Host Microbe 23, 672–685.e6.
Grant, A., Ponia, SS, Tripathi, S., Balasubramaniam, V., Miorin, L., Sourisseau, M., Schwarz, MC, Sanchez-Seco, MP, Evans, MJ, Best, SM, Garcia-Sastre , A., 2016. Zika-virus retter seg mot human STAT2 for å hemme type I interferon-signalering. Cell Host Microbe 19, 882–890.
Hertzog, J., Dias Junior, AG, Rigby, RE, Donald, CL, Mayer, A., Sezgin, E., Song, C., Jin, B., Hublitz, P., Eggeling, C., Kohl, A., Rehwinkel, J., 2018. Infeksjon med et brasiliansk isolat av Zika-virus genererer RIG-I-stimulerende RNA og det virale NS5-proteinet blokkerer type I IFN-induksjon og signalering. Eur. J. Immunol. 48, 1120–1136.
Horlick, L., 1966. Effekt av en ny hemmer av kolesterolbiosyntese (AY 9944) på serum- og vevssteroler hos rotter. J. Lipid Res. 7, 116–121.
Ikonen, E., 2008. Cellulær kolesterolhandel og kompartmentalisering. Nat. Rev. Mol. Cell Biol. 9, 125–138.
Kato, H., Takeuchi, O., Sato, S., Yoneyama, M., Yamamoto, M., Matsui, K., Uematsu, S., Jung, A., Kawai, T., Ishii, KJ, Yamaguchi , O., Otsu, K., Tsujimura, T., Koh, CS, Reis e Sousa, C., Matsuura, Y., Fujita, T., Akira, S., 2006. Differensielle roller til MDA5 og RIG-I helikaser i gjenkjennelsen av RNA-virus. Natur 441, 101–105.
Kuan, V., Martineau, AR, Griffiths, CJ, Hypp€onen, E., Walton, R., 2013. DHCR7-mutasjoner knyttet til høyere vitamin D-status tillot tidlig menneskelig migrasjon til nordlige breddegrader. BMC Evol. Biol. 13, 144.
Kumar, A., Hou, S., Airo, AM, Limonta, D., Mancinelli, V., Branton, W., Power, C., Hobman, TC, 2016. Zika-virus hemmer type-I interferonproduksjon og nedstrøms signalisering. EMBO Rep. 17, 1766–1775.
Lazear, HM, Govero, J., Smith, AM, Platt, DJ, Fernandez, E., Miner, JJ, Diamond, MS, 2016. En musemodell av Zika-viruspatogenese. Cell Host Microbe 19, 720–730. Lee, LJ, Komarasamy, TV, Adnan, NAA, James, W., Rmt Balasubramaniam, V., 2021. Gjemsel: samspillet mellom Zika-virus og vertens immunrespons. Front. Immunol. 12, 750365.
Leier, HC, Weinstein, JB, Kyle, JE, Lee, JY, Bramer, LM, Stratton, KG, Kempthorne, D., Navratil, AR, Tafesse, EG, Hornemann, T., Messer, WB, Dennis, EA, Metz, TO, Barklis, E., Tafesse, FG, 2020. Et globalt lipidkart definerer et nettverk som er essensielt for replikering av Zika-virus. Nat. Commun. 11, 3652.
Li, A., Wang, W., Wang, Y., Chen, K., Xiao, F., Hu, D., Hui, L., Liu, W., Feng, Y., Li, G., Tan, Q., Liu, Y., Wu, K., Wu, J., 2020. NS5-konservativt sted er nødvendig for at Zika-viruset skal begrense RIG-I-signaleringen. Front. Immunol. 11, 51.
Li, C., Deng, YQ, Wang, S., Ma, F., Aliyari, R., Huang, XY, Zhang, NN, Watanabe, M., Dong, HL, Liu, P., Li, XF, Ye, Q., Tian, M., Hong, S., Fan, J., Zhao, H., Li, L., Vishlaghi, N., Buth, JE, Au, C., Liu, Y., Lu , N., Du, P., Qin, FX, Zhang, B., Gong, D., Dai, X., Sun, R., Novitch, BG, Xu, Z., Qin, CF, Cheng, G. , 2017. 25- Hydroksykolesterol beskytter verten mot Zika-virusinfeksjon og tilhørende mikrocefali i en musemodell. Immunitet 46, 446–456.
Liu, CI, Liu, GY, Song, Y., Yin, F., Hensler, ME, Jeng, WY, Nizet, V., Wang, AH, Oldfield, E., 2008. En kolesterolbiosyntesehemmer blokkerer Staphylococcus aureus virulens . Science 319, 1391–1394.
Liu, SY, Aliyari, R., Chikere, K., Li, G., Marsden, MD, Smith, JK, Pernet, O., Guo, H., Nusbaum, R., Zack, JA, Freiberg, AN, Su, L., Lee, B., Cheng, G., 2013. Interferon-induserbar kolesterol-25-hydroksylase hemmer stort sett viral inntreden ved produksjon av 25- 25-hydroksykolesterol. Immunitet 38, 92–105.
Luo, J., Yang, H., Song, BL, 2020. Mekanismer og regulering av kolesterolhomeostase. Nat. Rev. Mol. Cell Biol. 21, 225–245.
Luu, W., Hart-Smith, G., Sharpe, LJ, Brown, AJ, 2015. De terminale enzymene i kolesterolsyntesen, DHCR24 og DHCR7, samhandler fysisk og funksjonelt. J. Lipid Res. 56, 888–897.
Ma, J., Ketkar, H., Geng, T., Lo, E., Wang, L., Xi, J., Sun, Q., Zhu, Z., Cui, Y., Yang, L., Wang, P., 2018. Zika-virus ikke-strukturelt protein 4A blokkerer RLR-MAVS-signalering. Front. Microbiol. 9, 1350. Moebius, FF, Fitzky, BU, Lee, JN, Paik, YK, Glossmann, H., 1998.
Molekylær kloning og ekspresjon av den menneskelige delta7-sterolreduktasen. Proc. Natl. Acad. Sci. USA 95, 1899–1902.
Munoz-Jordan, JL, Laurent-Rolle, M., Ashour, J., Martinez-Sobrido, L., Ashok, M., Lipkin, WI, Garcia-Sastre, A., 2005. Hemming av alfa/beta-interferon-signalering av NS4B-proteinet til flavivirus. J. Virol. 79, 8004–8013.
Munoz-Jordan, JL, Sanchez-Burgos, GG, Laurent-Rolle, M., Garcia-Sastre, A., 2003. Hemming av interferon-signalering av dengue-virus. Proc. Natl. Acad. Sci. USA 100, 14333–14338.
Petersen, J., Drake, MJ, Bruce, EA, Riblett, AM, Didigu, CA, Wilen, CB, Malani, N., Mann, F., Lee, FH, Bushman, FD, Cherry, S., Doms, RW, Bates, P., Briley Jr., K., 2014. Den viktigste cellulære sterolreguleringsveien er nødvendig for Andes-virusinfeksjon. PLoS Pathog. 10, e1003911.
Pierson, TC, Diamond, MS, 2020. Den fortsatte trusselen om nye flavivirus. Nat. Microbiol. 5, 796–812. Prabhu, AV, Luu, W., Li, D., Sharpe, LJ, Brown, AJ, 2016a. DHCR7: en viktig enzymbytte mellom kolesterol- og vitamin D-produksjon. Prog. Lipid Res. 64, 138–151.
Prabhu, AV, Luu, W., Sharpe, LJ, Brown, AJ, 2016b. Kolesterolmediert nedbrytning av 7-dehydrokolesterolreduktase bytter balansen fra kolesterol til vitamin D-syntese. J. Biol. Chem. 291, 8363–8373. Randall, G., 2018. Lipiddråpemetabolisme under dengue-virusinfeksjon. Trender Microbiol. 26, 640–642.
Rasmussen, SA, Jamieson, DJ, Honein, MA, Petersen, LR, 2016. Zika-virus og fødselsdefekter – gjennomgang av bevis for årsakssammenheng. N. Engl. J. Med. 374, 1981–1987.
Reboldi, A., Dang, EV, McDonald, JG, Liang, G., Russell, DW, Cyster, JG, 2014. Betennelse. 25-Hydroksykolesterol undertrykker interleukin-1-drevet betennelse nedstrøms for type I-interferon. Science 345, 679–684.
Riedl, W., Acharya, D., Lee, JH, Liu, G., Sherman, T., Chiang, C., Chan, YK, Diamond, MS, Gack, MU, 2019. Zika-virus NS3 etterligner en cellulær { {2}}bindingsmotiv for å antagonisere RIG-I- og MDA5-mediert medfødt immunitet. Cell Host Microbe 26, 493–503 e496.
Rodgers, MA, Villareal, VA, Schaefer, EA, Peng, LF, Corey, KE, Chung, RT, Yang, PL, 2012. Lipidmetabolittprofilering identifiserer desmosterolmetabolisme som et nytt antiviralt mål for hepatitt C-viruset. J. Am. Chem. Soc. 134, 6896–6899. Savidis, G., Perreira, JM, Portmann, JM, Meraner, P., Guo, Z., Green, S., Brass, AL, 2016. IFITM-ene hemmer Zika-virusreplikasjon. Cell Rep. 15, 2323-2330.
Schneider, WM, Chevillotte, MD, Rice, CM, 2014. Interferon-stimulerte gener: et komplekst nett av vertsforsvar. Annu. Rev. Immunol. 32, 513–545.