Kostholdsanti-aldringspolyfenoler og potensielle mekanismer del 2
Aug 01, 2023
3. Potensielle antialdringsmekanismer
3.1. Antioksidanteffektene av polyfenoler
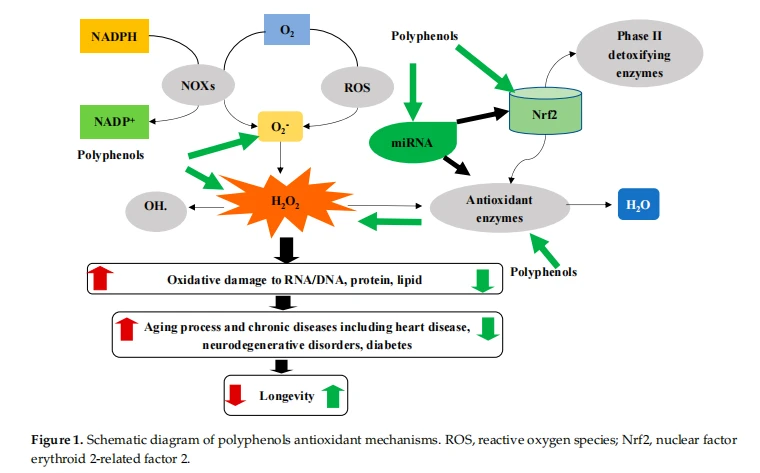
I følge teorien om frie radikaler er aldring et resultat av kronisk ubalanse (ekstra mengde ROS) mellom ROS og antioksidanter, også kalt oksidativt stress, som fører til cellulær senescens, funksjonelle endringer og patologiske tilstander [97,98] som diskutert ovenfor. Det har vært godt anerkjent at mange polyfenoliske forbindelser har antioksidantegenskaper. Som eksogene antioksidanter kan polyfenoler bekjempe ROS med minst fire mekanismer som fremhevet nedenfor.
Glykosid av cistanche kan også øke aktiviteten til SOD i hjerte- og levervev, og redusere innholdet av lipofuscin og MDA i hvert vev betydelig, effektivt rense ulike reaktive oksygenradikaler (OH-, H₂O₂, etc.) og beskytte mot DNA-skader forårsaket av OH-radikaler. Cistanche-fenyletanoidglykosider har en sterk renseevne for frie radikaler, en høyere reduserende evne enn vitamin C, forbedrer aktiviteten til SOD i sædsuspensjon, reduserer innholdet av MDA og har en viss beskyttende effekt på sædmembranfunksjonen. Cistanche-polysakkarider kan øke aktiviteten til SOD og GSH-Px i erytrocytter og lungevev hos eksperimentelt senescent mus forårsaket av D-galaktose, samt redusere innholdet av MDA og kollagen i lunge og plasma, og øke innholdet av elastin, har en god rensende effekt på DPPH, forlenger hypoksitiden hos eldre mus, forbedrer aktiviteten til SOD i serum og forsinker den fysiologiske degenerasjonen av lunge hos eksperimentelt eldre mus. Med cellulær morfologisk degenerasjon har eksperimenter vist at Cistanche har den gode antioksidantevnen og har potensial til å være et medikament for å forebygge og behandle aldringssykdommer. Samtidig har echinacoside i Cistanche en betydelig evne til å rense DPPH-frie radikaler og kan rense reaktive oksygenarter, forhindre frie radikal-indusert kollagennedbrytning, og har også en god reparasjonseffekt på anionskader av tymin frie radikaler.
Klikk på maca ginseng antioksidant cistanche
【For mer informasjon:george.deng@wecistanche.com / WhatApp:8613632399501】
For det første kan polyfenoler direkte fange ROS på grunn av tilstedeværelsen av fenoliske hydroksylgrupper på molekylene deres. Den ROS-fjernende kapasiteten til polyfenoler avhenger av antallet og posisjonen til hydroksylgruppen og substituentmønstrene, samt glykosyleringen av fytokjemiske molekyler [99–101]. For eksempel kaemferol-3,7,4'-trimetyleter, kaemferol-3,4'-dimetyleter, kaemferol{{10}}neohesperidosid og kaempferol, som har 1 (i 5-posisjonen), 2, 3 og 4 hydroksylsubstitusjoner er henholdsvis 0, 1,0, 1,6 og 2,7 ganger Trolox-ekvivalent antioksidantaktivitet [102]. Disse dataene tyder på at fenoliske forbindelser med flere hydroksylgrupper kan ha en sterkere antioksidantkapasitet. Dessuten er substitusjonsmønstre i B-ringen og A-ringen, samt 2, 3-dobbeltbindingen (umettethet) og 4-oksogruppen i C-ringen, viktige for antioksidanten kapasiteten til forbindelsene [103,104]. Polyfenoler med en 30,40 -o-dihydroksylgruppe i B-ringen, en 2,3-dobbeltbinding kombinert med en 4-ketogruppe i C-ringen, og en {{ 40}}hydroksylgruppen hadde den høyeste antioksidantaktiviteten [103,105]. Flavanoler med en galloyldel hadde høyere antioksidantaktivitet enn de uten, og en B-ring 30,40,50 -trihydroksygruppe forbedret deres effektivitet ytterligere [103,105]. Når C-3', og 4'-posisjonene i B-ringen av flavonoider erstattes med hydroksylgrupper, forbedret antioksidantaktiviteten bemerkelsesverdig, men antallet og substitusjonsposisjonene til metoksyl og glykosyl så ut til å ha liten effekt på antioksidanten aktivitet [106]. I en dyrestudie mottok C57BL/6J-mus en diett med polyfenolrik drueskallekstrakt (PGE) i en dose på 200 mg/kg kroppsvekt (BW)/d i en 3-uke, 6- måned og levetid [107]. Resultatene av denne studien viste at livslang PGE-fôring resulterte i en forbigående, men signifikant endring i overlevelseskurven, selv om den ikke påvirket den totale overlevelsesraten til dyrene [107]. Disse effektene av PGE er assosiert med forbedrede signalveier involvert i energihomeostase, antioksidantforsvar og mitokondriell biogenese, inkludert SIRT-stimulering [107].
For det andre kan polyfenoler utøve antioksidantaktivitet ved å regulere produksjon og aktivitet av endogene antioksidanter og oksidaseenzym. Som en primær mekanisme som nøytraliserer oksidanter, konverterer to intracellulære enzymer, natriumoksiddismutase 1 (SOD1) i cytosolen, og SOD2 i matrisen til mitokondrier, raskt superoksid til hydrogenperoksid. Hydrogenperoksid deaktiveres ytterligere av katalase (CAT) eller glutationperoksidaser (GSH-Px) til vann og oksygen. Tallrike studier rapporterte at curcumin (8 mg/kg) [108], EGCG (100 mg/kg) [109], eller quercetin (0,027 prosent i dietten) [110] reversert oksidativt stress forårsaket en reduksjon av GSH- og SOD-nivåer hos mus eller rotter. Resveratrol beskytter mot oksidativ skade ved å øke uttrykk for SOD1, CAT og hem oksygenase-1 (HO- 1) samt aktiviteten til SOD [111,112]. Tilsvarende forbedret oral administrering av epimediumflavonoider CAT- og GSH-Px-aktivitetene med henholdsvis 13,58 prosent og 5,18 prosent i D. melanogaster [113]. Genistein doseavhengig økte GSH-Px i brystkreftceller [114]. Flavonoid chrysin og dets derivater viser en høy selektivitet av GSH-utstrømning (transport av intracellulært GSH ut av cellen), som kan brukes til å drepe kjemoresistente kreftceller [115].
For det tredje kan polyfenoler forbedre cellulær antioksidantaktivitet ved å regulere Nrf2--medierte veier. Nrf2 er en transkripsjonsfaktor som regulerer ekspresjonen av flere avgiftende enzymer, inkludert SOD, GPx1, GSH, NADP(H) kinonoksidoreduktase 1 (NQO1), GST og HO-1, ved å binde seg til antioksidant-responselementene ( ARE) i promoterregionene til genene til disse enzymene [116]. Tallrike polyfenoler, inkludert EGCG [117], luteolin [118], curcumin [119] og epicatechin [120] kan øke Nrf2 DNA-bindende aktivitet eller proteinekspresjon og deretter øke NQO1, HO-1 og SOD uttrykk. Resveratrol (25–50 µM) økte 2.5- ganger NQO1-proteinnivåer og 3- til 5-fold NQO1-enzymatisk aktivitet i humane k562-celler [121]. Den mulige molekylære mekanismen er at resveratrol forstyrrer Nrf2-Keapl-komplekset i cytosolen, som stimulerer translokasjonen av Nrf2 til kjernen der den lokaliserer den ARE-holdige 5'-promoter-regionen til NQO1, noe som fører til transkripsjonsaktivering. [121].
Til slutt er det nye bevis som viser at polyfenoler kan motvirke ROS via regulerende mikroRNA (miRNA, se flere detaljer i neste avsnitt). MikroRNA (miRNA) er endogene, ikke-kodende, enkelttrådede og korte (19-22 av 22 nukleotider) RNA. miRNA-sekvens-spesifikt binder seg til 30 UTR av mRNA for å undertrykke eller indusere translasjon for å regulere ulike biologiske veier og prosesser, inkludert celledød og spredning, og menneskelige sykdommer som kreft og aldring. Til nå har mer enn 38 589 miRNA-er blitt katalogisert i flybasen (http://www.mirbase.org, tilgjengelig 1. desember 2020), og nesten 60 prosent av alle menneskelige transkripsjoner er spådd å bli regulert av miRNA-er [122]. Det ble nylig funnet at noen polyfenoler, inkludert quercetin, hesperidin, naringenin, antocyanin, katekin og curcumin reverserte ApoE-mutant-induserte endringer av miRNA, inkludert mmu-miR-291b-5p, mmu-miR -296-5p, mmu-miR-30c-1, mmu-miR-467b og mmu-miR-374, som til sammen regulerer 34 vanlige veier, inkludert veien for GSH-metabolisme [123]. En annen studie fant at curcumin nedregulerte uttrykket av miR-17-5p, miR-20A og miR-27a, som ble vist å modulere ROS-produksjon [124]. Kosttilskudd av quercetin (2 mg/g diett, 6 uker) økte ekspresjonsnivåene av hepatisk miR-122 og miR-125b hos diettinduserte overvektige mus med høyt fettinnhold [125], som var assosiert med redoksfaktor 1, en modulator av oksidativt stress [126]. Derfor, som vist i figur 1, kan polyfenoler beskytte celler mot oksidativt stress ved hjelp av flere mekanismer. Faktisk ble det vist at curcumin direkte kunne rense ROS [127], øke uttrykket av endogene antioksidanter [108], aktivere Nrf2-banen [119], og modulere miRNA [128].
3.2. Polyfenoler og cellulær alderdom
3.2.1. Cellulær alderdom og aldring
Aldring, som skjer med hver levende skapning, er en komplisert degenerativ prosess. En av de tidligste nedskrevne registreringene av menneskelige streben etter antialdringsmedisiner finnes i den tidligste kinesiske apotekmonografien, Shennong Materia Medica, i BC 220. Faktisk forsøkte forskere hele tiden å tyde drivkreftene bak aldring og omtrent 300 teorier om aldring. har blitt foreslått, men det er ingen dominerende som har blitt generelt akseptert av det vitenskapelige samfunnet for å overbevisende forklare aldringsprosessen [129]. Blant de tidlige teoriene om aldring, definerer aktivitetsteorien aldring som opprettholdelse av aktiviteter og holdninger til ungdom og middelalder så lenge som mulig [130]. Evolusjonsteorien indikerer at aldring ikke er drevet av skade, men forårsaker organellskade og funksjonsnedgang [131]. Å bli gammel er et utviklingsprogram som aldri stopper. Teorien om frie radikaler foreslår at aldring er et resultat av kumulativ skade på DNA, proteiner, lipider og andre makromolekyler forårsaket av ikke-nøytraliserte frie radikaler [132]. Det er en dynamisk balanse mellom oksidanter (ROS, og reaktive nitrogenarter, RNS) og antioksidanter i kroppen. ROS, primært superoksidanion (O2–˙), produseres primært av mitokondrier under energiproduksjon (omtrent 2 prosent av totalt oksygenforbruk) [133]. Superoksid omdannes raskt til hydrogenperoksid av to intracellulære enzymer, SOD1 i cytosolen og SOD2 i matrisen til mitokondrier. Hydrogenperoksid omdannes videre til vann og oksygen av katalase eller GPx [134]. Endogen antioksidant GSH og eksogene antioksidanter, inkludert vitamin C og E, kostholdspolyfenoler er også viktige ROS-rensere. Kronisk ubalanse (ekstra mengde ROS) mellom ROS og antioksidanter fører til cellulær senescens, funksjonelle endringer og patologiske tilstander [97,98].
Senescence (fra det latinske ordet "senex", som betyr å bli gammel), eller cellulær aldring, er en irreversibel cellesyklusstans i G1-fasen, fremkalt av overdreven intracellulær eller ekstracellulær stress eller skade [135,136]. Senescens er nødvendig for å begrense replikasjonen av gamle og skadede celler og andre skadelige endringer, og dermed inaktivere potensiell ondartet transformasjon [135,137]. Basert på kinetikken til cellealderprosesser, kan cellulær senescens primært kategoriseres som akutt (forbigående) eller kronisk (vedvarende) senescens. Mens akutt senescens er en del av normale biologiske prosesser som er nødvendige for å opprettholde fysiologisk homeostase og har en gunstig effekt på vev under embryonal utvikling, sårheling eller vevsreparasjon, har kronisk senescens skadelige effekter i celler og vev, spesielt hos eldre fordi disse cellene og vev er ikke i stand til å rense skadede celler gjennom den autofagiske prosessen, og fører til aldring og aldringsassosierte sykdommer som kreft [138]. Økende bevis viser at aldrende celler akkumuleres i vev fra mennesker, primater og gnagere med alderen [139], og akkumulering av aldrende celler var også assosiert med aldringsrelaterte sykdommer som diabetes [140], åreforkalkning [141] og fedme [142]. Interessant nok ble det vist at oksidativt stress er en av de viktigste induktorene av cellealderdom [143,144]. Derfor er det fristende å spekulere i at polyfenoler som eksogene antioksidanter kan ha potensial til å forhindre cellulær senescens og dermed aldringsprosessen.
3.2.2. Effektene av polyfenoler på cellulær alderdom
Polyfenolbehandling har gunstige effekter på visse typer sykdommer på grunn av deres virkning på å forhindre cellulær senescens. Kombinasjonsbehandling med et senolytisk legemiddel Dasatinib og quercetin, en godt studert flavonol som finnes i mange planter, reduserte akkumulering av senescerende celler i fettvev ved å undertrykke den senescensassosierte -galaktosidaseaktiviteten [145]. I samsvar med dette in vitro-funnet, lindret kombinasjonen av Dasatinib og quercetin senescensrelatert idiopatisk lungefibrose [146]. I en senescence-musemodell SAMP8-mus, viste gruppen som spiste en diett med 532 mg/kg olivenoljefenoler i 4,5 måneder signifikant lavere nivåer av oksidativ skade i hjertet og induserte levetidsrelaterte genuttrykk sammenlignet med gruppen som spiste en diett med bare 44 mg/kg olivenoljepolyfenoler [39]. Konsekvent ble det vist at kronisk behandling av pre-senescent humane lunge og neonatale humane dermale fibroblaster med 1 µM hydroksytyrosol eller 10 µM oleuropein aglycone effektivt reduserte senescent celleantall som demonstrert ved å måle -galaktosidase-positive celleuttrykk og proteiner [1 p147] . I tråd med dette funnet, forsinket oleuropeinbehandling utseendet av senescensmorfologi og forlenget levetiden til humane embryonale fibroblaster IMR90- og WI38-celler med omtrent 15 prosent [148]. Gallussyre ble rapportert å undertrykke -galaktosidaseaktivitet og uttrykket av oksidative stressmarkører i rotteembryonale fibroblastceller [149]. Disse resultatene tyder på at polyfenoler kan være i stand til å modulere cellulær senescens og dermed påvirke aldringsprosessen.
3.3. Polyfenoler kan ha antialdringseffekter ved å målrette mot mikroRNA
MikroRNA (miRNA) er små ikke-kodende RNA-molekyler som skilles ut fra celler til perifere kroppsvæsker, inkludert blod, spytt og urin, enten i assosiasjon med RNA-bindende proteiner som Argonaute 2, eller bundet til lipoproteiner med høy tetthet, og noen ' sirkulasjonsmiRNA er blitt foreslått som ikke-invasive biomarkører for aldring [150]. Tallrike miRNA-er har vist seg å direkte påvirke levetiden, som vist ved overuttrykk eller knockdown av miRNA i C. elegans, Drosophila og mus. Disse miRNA-ene, som miR-125, miR-17, let-7, AGO1 og AGO2, regulerte velkjente aldringssignalveier, inkludert målet for rapamycin (TOR), insulin/ insulinlignende vekstfaktor (IGF-1)-signalering, sirtuins-deacetylaser, mitokondriell/ROS-signalering og DNA-skaderespons [151]. I tillegg, ved bruk av celler eller musemodeller, har flere miRNA, inkludert miR-1000, miR-455-3p, miRNA-17/20a og miR-34a, vist seg å forlenge levetiden ved å forbedre aldringsforårsakede dysfunksjoner i organer som henholdsvis hjernen [152], muskel [153], bein [154] og hjerte [155]. Imidlertid brukte de fleste studier som utforsker og identifiserer levetidsmodulerende miRNA-er C. elegans og Drosophila, og miR-17 er det eneste miRNA som har blitt rapportert å forlenge levetiden direkte hos mus [156].

Mens studier som undersøker effekten av polyfenoler på miRNA-ekspresjon er begrenset, noe som er et spennende område å utforske i fremtiden, viser nye bevis at diettinntak av enkelte polyfenoler modulerer uttrykket av miRNA-er som er involvert i lang levetid. En studie fant at en lav dose med tilskudd av quercetin, hesperidin, naringenin, antocyanin, katekin eller curcumin (0.006 prosent , vekt/vekt, to uker) i kostholdet modulerte uttrykket av et bredt spekter av miRNA og rettet opp de ApoEmutantasjonsinduserte endringene av miRNA i leverene til ApoE-mangelfulle mus [123]. Disse polyfenolmodulerte miRNA-ene, inkludert mmu-miR-291b-5p, mmu-miR-296-5p, mmumiR-30c-1, mmu-miR{ {14}}b og mmu-miR-374, regulerer 30 vanlige veier, inkludert MAPK-signalveien, kalsiumsignalveien, insulinsignalveien, samt oksidativ fosforylering, hvorav noen er involvert i lang levetid i mus [123]. I tillegg kan miR-17, et pattedyrs levetidsmiRNA som direkte retter seg mot insulinreseptorsubstrat (Irs1) og adenylerer cyclase 5 (Adcy5), reguleres av polyfenoler. For eksempel oppregulerte katekin, proantocyaniner, naringin [123] og genistein [157] miR- 17 uttrykk i mus. Tilsvarende ble uttrykket av let-7, et vanlig miRNA med lang levetid bevart på tvers av C. elegans, Drosophila, mus og mennesker, forbedret av katekin, proantocyaniner og naringin i ApoE-mus [123]. Derfor kan noen polyfenoler virke gjennom miRNA for å regulere aldringsrelaterte veier, undertrykke betennelse og ROS-produksjon og forbedre lipidmetabolismen, noe som fører til en sunnere og forlenget levetid [128]. Effekten av polyfenoler på uttrykket av miRNA er kanskje ikke spesifikk. For eksempel ble epicatechin vist å modulere mer enn 73 miRNA involvert i forskjellige cellulære funksjoner i humane endotelceller [158]. Hos diabetikere oppregulerte diettinntak av drueekstrakt (8.1-16.2 mg polyfenoler) miR-21, miR-181b, miR-663 og miR{{38 }}c begått med de lavere nivåene av inflammatoriske cytokiner som IL-6, kjemokinligand 3, IL-1 og TNF- [159]. Det er imidlertid uklart om noen av disse miRNA-ene direkte medierer den anti-inflammatoriske virkningen til drueekstraktet.
3.4. Polyfenoler og NO biotilgjengelighet
Endotelial dysfunksjon, som følge av betennelse, fedme, diabetes, hypertensjon, hyperlipidemi og andre relaterte metabolske syndromer, er en viktig patogen årsak til kardiovaskulær sykdom [160]. Endotel dysfunksjon svekker produksjonen og biotilgjengeligheten av endotel nitrogenoksid (NO) syntase (eNOS)-avledet NO, som er nøkkelregulatoren for vaskulær tonus, blodtrykk og vaskulær betennelse [161]. Endotelproduksjonen og biotilgjengeligheten av NO reduseres også gradvis med aldring [162], noe som i det minste delvis tilskrives den økte produksjonen av ROS [163,164]. Under normale forhold kobles eNOS for å generere NO fra oksidasjonen av L-arginin. Imidlertid forårsaker overflødig oksidativt stress oksidasjon av tetrahydrobiopterin, en kritisk kofaktor for eNOS, som fører til eNOS frakobling fra produksjon av NO, men en avledning for å redusere oksygen for å danne superoksid [165,166], og dermed redusere biotilgjengeligheten av NO som senere akselererer utviklingen av vaskulær sykdom [163,164]. Dermed vil fremme av eNOS-ekspresjon/aktivitet og/eller NO-biotilgjengelighet være effektive metoder for å lindre aldringsassosiert endotelial dysfunksjon og deretter forsinke utviklingen av kardiovaskulær sykdom. Mange studier har vist at polyfenoliske forbindelser har beskyttende virkninger over kardiometabolsk syndrom [167], blant hvilke eNOS-ekspresjon/aktivitet og NO-biotilgjengelighet er de mest bestemte mekanismene [161,168–170]. Morin, et flavonoid, kan effektivt beskytte humane ventrikulære myocytter, saphenous vene endotelceller og erytrocytter mot oksyradikaler-indusert skade [171]. Videre fremmet morinbehandling eNOS-mediert NO-produksjon og vasodilatasjon av aorta i STZ-induserte diabetiske mus ved å aktivere Akt-signalveien [172,173]. Som tidligere nevnt har resveratrol tiltrukket seg økende forskningsinteresser [174,175]. Resveratrol-behandling økte eNOS-transkripsjonsaktiviteten og den eNOS-avledede NO-produksjonen i humane endotelceller i navlevenen [176]. Protocatechuic acid (PCA) er en hovedmetabolitt av grønn te polyfenoler med en sterk antioksidant egenskap [177]. Administrering av PCA (200 mg/kg/dag) forbedret insulin- og IGF-1-indusert vasorelaksasjon signifikant hos aldrende spontant hypertensive rotter via aktivering av PI3K/NOS/NO-banen [178]. Cyanidin-3-glukosid (Cy3G), et typisk antocyanin som finnes i dypfargede planter [179], har vist seg å fremme eNOS-proteinekspresjon og deretter øke NO-utgang i bovine arterie-endotelceller [170]. Interessant nok ble det funnet at flere polyfenoler, inkludert katekin, oleuropein, quercetin og EGCG, reduserer nitritt til NO i magen, noe som tyder på at polyfenoler kan være et nitrittreduksjonsmiddel på grunn av hydroksylgruppene på fenolringen [180]. Videre forbedret 12 uker med curcumin-tilskudd resistensarterie-endotelfunksjonen ved å øke vaskulær NO-biotilgjengelighet og redusere oksidativt stress [181]. Hos diabetiske rotter forbedret behandling med ekstrakt av grønn te, som hovedsakelig er sammensatt av EGCG, den diabetesinduserte reduksjonen av tetrahydrobiopterin, frakobling av eNOS og dermed økt NO-biotilgjengelighet og redusert oksidativt stress [165].
3.5. Polyfenoler kan fremme mitokondriell funksjon
In addition to the direct action on eNOS expression/activity, polyphenols were reported to activate Sirt1 [182,183], which is an upstream regulator of eNOS [184,185], therefore Sirt1-mediated mitochondrial biogenesis might underlie the anti-aging actions of polyphenols against oxidative stress. Indeed, resveratrol treatment increased mitochondrial biogenesis in wild-type mice but not eNOS knockout mice [179]. Activation of peroxisome proliferator-activated receptor-γ coactivator-1α (PGC-1α), the key regulator in mitochondrial biogenesis, has been reported to protect against aging-related diseases [16,185]. In vivo, resveratrol promoted liver PGC-1α activity and significantly extended the lifespan of mice fed a high-calorie diet [186]. In vitro, resveratrol treatment increased adenosine monophosphate (AMP)-activated protein kinase (AMPK) phosphorylation in CHO cells [186], suggesting the involvement of AMPK/Sirt1 signaling pathway in the action of resveratrol extending lifespan in mammals. Polyphenols treatment (resveratrol, apigenin, and S17834, a synthetic polyphenol) have been reported to phosphorylate AMPK in HepG2 cells, thereby subsequently protecting hepatocytes from high glucose-induced lipid accumulation [187]. Dysfunctional mitochondria can cause imbalanced ROS accumulation based on the free radical theory, which may exacerbate the progress of aging. Thus, targeting mitochondrial function can be an effective approach to slow aging. Interestingly, resveratrol treatment can improve the quality of oocytes from aged cows (>10 år gammel) ved å oppregulere mitokondriell biogenese [188], noe som tyder på en potensiell mekanisme for å bremse mors aldring. Hydroxytyrosol, en fenolisk forbindelse som finnes i olivenolje, økte effektivt antallet mitokondrier i 7PA2-celler, en veletablert cellemodell for å studere AD [189], noe som tyder på at polyfenoler kan bidra til å lindre det energiske underskuddet til AD-pasienter.
4. Konklusjoner og perspektiver
Interessen for bruk av komplementær og alternativ medisin, spesielt polyfenolrike naturprodukter, har økt betraktelig for å forbedre menneskers helse og velvære de siste to tiårene. Noen polyfenoler har til og med vist seg å forlenge levetiden i forskjellige modellorganismer. Polyfenoler ved suprafysiologiske eller høyere doser er godt kjent for å fjerne ROS direkte ved å donere et elektron eller hydrogenatom. Imidlertid kan de utøve antioksidantaktivitet in vivo via andre mekanismer som diskutert i denne artikkelen, gitt deres relativt dårlige biotilgjengelighet. Aldring og aldringsrelaterte lidelser er komplekse og sikkert påvirket av kostholdsvaner og genetisk bakgrunn. Denne anmeldelsen er ganske smal med tanke på den enorme innsatsen til forskere som undersøker de molekylære mekanismene som ligger til grunn for de fordelaktige virkningene til polyfenoler, men vi fremhevet nye bevis som kan gi nye mekanismer som ligger til grunn for antioksidant- og antialdringsvirkningene til polyfenoler. Mens bruken av polyfenoler for å forhindre aldringsrelaterte lidelser har vist seg å være lovende i ulike modellorganismebaserte studier, er sikkerheten og potensielle helsegevinster ved langvarig bruk av den individuelle rene forbindelsen hos mennesker fortsatt usikre. Det bør bemerkes at en matvare kan inneholde minst flere og til og med hundrevis av polyfenoler [190], og noen dietter som middelhavsdietten har flere polyfenolrike matvarer, som til sammen inneholder 290 forskjellige polyfenoler [191,192]. Derfor kan det være misvisende å tilskrive fordelene ved å konsumere bestemte polyfenolholdige matvarer til de individuelle polyfenolene, som ofte gis i mye høyere doser, spesielt i dyre- og in vitro-studier, enn de som muligens oppnås ved å innta de relevante matvarene eller kosttilskuddene. av mennesker [193]. I fremtiden kan det være mer relevant og interessant å undersøke de gunstige effektene av kombinasjonen av flere polyfenoler eller polyfenolrike matvarer, da en kombinasjon av polyfenoler kan ha synergistiske eller additive gunstige effekter [192,194].
Finansiering: Denne forskningen mottok ingen ekstern finansiering.
Interessekonflikter:Forfatterne erklærer ingen interessekonflikt.

Referanser
1. Willett, WC Kosthold og helse: Hva bør vi spise? Science 1994, 264, 532–537. [CrossRef]
2. Cherniack, EP Den potensielle påvirkningen av plantepolyfenoler på aldringsprosessen. Forsch Komplementmed 2010, 17, 181–187. [CrossRef]
3. Barha, CK; Hsu, CL; Ten Brinke, L.; Liu-Ambrose, T. Biologisk sex: en potensiell moderator av fysisk aktivitetseffekt på hjernehelse. Front. Aldrende Neurosci. 2019, 11, 329. [CrossRef]
4. Gladyshev, VN The Free Radical Theory of Aging Is Dead. Lenge leve skadeteorien! Antioksid. Redoks-skilt. 2014, 20, 727–731. [CrossRef] [PubMed]
5. Frisard, M.; Ravussin, E. Energimetabolisme og oksidativt stress: Innvirkning på det metabolske syndromet og aldringsprosessen. Endocrine 2006, 29, 27–32. [CrossRef]
6. Bertram, C.; Hass, R. Cellulære responser på reaktive oksygenarter-indusert DNA-skade og aldring. Biol. Chem. 2008, 389, 211–220. [CrossRef] [PubMed]
7. McHugh, D.; Gil, J. Alderdom og aldring: årsaker, konsekvenser og terapeutiske veier. J. Cell Biol. 2018, 217, 65–77. [CrossRef] [PubMed]
8. Rolt, A.; Cox, LS Strukturelt grunnlag for antialdringseffektene til polyfenoler: Redusering av oksidativt stress. BMC Chem. 2020, 14, 50. [CrossRef] [PubMed]
9. Liguori, I.; Russo, G.; Curcio, F.; Bulli, G.; Aran, L.; Della-Morte, D.; Gargiulo, G.; Testa, G.; Cacciatore, F.; Bonaduce, D.; et al. Oksidativt stress, aldring og sykdommer. Clin. Interv. Aldring 2018, 13, 757–772. [CrossRef]
10. Majidinia, M.; Karimian, A.; Alemi, F.; Yousefi, B.; Safa, A. Målretting av miRNA ved polyfenoler: Novel terapeutisk strategi for aldring. Biochem. Pharmacol. 2020, 173, 113688. [CrossRef] [PubMed]
11. Scalbert, A.; Johnson, IT; Saltmarsh, M. Polyfenoler: Antioksidanter og mer. Er. J. Clin. Nutr. 2005, 81, 215S–217S. [CrossRef]
12. Sandoval, V.; Sanz-Lamora, H.; Arias, G.; Marrero, PF; Haro, D.; Relat, J. Metabolic Impact of Flavonoids Consumption in Obesity: Fra sentralt til perifert. Næringsstoffer 2020, 12, 2393. [CrossRef]
13. Ebrahimpour, S.; Zakeri, M.; Esmaeili, A. Crosstalk mellom fedme, diabetes og Alzheimers sykdom: Introduserer quercetin som en effektiv trippel urtemedisin. Aldring Res. Rev. 2020, 62, 101095. [CrossRef]
14. Singh, A.; Yau, YF; Leung, KS; El-Nezami, H.; Lee, JC Interaksjon av polyfenoler som antioksidanter og antiinflammatoriske forbindelser i hjerne-lever-tarm-aksen. Antioksidanter 2020, 9, 669. [CrossRef] [PubMed]
15. Si, H.; Liu, D. Dietary antiaging fytokjemikalier og mekanismer assosiert med forlenget overlevelse. J. Nutr. Biochem. 2014, 25, 581–591. [CrossRef]
16. Baur, JA; Pearson, KJ; Pris, NL; Jamieson, HA; Lerin, C.; Kalra, A.; Prabhu, VV; Allard, JS; Lopez-Lluch, G.; Lewis, K.; et al. Resveratrol forbedrer helsen og overlevelsen til mus på en kaloririk diett. Nature 2006, 444, 337–342. [CrossRef]
17. Pearson, KJ; Baur, JA; Lewis, KN; Peshkin, L.; Pris, NL; Labinskyy, N.; Swindell, WR; Kamara, D.; Mindre, RK; Perez, E.; et al. Resveratrol forsinker aldersrelatert forverring og etterligner transkripsjonelle aspekter ved kostholdsbegrensninger uten å forlenge levetiden. Cell Metab. 2008, 8, 157–168. [CrossRef] [PubMed]
18. Miller, RA; Harrison, DE; Astle, CM; Baur, JA; Boyd, AR; de Cabo, R.; Fernandez, E.; Flurkey, K.; Javors, MA; Nelson, JF; et al. Rapamycin, men ikke Resveratrol eller Simvastatin, forlenger levetiden til genetisk heterogene mus. J. Gerontol. Ser. En Biol. Sci. Med Sci. 2011, 66, 191–201. [CrossRef] [PubMed]
19. Strong, R.; Miller, RA; Astle, CM; Baur, JA; de Cabo, R.; Fernandez, E.; Guo, W.; Javors, M.; Kirkland, JL; Nelson, JF; et al. Evaluering av resveratrol, grønn teekstrakt, curcumin, oksaloeddiksyre og triglyseridolje med middels kjede på levetiden til genetisk heterogene mus. J. Gerontol. Ser. 2012, 68, 6–16. [CrossRef]
20. Reutzel, M.; Grewal, R.; Silaidos, C.; Zotzel, J.; Marx, S.; Tretzel, J.; Eckert, GP Effekter av langvarig behandling med en blanding av høyt rensede oliven secoiridoider på kognisjon og hjerne-ATP-nivåer i gamle NMRI-mus. Oksidativ Med. Celle. Longev. 2018, 2018. [CrossRef] [PubMed]
21. Si, H.; Fu, Z.; Babu, PV; Zhen, W.; Leroith, T.; Meaney, MP; Voelker, KA; Jia, Z.; Grange, RW; Liu, D. Epicatechin i kosthold fremmer overlevelse av overvektige diabetiske mus og Drosophila melanogaster. J. Nutr. 2011, 141, 1095–1100. [CrossRef]
22. Si, H.; Wang, X.; Zhang, L.; Parnell, LD; Admed, B.; LeRoith, T.; Ansah, TA; Zhang, L.; Li, J.; Ordovas, JM; et al. Epicatechin i kosten forbedrer overlevelse og forsinker skjelettmuskeldegenerasjon hos gamle mus. FASEB J. 2019, 33, 965–977. [CrossRef]
23. Donovan, JL; Manach, C.; Rios, L.; Morand, C.; Scalbert, A.; Rémésy, C. Procyanidiner er ikke biotilgjengelige hos rotter som har fått et enkelt måltid som inneholder et druefrøekstrakt eller procyanidindimer B3. Br. J. Nutr. 2002, 87, 299–306. [CrossRef] [PubMed]
24. Koga, T.; Moro, K.; Nakamori, K.; Yamakoshi, J.; Hosoyama, H.; Kataoka, S.; Ariga, T. Økning av det antioksidative potensialet til rotteplasma ved oral administrering av et proantocyanidinrikt ekstrakt fra druefrø. J. Agric. Food Chem. 1999, 47, 1892–1897. [CrossRef]
25. Rios, LY; Bennett, RN; Lazarus, SA; Remesy, C.; Scalbert, A.; Williamson, G. Kakao-procyanidiner er stabile under gastrisk transitt hos mennesker. Er. J. Clin. Nutr. 2002, 76, 1106–1110. [CrossRef] [PubMed]
26. Bhagwat, S.; Haytowitz, DB; Holden, JM USDA-database for flavonoidinnholdet i utvalgte matvarer, utgivelse 3.1.; Agricultural Research Service, US Department of Agriculture, red.; Agricultural Research Service, US Department of Agriculture: Beltsville, MD, USA, 2014.
【For mer informasjon:george.deng@wecistanche.com / WhatApp:8613632399501】