

Kaempferol lindrer LD-mitokondriell skade ved å fremme autofagi: implikasjoner i Parkinsons sykdom del 1
Mar 23, 2022
Vær så snill og kontaktoscar.xiao@wecistanche.comfor mer informasjon
Abstrakt:Nye bevis indikerer at uventet avsetning av lipiddråper (LD) og peroksidasjon kan akselerere organell stress og spiller en avgjørende rolle i patogenesen av nevrodegenerative sykdommer (NDDs). I vår forrige studie bekreftet vi at kaempferol (Ka), et naturlig flavonoid lite molekyl, viste nevrobeskyttende effekter på mus med LPS-indusert Parkinsons sykdom (PD). I tillegg har tidligere studier vist at autofagi spiller en viktig rolle i reguleringen av cellulær LD-avsetning. I den nåværende studien viste vi at Ka beskyttet mot nevronalt tap og atferdsmangel hos MPTP/p-induserte PD-mus, ledsaget av redusert lipidoksidativt stress i substantia nigra pars compacta (SNpc). I dyrkede nevronceller viste Ka et relativt trygt konsentrasjonsområde og undertrykte signifikant LD-akkumulering og cellulær apoptose indusert av MPP pluss. Ytterligere studier indikerte at den beskyttende effekten av Ka var avhengig av autofagi, spesielt lipofagi. Kritisk sett fremmet Ka autofagi for å mediere LD-nedbrytning i lysosomer, som deretter lindret lipidavsetning og peroksidasjon og den resulterende mitokondrielle skaden, som følgelig reduserte nevronal død. Videre opphevet AAV-shAtg5-mediert Atg5 knockdown de nevrobeskyttende effektene av Ka mot lipidoksidasjon i PD-mus. Dette arbeidet viser at Ka forhindrer dopaminerg nevronal degenerasjon i PD via hemming av lipidperoksidasjonsmediert mitokondriell skade ved å fremme leppeofagi og gir en potensiell ny terapeutisk strategi for PD og relaterte NDDer.

1. Introduksjon
Parkinsons sykdom (PD) er en vanlig nevrodegenerativ sykdom (NDD) som er patologisk karakterisert ved progressivt tap av dopaminerge (DA) nevroner i substantia nigra pars compacta (SNpc). Selv om den nøyaktige etiologien og det naturlige forløpet til denne sykdommen ennå ikke er fullstendig avklart,en rekkeprosesser og dysfunksjoner på systemnivå, inkludert mitokondriefunksjoner, dopaminhomeostase, nevroinflammasjon og autofagi, har vært implisert i patogenesen av PD [1,2]. Nylige rapporter viste at lipiddråper (LD)-relatertelipotoksisitetkan delta i PD-patologi [3,4]. LD-er er svært dynamiske organeller som kommer ut fra den endoplasmatiske retikulum (ER)-membranen og fungerer normalt som intracellulære steder for nøytral lipidlagring [5]. LD-er har nylig vist seg å spille en mye bredere rolle enn lagring av fettsyrer (FA) og deltar i mange sykdommer. Myeloidceller, inkludert makrofager, leukocytter og eosinofiler, danner for eksempel LD-er som respons på betennelse og stress, og LD-er er steder for inflammatorisk cytokinproduksjon og -lagring og er videre involvert i antigenpresentasjon og patogenclearance [6]. Viktigere, ved aterosklerose har LD-rike skumceller blitt vist å være skadelige i alle stadier av sykdommen [7].

Cistanche kan forbedre immuniteten
Imidlertid har LD-er ikke blitt grundig studert i sentralnervesystemet (CNS), med få artikler som rapporterer histologisk tilstedeværelse av LD-er i menneskelig hjernevev [8,9]. Likevel kan LD-er ha viktige funksjoner i hjernen, ettersom nyere studier bekreftet at aggregerte LD-er i glia akselererte nevrodegenerasjon i en Drosophila-modell [10]. Det har nylig blitt rapportert at i mus, oljerøde O-positive lipidladede celler, inkludert nevroner, gliafibrillært surt protein (GFAP) pluss astrocytter, og ionisert kalsiumbindende adaptermolekyl-1 (IBA{{7} }) pluss mikroglia, er tilstede i mange hjerneregioner og har vist seg å delta i aldersassosierte prosesser [1]. Vårt tidligere arbeid viste også økt LD-akkumulering i hjernen i en PD-musemodell [12]. Til sammen antyder disse studiene at LD-er kan være involvert i patogenesen av PD, så vel som andre NDD-er.
Normalt brytes intracellulære LD-er ned ilysosomerog levere FAer til mitokondrier for deres forbruk som en alternativ energikilde i perioder med utarming av næringsstoffer [13]. Nevroner har imidlertid lav kapasitet for mitokondriell FA-forbruk for energiproduksjon [14]. Denne egenskapen gjør nevroner spesielt følsomme for LD-akkumulering og peroksidasjon. Videre øker akkumuleringen av LD-er FA-oksidasjonshastigheten og påfører et vedvarende trykk på den mitokondrielle elektrontransportkjeden, noe som øker produksjonen av reaktive oksygenarter (ROS) av elektrontransportkjedekompleksene I og II [15] for å forsterke oksidativt stress. Lipidoverbelastning fører også til ROS-produksjon av ekstramitokondrielle kilder som nikotinamidadenindinukleotidfosfat (NADPH)oksidaser og andre oksidativeenzymer. Kombinert med det reduserte uttrykket av antioksidantenzymer og den lave kapasiteten for FA-forbruk i nevroner, medierer LD-akkumulering oksidativt stress og kan videre føre til mitokondriell skade,lysosomal dysfunksjon, defekt autofagi og aktivering av inflammatoriske responser [6,17]. Med mindre de akkumulerte LD-ene kan hemmes eller fjernes, gjennomgår svært aktive nevroner patofysiologi, noe som gir opphav til nevrodegenerasjon [17]. Bevis indikerer at den lysosommedierte katabolske prosessen kalt autofagi spiller en sentral rolle i å opprettholde cellulær LD-homeostase i flere vev [17,18]. I detalj kan LD-er selektivt sekvestreres i autofagosomer og leveres til lysosomer for nedbrytning av lysosomale sure lipaser, en prosess spesielt kjent som lipofagi [19]. Derfor kan målretting av LD-er og deres autofagiske fjerningsvei representere en ny tilnærming til å håndtere nevrodegenerasjon.
Studiet av naturlige produkter og kostholdsmidler som kilder for potensielle NDD-behandlinger og strategier har fått enorm interesse de siste årene [20]. Kaempferol (Ka) er et naturlig polyfenolisk lite molekyl som finnes i en rekke kinesiske medisinske urter og kostholdskilder [21]. Ka har blitt rapportert å utøve antibakterielle, antialdrings- og immunmodulerende effekter, så vel som antioksidant- og nevrobeskyttende aktiviteter [20,22,23]. Tidligere ble Ka rapportert å hemme betennelse i BV2 mikroglialceller in vitro [24] og øke motstanden til DA-nevroner mot nevroinflammasjon in vivo [25]. Effekten av Kaon LDs i PD er imidlertid ennå ikke undersøkt.
Gitt viktigheten av LD-er og den intime forbindelsen mellom LD-er, mitokondrier og autofagi [16], som alle er involvert i PD, antar vi at Ka hemmer LD-peroksidasjon og forhindrer DA-nevrodegenerasjon i PD. I denne studien demonstrerte vi at Ka betydelig beskyttet mot nevrodegenerasjon i en murin PD-modell ved å hemme LD-akkumulering. Ytterligere studier avslørte at Ka utløste autofagi og reduserte akkumuleringen av oksiderte LD-er for å lindre mitokondriell dysfunksjon og mitokondriell ROS (mtROS) produksjon, og dermed forhindre nevronal apoptotisk død. Funnene oppnådd i denne studien kan hjelpe direkte kliniske beslutninger angående bruken av det naturlige molekylet Ka i NDD-er som PD.
2. Materialer og metoder
2.1. Forsøksdyr
C57BL/6J mus (hann, 4-måned gamle) ble hentet fra Nanjing Medical University Animal Core (Nanjing). Mus ble vedlikeholdt og avlet i dyreressurssenteret ved Det medisinske fakultet, Nanjing Medical University, og i dyreanlegget ved Nanjing Drum Tower Hospital, har mus fritt tilgang til mat og vann i et rom med en omgivelsestemperatur på 22 grader ± 2 grader C og en lys/mørke syklus på 12:12 t. Alle dyreprosedyrer ble utført i strengt samsvar med retningslinjene til National Institutes of Health Guide for Care and Use of Laboratory Animals.
2.2. Reagenser
MPTP(M0896),3-MA (M9281),penicillin-streptomycin (V900929), sodium pentobarbital, and probenecid were purchased from Sigma-Aldrich (St. Louis, MO, USA). Kaempferol (HPLC> 95%)for in vivo treatment was purchased from Nanjing Jingzhu Biotechnology Co., Ltd (Nanjing, China), kaempferol (HPLC>99.0 prosent, 96.353) for in vitro-eksperimenter ble oppnådd fra Sigma-Aldrich (St. Louis, MO, USA). BODIPY 493/503(D3922), BODIPY 581/591 C11 (D3861), DHE (D11347) ble kjøpt fra Thermo Fisher Scientific. For dyreforsøk ble Ka oppløst i en løsning av 10 prosent DMSO i 16 prosent SBE- -CD i sterilt saltvann. For celleeksperimenter ble Ka fremstilt i DMSO (Sigma-Aldrich) og PBS (endelig DMSO-konsentrasjon er 0,01 prosent), pH 7,4.
2.3. Induksjon og behandling av metyl-4-fenyl-1,2,3,6-tetrahydropyridin (MPTP)-indusert PD-musemodell
For å evaluere effekten av Ka i PD-modellen for MPTP/p-toksisitet, ble mus (hann, i alderen 4-5 måneder gamle) tilfeldig delt inn i den saltvannsbehandlede gruppen, MPTP-behandlet gruppe, MPTP pluss Ka-behandlet gruppe, og Ka alene behandlet gruppe. I den MPTP-behandlede gruppen fikk mus kronisk MPTP-administrering med en protokoll som ligner den som er beskrevet tidligere [26]: MPTP ble oppløst i saltvann og injisert subkutant med 25 mg/kg etterfulgt av 250 mg/kg probenecid (oppløst i dimetylsulfoksid) intraperitoneal (ip) injeksjon med intervaller på 1 time hver 3,5 dag over en periode på 5 uker. Kontrollmus fikk saltvann og probenecid-injeksjon. I den MPTP pluss Ka-behandlede gruppen fikk mus Ka (50 mg/kg, en enkelt injeksjon/dag under eksperimenter, Jingzhu Biotechnology, Nanjing, Kina) intraperitonealt (ip) daglig 3 dager før behandling med MPTP og over 5 MPTP injeksjonsuker. En uke etter den siste MPTP-injeksjonen ble mus utsatt for atferdstesting blindet for grupper. Deretter ble alle mus bedøvet med 40 mg/kg natriumpentobarbital og ofret for påvisning av hjerneproteiner og immunhistokjemi eller qPCR-analyse.
2.4. In vivo stereotaksisk kirurgi og eksperimentelle behandlinger
Stereotaksisk kirurgi under natriumpentobarbital anestesi (40 mg/kg, ip) ble utført som beskrevet [25]. Muse-Atg5 og kontroll-shRNA ble transfektert med pakkevektorer (AAV-U6-CMV-shR-NA-EGFP) for å generere AAV. For mikroinjeksjon plasseres bedøvede mus i et stereotaksisk apparat. De ble injisert med 1μL AAV med glasselektrode rettet mot DG(AP:-0.3 mm; ML:±0.13 mm; DV:-0.45 mm) ved en hastighet på 0,25 μL/min. Deretter ble nålen beholdt i ytterligere 2-min. 2 uker etter virusmikroinjeksjon, ble mus utsatt for MPTP-indusert PD-modellledning og (eller)Ka-behandling.
Atg5 shRNA ble hentet fra Hanbio Biotechnology (Shanghai, Kina) Co., Ltd. For Atg5-stillheten ble primerne vist i tilleggstabell 1.

2.5. Atferdsanalyse
En uke etter den siste injeksjonen av MPTP eller saltvann, ble rotarod-testen og poltesten utført som beskrevet tidligere [27]. For rotarod-testen ble mus akklimatisert til rotarod i to forsøk (6 minutter med en akselerert hastighet på 12-20 rpm) per dag i 2 påfølgende dager før starten av eksperimentet. Deretter ble musene testet ved 20 rpm i 300 s i andre 3 påfølgende dager. Latensen til å falle ble registrert ved hjelp av Rotarod Analysis System (Jiliang, Shanghai, Kina). For stangtesten ble mus plassert med hodet opp på toppen av en vertikal trestang (ru overflate, høyde 50 cm, diameter 1 cm). Alle mus ble vant til apparatet 2 dager før testing og deretter testet tre ganger på den tredje dagen. Den totale tiden (T-total, til musen nådde gulvet med sine fire poter) og svingtiden (T-sving, for musen å snu hodet nedover) ble registrert. Eksperimentet ble blindet for musegrupper for hver atferdstesting og testen ble utført tre ganger.
2.6. Samling av hjerneprøver
Etter de siste atferdstestene ble mus bedøvet med natriumpentobarbital (40 mg/kg, ip). For qPCR, western blotting og høyytelses væskekromatografi (HPLC) analyse ble hele hjernen raskt ekstrahert fra dyr, deretter ble midthjernen og striatumvevet raskt dissekert, forhåndsfryst med flytende nitrogen. Alle prøver ble lagret ved -80 grad frem til analyse.
For immunhistokjemisk analyse ble mus perfusert trans-kardialt med 4 prosent paraformaldehyd (PFA). Hjerner ble ekstrahert, postfiksert, dehydrert, innebygd i OCT (Tissue-Tek), og serielle deler av hjernen ble kryoseksjonert (30 μm per skive) gjennom hvert hele stratum og midthjernen ved bruk av en frysemikrotom (Leica CM1950, Nussloch, Tyskland ). Alle seksjoner ble samlet i seks separate serier og hjerneskiver ble lagret i 50 prosent glyserin og frosset ved -20-grad frem til analyse.
For TEM ble mus perfusert med 2,5 prosent glutaraldehyd og 2 prosent paraformaldehyd som beskrevet 【12】. En liten porsjon (<1 mm²)="" of="" the="" mesencephalon="" was="" carefully="" sectioned="" and="" incubated="" in="" the="" same="" fixative="" for="" 2="" h="" at="" 4°c.="" specimens="" were="" postfixed="" in="" 1%="" osmium="" tetroxide,="" stained="" in="" aqueous="" uranyl="" acetate,="" and="" then="" dehydrated="" and="" embedded="" in="" epoxy="" resin.="" ultrathin="" sections="" were="" stained="" using="" lead="" citrate="" and="" examined="" with="" a="" transmission="" electron="" microscope(jem-1010,="" tokyo,="">
2.6. Immunhistokjemisk analyse
Hjerneskiver ble skylt i PBS etterfulgt av 3 prosent H2O i 10 min og deretter inkubert med 0.3 prosent Triton X-100 i PBS supplert med 5 prosent BSA i 1 time. Deretter ble objektglass inkubert med de primære antistoffene ved 4 grader over natten i PBS inneholdende 5 prosent BSA ved 4 grader over natten, deretter vasket og inkubert i sekundære antistoffer i 1 time ved romtemperatur, etterfulgt av inkubering med diaminobenzidin (DAB) eller montering i DAPI (Life Technologies, Cat P36931) som immunfluorescerende farging i 5 min. For Nissl-farging ble objektglassene slått sammen i kresylfiolett(CV)-løsning (0,1 g kresylfiolett, 99 ml H,O og 1 prosent eddiksyre 1 ml) i 30 minutter ved romtemperatur og deretter dehydrert med alkohol og xylen. Bilder ble observert og fotografier ble tatt under et Olympus BX52-mikroskop (Olympus America Inc., Melville, NY, USA). Det totale antallet TH-positive og Nissl-positive nevroner i SNpc ble oppnådd serologisk ved å bruke den optiske fraksjoneringsmetoden med MicroBrightField Stereo-Investigator-programvare (MicroBrightField, Williston, VT, USA).
2.7. Høyytelses væskekromatografi (HPLC) analyse
Striatale prøver av mus ble homogenisert med {{0}},1 M perklorsyre (1 mg vev i 100 μL perklorsyre) og 0,1 mM EDTA, behandlet med ultralyd og sentrifugert ved 20,000 rpm i 30 minutter som rapportert [27]. Deretter ble supernatantvæsker samlet for måling. Den mobile fasen er en blandet løsning bestående av 90 mM monobasisk natriumfosfat, 1,7 mM 1-oktansulfonsyre, 50 mM citrat, 50 μM EDTA, 10 prosent acetonitril med en strømningshastighet på 0,2 ml/min. Parallelt, for kvantitativ standardkurveberegning, ble stamstandardløsning for dopamin og dihydroksy-fenyleddiksyre (DOPAC) (Sigma-Aldrich, USA) fremstilt i 0,1 M HClO4. En mengde på 10 ul av tilberedt supernatant eller standardløsning ble injisert. inn i mobilfasen og testet av ESA Coulochem ⅢI elektrokjemisk detektor (Coulochem III, Thermo Fisher Scientific). Prøver ble målt og topper ble kvantifisert. Konsentrasjonene av monoaminer ble kvantifisert ved å sammenligne med standarden ved bruk av programvaren ClarityChrom (Knauer, Tyskland) og deretter innholdet i stratum ble konvertert i henhold til fortynningsforholdet Standardkurven for DA og DOPAC ble vist i tilleggsfigur 1a og b.
2.8. Cellekulturer og behandlinger
Mesencefaliske primære nevronkulturer ble utført som beskrevet tidligere [12]. Kort fortalt ble det mesencefaliske vevet til C57BL/6-mus på embryonal dag 14/15 (E14/15) forsiktig fjernet, mekanisk dissosiert for å fjerne membranene og store blodkar, og deretter dissekert. Deretter ble de fordøyd med trypsin-EDTA (Amresco, Solon, OH, USA) og deretter filtrert gjennom et 100-μm-filter for å oppnå en enkeltcellesuspensjon. Deretter ble cellene utsådd på poly-L-lysin -forbelagte 12-/24-brønnplater med 2,5×10 graders celler/ml som inneholder nevrobasalt medium (Cat 21103049, GibcoTM, Thermo Fisher Scientific, Rockford, USA) supplert med B27 (2 prosent v:v, Cat 17504044,GibcoTM) og penicillin/streptomycin (0,5 prosent v:v). Kulturene ble holdt i et fuktet kammer (37 grader, 5 prosent CO2-inkubator). Kulturmediet ble skiftet hver 3. dag og celler kan brukes etter 7-10 dager.
Cellelinjer: SH-SY5Y-cellelinjer ble dyrket i 10 prosent FBS og 1 prosent penicillin/streptomycin i en fuktet inkubator ved 37 grader og 5 prosent CO2. I eksperimentene ble SH-SY5Y-celler behandlet med MPP(200 μM) eller forskjellige doser av Ka(0,3,30,60,100,300,600 μM) i 24 timer. Ka (3,10,30,60μM,3 timer)primede-SH-SY5Y-celler ble stimulert med MPp pluss (400 μM) i 24 timer. Ka (30 μM,3 t) med (eller uten) 3-MA (3 mM, 1 h) eller -tokoferol (50 μM, 1 t, Sigma-Aldrich, 47783) primede-SH-SH5Y-celler ble stimulert med MPP pluss (200 μM) i 24 timer.
2.9. Cellelevedyktighet CCK8-analyse
Den endrede cellelevedyktigheten til Ka-behandling ble oppdaget av Cell Counting Kit-8(CCK-8 Kit, Selleck, Houston, TX, USA). Kort fortalt ble SHSY5Y-celler sådd i en 96- brønnplate og deretter behandlet med forskjellige konsentrasjoner av Ka(3,30,60,100,300,600 μM)i 24 timer. Deretter ble 10ulof CCK-8-reagens tilsatt til hver brønn i 4 timer. Til slutt ble absorbansen detektert av Multiskan Spectrum (Thermo Fisher Scientific) ved 450 nm.
2.10.ATP-analyse
De cellulære ATP-nivåene ble oppdaget av et ATP Bioluminescence Assay Kit (Beyotime Biotechnology Co., Kina〕i henhold til produsentens instruksjoner. Etter behandling ble cellene lysert og sentrifugert ved 12,000 rpm i 5 minutter ved 4 grader og supernatantene ble samlet. Arbeidsløsning (100μL) ble tilsatt 20μL prøve i 96-brønnplaten, og luminescensen ble målt umiddelbart på en automatisk mikroplateleser. Målinger fra alle prøvene ble normalisert til proteinkonsentrasjon.
2.11. Na pluss -K -ATPase-analyse
For Na pluss -K pluss -ATPase-måling (A070-2-2, Jiancheng, Nanjing, Kina), ble cellene sonikert og sentrifugert ved 6000 rpm i 10 minutter for å oppnå supernatant. Reaksjonsløsninger av Na pluss -K pluss -ATPase-deteksjon ble tilsatt og inkubert i henhold til produsentens instruksjoner. Deretter ble absorbansen ved 660 nm detektert. Målinger av alle prøvene ble normalisert til proteinkonsentrasjon.
2.12. Western blotting-analyse
Celler eller hjernevev ble lysert i RIPA-bufferen (50 mM Tris(pH 7,4),150 mM NaCl,1 prosent NP-40(FNNO021,Thermo),0,5 prosent natrium deoksycholat (D6750, Sigma), 0,1 prosent SDS (74255, Sigma) supplert med protease- og fosfatasehemmere (Roche, Shanghai, Kina). Proteinkonsentrasjoner ble bestemt med Micro BCA-settet (Beyotime, Shanghai, Kina). A {{13 }}ug protein fra hver prøve ble separert ved SDS-PAGE ved bruk av polyakrylamid TGX-geler (Bio-Rad, Hercules, California, USA) og deretter overført til polyvinylidendifluorid (PVDF)-membraner (Millipore, Bedford, MA). Etter blokkering, PVDF membraner ble inkubert med forskjellige spesifikke primære antistoffer i TBST ved 4 grader over natten og deretter vasket og inkubert i tilsvarende pepperrotperoksidase(HRP) konjugerte sekundære antistoffer i 1 time ved romtemperatur. Immunoreaktive bånd ble visualisert og detektert ved forsterket kjemiluminescens (ECL) pluss deteksjonsreagens (Pierce, Thermo Fisher Scientific, Rockford, IL) og analysert ved bruk av ImageQuantM LAS 4000 bildebehandlingssystem (GE Healthcare, Pittsburgh, PA, USA).
2.13. Sanntids kvantitativ (Q)- og revers transkripsjon (RT)-PCR
Totalt RNA ble ekstrahert fra hjernevev og dyrkede celler ved bruk av Trizol-reagens (Invitrogen, Carlsbad, CA, USA). Revers transkripsjon ble utført ved å bruke TAKARA PrimeScript RT-reagenssettet (TaKaRa, Japan). Realtime qPCR ble utført ved bruk av SYBR Green Master Mix (Applied Biosystems) i et StepOnePlus-instrument (Applied Bio-systems). Primerne ble kjøpt og validert av generalen (Shanghai, Kina). Primerne brukt for qPCR ble vist i tilleggstabell 2.
2.14. Laktatdehydrogenase (LDH) analyse
I henhold til produsentens instruksjoner ble celler belagt i en 96-brønnplate med 5000 celler/brønn, og et kulturmedium ble samlet for å måle LDH-nivåer med et analysesett (Nanjing Jiancheng Bioengineering Institute). Deretter ble absorbansen til prøvene detektert av Multiskan Spectrum (Thermo Fisher Scientific) ved 450 nm.
2.15.BODIPY493/503, BODIPY 581/591 C11, og MitoTracker dyp rød farging
Levende celler ble vasket med PBS og inkubert med 2 ug/ml BOD-IPY 493/503(InvitrogenTM, Cat D3922) eller BODIPY 581/591 C11 (BD-Cl1)(2.0 μM , InvitrogenTM, Cat D3861)i PBS i 15 minutter ved 37 grader For MitoTracker Deep Red-farging ble levende celler inkubert med 0,5 ug/ml MitoTracker Deep Red (InvitrogenTM, Cat M22426) i PBS i 30 minutter ved 37 grader. ble vasket to ganger i PBS og fiksert i 3,5 prosent PFA i 10 minutter etterfulgt av vasking og motfarging med Hoechst 33342 (Sigma, Cat B2261) i 10 minutter før de ble dekket på glassbilder for avbildning. Bilder ble observert og fotografier ble tatt med fluorescensmikroskopi (Olympus, Tokyo, Japan).
2.16. Hoechst og PI-farging
Celler ble farget med Hoechst 33,342 (1 ul fortynnet i 500 ul PBS, Sigma, Cat B2261) og (eller) PI (0,1 ul fortynnet i 500 ul PBS, Solarbio, CA1020) og deretter fiksert 10 min. og observert ved fluorescensmikroskopi (Olympus, Tokyo, Japan).
2.17. Flowcytometri
Celler ble fordøyd og skylt med D-hanks og deretter farget med Annexin V-FITC(5 ul fortynnet i 500 ul PBS)/PI(0,1 ul fortynnet i 500 ul PBS) apoptosesett (CA1020, Solarbio, Beijing, Chian) i henhold til produsentens protokoll. Deretter ble apoptotiske celler analysert ved bruk av flowcytometri (guava easyCyteTM 8, Millipore, USA). Mitokondriell ROS og mitokondriell membranpotensialmålinger ble utført som publisert 【12】. SH-SY5Y-celler ble farget med MitoSOX (2,5 μM, Invitrogen, USA) eller med Jul (10 ug/ml, T-3168, Invitrogen, USA) ved 37 grader i 30 minutter. Etter vask med PBS to ganger, ble cellene deretter resuspendert i kald PBS inneholdende 1 prosent FBS for flowcytometriske analyser. Data ble analysert med FCS Express-programvaren (Guava Easy CyteTM8, Millipore, Hayward, CA, USA).
2.18. Sjøhest respirasjonsanalyser
Mitokondriell respirasjonsfunksjon i levende SH-SY5Y-celler ble målt ved bruk av Seahorse ekstracellulær fluks (XFe96)-analysator (Agi-lent, Santa Clara, USA) via endringer i oksygenforbrukshastigheten (OCR). SH-SY5Y-celler sådd ved 3 × 10³ celler/brønn fikk feste seg til Seahorse-cellekulturplatene og nå ca. 80 prosent konfluens på tidspunktet for eksperimentet. Dagen etter ble cellene forbehandlet med Ka og deretter eksponert for MPp pluss i ytterligere 24 timer. OCR ble påvist under basale forhold etterfulgt av sekvensiell tilsetning av 1 μM oligomycin, 1 μM FCCP, samt 1 μM rotenon og antimycin A.
2.19. Statistisk analyse
Data ble presentert som gjennomsnitt ± SEM. Signifikansen av forskjell ble bestemt av Studentens t-test, Toveis variansanalyse eller enveis variansanalyse (ANOVA) etterfulgt av Tukeys post hoc-test. Forskjellen ble ansett som signifikant ved P<>
3. Resultater
Resultat 1. Ka gjenoppretter motorisk dysfunksjon og øker dopaminnivåer i striatum til MPTP/p PD modellmus
For å undersøke den nevrobeskyttende effekten av Kaon PD-patogenesen, ble 4-måned gamle C57BL/6-hannmus injisert med nevrotoksinet MPTP for å etablere MPTP/p PD-modellen og ble behandlet med Ka (fig. la). Etter modellinduksjon ble rotarod-testen og poltesten brukt til å evaluere den motoriske og atferdsmessige ytelsen til mus i de forskjellige gruppene. Som vist ble ytelsestiden for rotarod markert redusert i MPTP-behandlede mus, og denne effekten ble forhindret av Ka (fig. 1b). Ka gjenopprettet også atferdssviktene indusert av MPTP, som indikert av reduksjonene i snutiden og totaltiden i poltesten (fig. lc og d), uten å påvirke kroppsvektene til musene (fig. le). Videre viste HPLC-analyse at nivået av dopamin i striatum ble betydelig redusert hos MPTP/p-utfordrede mus, og dette nivået ble gjenopprettet ved Ka-behandling (fig. 1f. Ka-behandling lindret også MPTP/p-indusert reduksjon i dihydroksy -fenyleddiksyre (DOPAC, en metabolitt av dopamin) nivåer i striatum(fig.1g) Disse resultatene tyder på at Ka gjenoppretter motorisk dysfunksjon og øker dopaminnivåer i striatum hos MPTP-induserte PD-mus.

Resultat 2. Ka lindrer tapet av DA-neuroner i SNpc-en til MPTP/p PD-modellmus
Deretter, for ytterligere å evaluere den nevrobeskyttende effekten av Kaon MPTP/p-indusert DA-neuronal svekkelse, undersøkte vi tyrosinhydroksylase (THD pluss nevroner i murine SNpc ved immunfarging. Som vist i fig.2a og b, induserte MPTP/p en betydelig reduksjon i antall TH pluss nevroner, som ble lindret av Ka-behandlingen. Videre stereologiske tellinger av totale nevroner i SNpc, som definert av Nissl
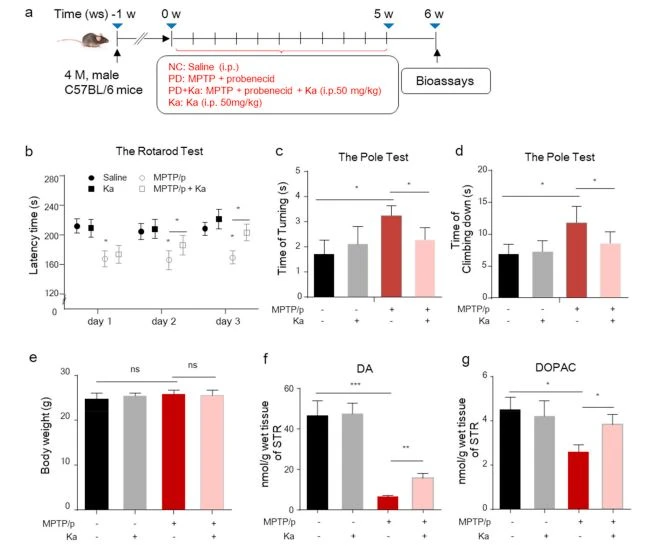
Figur 1. Ka-behandling lindrer motorisk dysfunksjon og øker dopaminnivået i striatumet til MPTP/p PD-modellmus.
(a) Skjematisk diagram av det eksperimentelle designet. (b) Tiden på stangen ble målt for rotarod-testen på tre påfølgende dager. (cd) Tiden det tar å snu (tid for vending) og ned en stang (tid for klatring) ble registrert for stavtesten. (e) Musekroppsvekter ble målt ved slutten av studien. (fg) Dopamin (DA) og dihydroksy-fenyleddiksyre (DOPAC) i striatum ble analysert ved høyytelses væskekromatografi. Dataene uttrykkes som gjennomsnitt ± SEM.n =9-10 for hver gruppe i (b,c,d); n =6-8 for hver gruppe i (f, g).ns, ikke signifikant, *P<><><0.001,by one-way="" anova="" followed="" by="" tukey's="" post="" hoc="" test.="" mptp,="" 1-methyl-4-phenyl-1,2,3,6-tetrahydropyridine;="" ka,="">
farging, bekreftet at tapet av TH-celler reflekterte cellulær død, men ikke nedreguleringen av TH-ekspresjon og viste at Ka-behandling gjenopprettet reduksjonen i antall Nissl-positive nevroner i SNpc av MPTP-behandlede mus fra 43,3 prosent til 25,4 prosent ( Fig. 2c og d). I tillegg forbedret Ka signifikant den MPTP-induserte reduksjonen i TH- og DAT-proteinekspresjon, målt ved Western blotting (Fig. 2e-g). Dette beviset bekrefter den nevrobeskyttende effekten av Ka på PD-musemodellen.
Resultat 3. Ka reduserer akkumulering av LD-vakuoler og oksidativt stress i SNpc av MPTP/p-behandlede mus
Økende bevis har vist involvering av LD-er i NDD-er [10], konsekvent identifiserte vårt tidligere arbeid økte LD-er i SNpc av MPTP-induserte PD-mus [12]. LD-er kan lett identifiseres og viser runde strukturer med lav tetthet med homogent amorft innhold [28]. Normalt kan LD-er degraderes via autofagi for å unngå akkumulering [29]. For å undersøke om Ka kunne regulere LD-er i PD, ble akkumuleringen av LD-er analysert ved transmisjonselektronmikroskopi (TEM) i SNpc for kontroll, MPTP/p og MPTP/p pluss Ka-mus. Som vist i vårt tidligere arbeid [12], ble antallet og størrelsen på LD-er økt i MPTP/p-mus sammenlignet med saltvannsbehandlede kontroller (fig. 3a og b) og ble betydelig redusert i Ka-behandlede mus (fig.3c- e). I Ka-behandlede mus ble dessuten LD-er oftere observert i nærheten av, innelukket i eller nedbrutt av autolysosomer, som ble definert som elektrontette lipofuscin-granuler. Ytterligere histologisk farging av TH*-nevroner med BODIPY, et fargestoff som spesifikt merker nøytrale lipider og som ofte brukes til å oppdage LD-er [30], viste at både antall og størrelse på BODIPY-LD-er i SNpc var høyere i PD-mus enn i kontroller, og ble signifikant redusert ved Ka-behandling (fig.3f-h).
Hvis LD-er ikke kan degraderes i tide, kan de akkumulerte LD-ene gjennomgå peroksidasjon og bidra til mitokondriell ROS-mediert stress [4], som forsterker nevrotoksisitet og sykdomsprogresjon. Derfor undersøkte vi ekspresjonsprofilene til gener assosiert med beskyttelse mot fri FA-toksisitet (Gpx8), nøytraliserende oksidative arter, superoksidradikaler (Sod3) og hydrogenperoksid (Cat) og FA-metabolisme (Acsbg1 og Dbi) som rapportert [31] , som alle ble påfallende redusert i SNpc til MPTP-behandlede mus sammenlignet med kontroller, og disse effektene ble forbedret i Ka-behandlede PD-mus (fig.3i). På samme måte økte MPTP/p også mRNA-ekspresjonsnivåene

Fig.2. Ka forbedrer tapet av DA-neuroner i SNpc til MPTP/p PD-modellmus.
(ab) Mikrofotografier av tyrosinhydroksylase(TH)-positive nevroner (a) og stereologiske tellinger av TH-positive nevroner i substantia nigra pars compacta (SNpc)(b). Målestokkene er som angitt.(cd) Mikrofotografier av kresylfiolett -positive celler(c) og stereologiske tellinger av kresylfiolett-positive celler i SNpc(d). Målestokk, 120 μm. (f.eks.) Western blot-analyse av TH- og DAT-proteinuttrykk i SNpc (e) og kvantitativ analyse (f, g). De kvantifiserte dataene er normalisert til saltvannskontrollgruppen. Dataene er uttrykt som gjennomsnitt ± SEM.*P<0.05,><0.01,by one-way="" anova="" followed="" by="" tukey's="" post="" hoc="" test.n="4-5" for="" each="" group.="" ve,="" vehicle,="" ka,="" kaempferol;="" mptp,1-methyl-4-phenyl-1,2,3,6-tetrahydropyridine..(for="" interpretation="" of="" the="" references="" to="" color="" in="" this="" figure="" legend,="" the="" reader="" is="" referred="" to="" the="" web="" version="" of="" this="" article.)="" of="" nadph="" oxidase="" subunits="" such="" as="" noxl,="" nox2,="" and="" nox4="" in="" the="" snpc="" of="" mptp/p="" mice,="" which="" were="" further="" blunted="" by="" ka="" treatment="" (fig.="" 3j).="" taken="" together,="" these="" data="" suggest="" that="" ka="" alleviates="" mptp/p-induced="" ld="" accumulation,="" peroxidation,="" and="" ros-mediated="">
Resultat 4. Ka beskytter SH-SY5Y-celler mot MPP pluss-indusert apoptose
MPP plus , den aktive metabolitten til MPTP, hemmer mitokondrielle komplekse enzymer og forårsaker celledød som er direkte assosiert med PD [32]. Vi undersøkte deretter om Ka kunne forhindre MPP pluss-indusert nevronal apoptose in vitro. Som vist i fig. 4a og b, induserte MPPt (400 μM, 24 timer) frigjøring av LDH fra SH-SY5Y-celler, og Ka(30 og 60 μM) svekket LDH-frigjøring betydelig uten å påvirke celleoverlevelsen (fig. 4a). Siden Ka induserte en betydelig beskyttende effekt ved en konsentrasjon på 30 μM (Fig.4b), brukte vi denne konsentrasjonen i påfølgende eksperimenter. Hoechst/PI-fargingsresultatene viste også at Ka signifikant reduserte prosentandelen av celler med MPP pluss-indusert kromatinkondensasjon (fig. 4c og d) og cellulær apoptose, som bevist av den økte Hoechst-fluorescensintensiteten (fig. 4c) og prosentandelen av Hoechst/PI-fargede celler (Hoechst pluss /PI pluss) (fig. 4e). detektert ved flowcytometri, MPPt-indusert celleapoptose, bevist av den økte prosentandelen av Annexin V-fargede celler (AV pluss /PI- og AV pluss /Prt) ble beskyttet av Ka (fig. 4f og g). I tillegg reverserte Ka spesielt. MPP pluss-induserte endringer i apoptose-relatert proteinuttrykk, som vist ved oppregulering av B cl-2, nedregulering av Bax (fig.4hi-j), og redusert spaltning av caspase-3(fig.4h,k). Disse dataene tyder på at Ka kan oppheve de skadelige effektene av MPp plus på celleoverlevelse.
Resultat 5. Ka undertrykker MPp pluss-indusert LD-akkumulering og lipidperoksidasjon, som medierer mitokondriell skade i SH-SY5Y-celler
Nyere studier har vist at uventet LD-akkumulering kan resultere i økt lipidperoksidasjonsmediert stress og akselerere mitokondriell dysfunksjon, noe som fremmer nevrodegenerasjon [10]. Vårt tidligere arbeid viste også at de økte LD-ene i SNpc var assosiert med PD-patologi hos mus [12]. For å undersøke om den beskyttende effekten av Ka var relatert til LD-akkumulering in vitro, utførte vi først LD-spesifikk farging i SH-SY5Y-celler ved å bruke BODIPY 493/503 og observerte økt LD-avsetning (forbedrede nivåer av nøytrale lipider)


Fig. 3. Ka reduserte akkumulering av elektrontette LD-vakuoler og lipidoksidasjon i SNpc av MPTP/p-behandlede mus.
(ac) Representative EM-bilder som viser elektronlyse vakuoler (lipiddråper), elektrontette autofagiske vakuoler som inneholder autolysosomer (ALS), eller lipofuscinholdige lysosomer (Lys) i SNpc til mus behandlet med saltvann (a), MPTP/p (b), og MPTP/p pluss Ka (c). Skala søyler, 500 nm. Med(a,b) som angitt i vårt tidligere arbeid (PMID:29967574). (de) Kvantifisering av elektronlyse LD-vakuoler per nevron i SNpc i de angitte musene. n =3 mus,10-12 nevroner per gruppe. (fh) Midthjerneseksjoner fra saltvann-, MPTP/p- og MPTP/p pluss Ka-behandlede mus ble farget for BODIPY (LDs) og TH (DA-neuroner). Panelene lengst til høyre viser forstørrelser av BODIPY pluss TH pluss nevroner. Piler indikerer LDs.(gh), Kvantifisering av BODIPY pluss LD-nummer og størrelse. (ii) mRNA-ekspresjon av FFA-toksisitetsrelaterte gener (Gpx8, Sod3, Gat, Acsbg1 og Dbi)(i) og oksidativt stressgener (Nox1, Nox2 og Nox4)(j) i SNpc til de indikerte musene ble analysert ved sanntids qPCR.n=4-5 per gruppe, tre uavhengige eksperimenter. Dataene er uttrykt som gjennomsnitt ± SEM; ns, ikke signifikant, *P<><><0.001, by="" one-way="" anova="" followed="" by="" tukey's="" post="" hoc="" test.="" ka,="" kaempferol;="" mptp,="">
Denne artikkelen er hentet frahttps://doi.org/10.1016/j.redox.2021.101911Mottatt 23. november 2020


