Parasitter, infeksjoner og inokulering i syntetiske minimale celler
Oct 27, 2023
ABSTRAKT: Syntetiske minimale celler gir en kontrollerbar og konstruerbar modell for biologiske prosesser. Selv om de er mye enklere enn noen levende naturlig celle, tilbyr syntetiske celler et chassis for å undersøke det kjemiske grunnlaget for viktige biologiske prosesser. Her viser vi et syntetisk cellesystem med vertsceller, som interagerer med parasitter og gjennomgår infeksjoner av varierende alvorlighetsgrad. Vi demonstrerer hvordan verten kan konstrueres for å motstå infeksjon, vi undersøker de metabolske kostnadene ved å bære resistens, og vi viser en inokulering som immuniserer verten mot patogener. Vårt arbeid utvider den syntetiske celleteknologiske verktøykassen ved å demonstrere vert-patogen-interaksjoner og mekanismer for å oppnå immunitet. Dette bringer syntetiske cellesystemer ett skritt nærmere å gi en omfattende modell av komplekst, naturlig liv.

cistanche fordeler for menn styrker immunforsvaret
INTRODUKSJON
I løpet av de siste tiårene har feltet for syntetisk biologi eksplodert, noe som muliggjør konstruksjon av syntetiske celler som ligner og modellerer aspekter av naturlig biologisk liv. Modellering av cellulære veier og atferd i syntetiske celler gir mange fordeler i forhold til levende celler, for eksempel et mer forenklet og definert reaksjonsmiljø, fullstendig kontroll over cellens proteomiske og kjemiske sammensetning, evnen til å oppdele forstyrrende biologiske veier og prosesser, samt opprettholde viktige biologiske systemer som er fraværende i in vitro-reaksjonssystemer.1,2 Disse unike ressursene til syntetisk celleteknologi har allerede muliggjort simulering av biologiske forhold og veier i en naturtro in vitro-bioreaktor (syntetisk celle) og gitt en bedre forståelse for mange studieområder, inkludert molekylær fortrengning,3 lipid-proteindynamikk,4 minimal metabolisme5 og mange andre kritiske aspekter ved biologisk liv.2 Disse naturtro syntetiske cellene med sine unike eiendeler blir raskt bedre modeller og kaster mer lys inn i cellelivets mystiske indre virkemåte.6,7 Disse gjennombruddene er ikke begrenset til enkeltcelleprosesser; Tekniske interaksjoner mellom populasjoner av liposomer har også vist seg å være en kraftig teknologi. For eksempel har designet av et syntetisk cellesystem som etterligner et forhold mellom rovdyr og bytte blitt utviklet ved å bruke lys som signal mellom disse syntetiske cellepopulasjonene.8 Et annet komplekst arbeid har blitt utviklet som tillater signalutbredelse gjennom en syntetisk celledråpematrise, tillater fluorescens å spre seg på en romlig måte blant befolkningen.9 I tillegg til syntetiske celle-syntetiske celle-interaksjoner, har det også vært nye fremskritt innen syntetiske celle-levende celle-grensesnitt. For eksempel har det vist seg at en syntetisk celle designet for å kommunisere med en nevral stamcelle er i stand til å indusere nevral differensiering samt fungere som et generalisert chassis som er i stand til å kommunisere med andre celletyper.10 Det har vært utallige fremskritt i utviklingen av signalutbredelse og syntetiske celler som fungerer som grensesnitt, hvorav mye er utforsket i de følgende oversiktene.11−13 Kort sagt, det er hele forskningsfelt opptatt av å etterligne interaksjonene til cellulære populasjoner i modellsystemet av syntetiske celler. Til tross for dette har det ikke vært en studie som bruker syntetiske celler til å modellere infeksjon, parasittisme eller inokulering. Akkurat som syntetiske celler ofte brukes til å modellere komplekse biologiske prosesser på en forenklet og kontrollert måte, eksisterer potensialet for å kunne modellere disse komplekse interorganisminteraksjonene. Viktigheten av dette kan sees i den banebrytende studien som med suksess produserte aktive fagpartikler innenfor en cellefri proteinekspresjonsplattform.14 Vi tar sikte på å bringe dette konseptet til makronivå ved å designe syntetiske cellepopulasjoner som aktivt kan infisere hverandre og kapre en vertscelles genom, akkurat som levende virus og parasitter gjør. Å kunne bruke og konstruere syntetiske celler for å modellere denne sykdomsatferden vil gi et verdifullt verktøy for det vitenskapelige samfunnet.
I dette arbeidet viser vi vårt system for syntetisk cellesykdomsmodellering. Vi konstruerte en vertscelle som kunne gjennomgå infeksjon fra den andre populasjonen av parasittiske syntetiske celler og undersøkte ressurskonkurransen, genomkapringen og metabolsk omformål som oppstår under en slik infeksjon. Vi modellerer også en metode som muliggjør redning av verten etter infeksjon, samt et middel for inokulering som vil gjøre det mulig for verten å motstå infeksjonen av de sykdomsfremkallende syntetiske cellene. Kort fortalt presenterer vi et nytt sykdoms- og infeksjonsmodell-chassis for syntetiske celler. Med denne teknologien kan syntetiske celler begynne å bli brukt som rudimentære modeller for sykdom, infeksjon og inokulering (Figur 1).
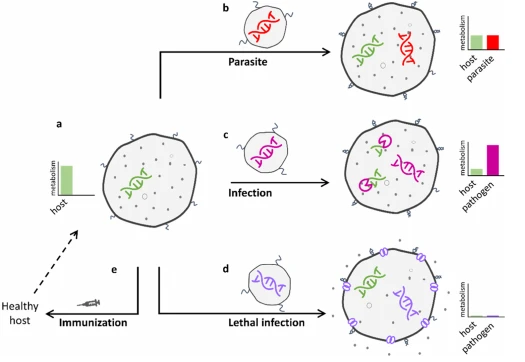
Figur 1. Parasitt-, infeksjons- og inokuleringssystem i syntetiske minimalceller. (a) "Verten" er en syntetisk celle som uttrykker grønt fluorescerende protein (GFP). På overflaten av den ytre membranen bærer verten ssDNA-merker. De eneste proteinene som er oversatt til en sunn vert er vertens egne proteiner fra plasmidene verten ble skapt med. (b) "Parasitten" er et liposom fylt med plasmid-DNA som koder for et gen for mCherry fluorescerende protein, og overflaten av parasittliposomet er dekorert med ssDNA-tag (komplementært til taggen på vertsoverflaten). "Infeksjonen" starter med en fusjon av verts- og parasittliposomer, mediert av de komplementære DNA-taggene på overflaten. Etter infeksjonen uttrykker verten både det opprinnelige vertsgenet (GFP) og parasittgenet (mCherry). (c) "Infeksjonen" starter med "patogen" liposomer som bærer et gen for restriksjonsenzymet MunI som fusjonerer med vertsliposomer. Patogengenet MunI uttrykkes av verten og MunI-restriksjonsenzymet fordøyer verts-DNA. Dette resulterer i at det native vertsgenomet blir fordøyd, og gjør det meste av vertsproteinekspresjonen fra GFP til patogenets kodede protein, MunI. (d) Den "dødelige infeksjonen" er en fusjon av vertsliposomet (med GFP-genomet) med patogenliposomet som inneholder genet som koder for aHL, et membranprotein. Etter infeksjonen uttrykker verten aHL, som skaper membranporer, forårsaker lekkasje av vertsnæringsstoffer og effektivt stenger vertens metabolisme. (e) "Immunisering" er inkubering av verten med ssDNA som inneholder en sekvens som er kompatibel med fusjonsmerkene på overflaten av vertsliposomer. Det immuniserende DNAet lager en dupleks med verts-DNA-merker, og forhindrer hybridisering av andre DNA-oligoer til disse taggene. Dette forhindrer fusjon av eventuelle patogene liposomer til verten. Dette er en proof-of-concept-figur, og grafene er for illustrative formål, og representerer relative mengder protein uttrykt fra verten og forskjellige patogener. Reelle data for hvert system er gitt i påfølgende figurer.
RESULTATER OG DISKUSJON
I dette arbeidet bruker vi ordene: vert, parasitt, infeksjon, dødelig, vaksine og inokulering, alt i sammenheng med ikke-levende, syntetiske cellesystemer. Med "dødelig" infeksjon mener vi en markant nedgang i translasjon i populasjonen av syntetiske celler. Alle eksperimenter i dette arbeidet ble utført på syntetiske celler som ikke er i live, som ikke replikerer seg selv og som ikke utvikler seg. Dette er et modellsystem for naturlige biologiske egenskaper og prosesser.
cistanche supplement fordeler-øke immunitet
Klikk her for å se Cistanche Enhance Immunity-produkter
【Be om mer】 E-post:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
Infeksjon av en syntetisk celle med en parasittisk syntetisk celle kaprer vertsressurser.
For å teste konseptet med et syntetisk cellesystem som etterligner en infeksjon, startet vi med å konstruere et modellsystem for en parasitt. Vi brukte det enkleste konseptet av en parasitt som var mulig å rekonstituere i dette ikke-levende biokjemiske systemet: en parasitt som kaprer noen av ressursene til verten. I dette tilfellet er vertsmetabolismen representert av uttrykket av GFP-protein, og parasitten er representert ved mCherry-proteinekspresjonen. For dette systemet brukte vi det tidligere demonstrerte fenomenet lineært proteinekspresjonsutbytte avhengig av DNA-templatekonsentrasjonen i TxTl.15,16. Først satte vi oss for å finne den optimale totale plasmidkonsentrasjonen der forholdet mellom GFP og mCherry DNA tilsvarer forholdet mellom observert fluorescens fra disse proteinene. Vi tildelte vilkårlig GFP-genet som "verten" og mCherry-genet som "parasitten". Disse navnene betyr ikke noe spesielt i dette spesielle eksperimentet, men vil indikere verten og parasitten i påfølgende syntetiske celleeksperimenter. Her bruker vi disse navnene for å gjøre det lettere å relatere disse proof-of concept-eksperimentene til påfølgende syntetiske celleinfeksjonseksperimenter med de samme plasmidene. Vi blandet GFP- og mCherry-plasmider, med begge gener under kontroll av T7-promotoren ved varierende plasmidforhold og en total plasmidkonsentrasjon i prøvene 1, 5, 10 eller 15 nM (Figur 2b). Resultatene fulgte det forventede nesten lineære forholdet mellom konsentrasjonen av plasmid og den registrerte fluorescensintensiteten, med det beste samsvaret mellom fluorescens- og plasmidkonsentrasjonsforhold observert ved totalt 10 nM plasmid. Det observerte forholdet indikerer at plasmidene, med proteinene som er like i størrelse og aminosyresammensetning (figur S1), konkurrerer om den samme poolen av TxTl-ressurser for deres uttrykk. Endring av den relative konsentrasjonen av de to plasmidene resulterer i endringer i ekspresjonseffektiviteten omtrent proporsjonal med forholdet mellom plasmidene. Dette indikerer at det vil være en god modell for å etterligne parasittinfeksjon: parasittgenomet (mCherry-plasmid) vil konkurrere med vertsgenomet (GFP-plasmid). Deretter bestemte vi oss for å teste et tilfelle der et av plasmidene var under kontroll av en sterkere promoter, og dermed etterligne et partisk ressursallokeringsscenario. For å beholde ressurskonkurranseaspektet ved fremtidige "parasitt"-infeksjonseksperimenter, holdt vi begge genene under samme RNA-polymerase-promoter (T7 RNA-polymerasen, T7 RNAP), men varierte dens styrke. Vi brukte en sterk T7 RNAP-promoter T7Max, som viser betydelig høyere transkripsjonsutbytte, noe som resulterer i tilsvarende høyere translasjonsutbytte, i TxTl.17 Vi testet reaksjonsoppsettet identisk med det beskrevet tidligere: to plasmider i forskjellige forhold, testet ved varierende sluttsum. plasmidkonsentrasjoner. Ett av plasmidene var under kontroll av den sterke T7Max-promotoren, mens det andre var under den kanoniske T7-promotoren. I begge testtilfellene var T7Max-plasmiduttrykket sterkt nok til at fluorescensen til proteinet fra et gen under T7Max ikke økte signifikant med den økte totale konsentrasjonen av plasmidet (Figur 2c,2d). Det så ikke ut til å spille noen rolle om T7Max drev GFP eller mCherry, begge proteinene reagerte på den sterkere promoteren med en lignende relativ økning. Dette ga en lovende modell for infeksjon med en "sterkere" parasitt (en parasittbærende gen under T7Max inn i en vert under T7) og omvendt, sterkere vertsmotstand mot svakere parasitt (en vert med genom under T7Max og en parasittbærende T7-gen). Oppmuntret av disse bevis-av-prinsipp-eksperimentene, gikk vi videre til syntetiske celleeksperimenter.
"Infeksjonen" er i alle tilfeller fusjonen av en syntetisk verts- og parasittcelle. Fusjonen forenkles av DNA-merker på overflaten av liposomene, ved bruk av det DNA-induserbare fusjonssystemet beskrevet tidligere.18 Kort fortalt ble de syntetiske cellene skapt med Escherichia coli TxTl inne i en membran av POPC og kolesterol, og den ytre brosjyren ble dekorert med enkelttrådet DNA forankret til membranen ved kolesterolmodifikasjon. Hvis et par liposomer med komplementære tags møtes, hybridiserer DNA-taggene, bringer membranene sammen og starter membranfusjon, som etterfølges av lumenblanding. I våre eksperimenter er den syntetiske vertscellen liposomet som inneholder TxTl med T7 RNAP i tillegg til genomet til en plasmidkodet GFP. Overvåking av GFP-fluorescens fungerer som en proxy for "helsen" til vertsmetabolismen. Den innkommende parasitten inneholder et genom i form av et plasmid som koder for mCherry, det komplette translasjonssystemet, men ingen T7 RNA-polymerase. Dette sikrer at eventuelle observerte endringer i vertsmetabolismen skyldes genene som bringes inn av parasitten og ikke fra sammensmeltingen av parasitten og vertsliposomer, som fortynner vertens cytoplasma. Parasittinfeksjonsforsøkene ble utført med vertsmembranen merket med Marina Blue DHPE, et blått membranlipidfargestoff. Dette tillot oss å normalisere den observerte verts- og parasittgenfluorescensen til den blå fluorescensen, og normalisere resultatene til den totale mengden vertsmembranfluorescens som er tilstede i prøven. Dette står for fortynningene av det totale volumet av prøven etter tilsetning av parasittliposomer. Parasittmembranene var ikke fluorescerende merket. Alle eksperimenter ble ledsaget av en kontrollprøve, der bare én populasjon var til stede som verten, men med mCherry-plasmid, for å vise de teoretiske maksimalt mulige mCherry-ekspresjonsnivåene hvis det var det eneste genet i populasjonen. I det første settet med eksperimenter blandet vi verten og parasitten med gener begge under kontroll av den vanlige T7-promotorenså både verts- og parasittgener var like "sterke". Vi blandet verten med parasitten slik at parasitten var på 25, 50 eller 75 % av den totale liposompopulasjonen. I alle tilfeller reduserte vertens GFP-fluorescens i nærvær av parasitten, med den tilsvarende økningen av parasitt-mCherry-fluorescens (figur 2e). Prøver med bare parasitten og ingen vert ga ingen fluorescens av noen av fargene, som forventet. I alle tilfeller er den DNA-medierte liposomfusjonen ikke 100 % effektiv;18,19 Derfor var den relative reduksjonen i vertsfluorescens og økning i parasittfluorescens ikke så stor som den forventede teoretiske verdien basert på forholdet mellom vert og parasitt. Infeksjonen var med andre ord ikke 100 % effektiv. Denne serendipitøse kvaliteten til det DNA-induserte fusjonssystemet var i dette tilfellet en fordelaktig egenskap ved systemet. Som ved naturlig infeksjon, påvirket ikke den syntetiske cellefusjonsmedierte infeksjonen alle verter og ikke alle parasitter fant en vert. Deretter undersøkte vi to tilfeller, der verten og parasitten ikke var jevnt matchet i styrke av deres genom. I ett tilfelle var vertsgenomet under kontroll av T7-promotoren mens parasittgenomet var under T7Max-promoteren (Figur 2f), og i motsatt scenario var vertsgenomet under T7Max og parasittgenomet var under T7-promotoren (Figur 2g). I tilfellet med den svakere verten angrepet av en sterkere parasitt, var den relative økningen i parasittisk mCherry-fluorescens og den tilsvarende reduksjonen i verts-GFP-fluorescens mye sterkere enn i det forrige tilfellet med en jevnt matchet vert og parasitt. Som forventet, når verten var sterkere enn parasitten, var det motsatte sant: mCherry-fluorescensnivåene var lavere og den relative reduksjonen i GFP-fluorescens var lavere enn i det jevnt matchede tilfellet. Dette illustreres best ved å sammenligne et enkelt datapunkt under de samme infeksjonsforholdene: ved 75 % parasittforhold. Jevnt matchede verts- og parasittpopulasjoner resulterer i en parasittfluorescens som er litt større enn verten. Når parasitten er sterkere, er parasittfluorescensen betydelig høyere enn verten. Og når verten er sterkere, er parasittfluorescensen litt lavere enn verten. Disse uthevede datapunktene er merket med en gul stjerne i figur 2e−g. Vi utførte kontrolleksperimentet til en vert infisert med en "asymptomatisk" parasitt, en parasitt som bærer et plasmid med T7-promoteren, men ingen proteinkodende sekvens (vi fjernet mCherry-kassetten fra plasmidet) (Figur 2h). Vertens GFP-fluorescens avtar minimalt ved høyere parasittnivåer, noe som indikerer at en liten mengde vertsressurser er viet til å transkribere det korte ikke-kodende RNA fra parasittplasmidet. Disse dataene bekrefter også at den viktigste metabolske belastningen av parasittinfeksjonen på verten ligger i å utnytte translasjonsressurser, ikke transkripsjonelle, ressurser. Denne observasjonen faller i tråd med tidligere observasjoner av translasjon som den mer variable og begrensende ressursen i cellefrie systemer.20 Samlet sett gir disse eksperimentene en modell for infeksjon med en parasitt som kaprer de metabolske ressursene til verten, med syntetisk celleatferd som etterligner aspekter ved et naturlig vert-parasitt forhold.

Figur 2. Parasittinfeksjon kaprer ressursene til verten. (a) Det syntetiske vertscelleliposomet inneholder et cellefritt translasjonssystem og et plasmid som koder for GFP. Overflaten til verten er dekorert med ssDNA-tagger. Parasittliposomet inneholder plasmid som koder for mCherry, med et translasjonssystem, men ingen RNA-polymerase (så parasitten kan ikke uttrykke mCherry). Overflaten til parasitten er dekorert med ssDNA-tagger som er komplementære til taggene på overflaten av verten. DNA-taggene letter fusjonen av verts- og parasittliposomer, og verten uttrykker både sin egen genomiske GFP og det parasittiske genomet som inneholder mCherry. (b−d) Prinsippbevis for verts- (GFP)- og parasitt-(mCherry)-genomene som konkurrerer om de samme syntetiske celleressursene. Disse eksperimentene gjøres i løsning TxTl, ikke i liposomer. To plasmider, som koder for GFP og mCherry, ble blandet i forholdet angitt av plasmidikonene til venstre på varmekartet, med prøvens totale DNA-konsentrasjon angitt i raden over varmekartet. Fluorescens ble målt i grønne (GFP) og røde (mCherry) kanaler. Hvert plasmid ble testet i to varianter med promotere av forskjellig styrke: med T7 og med den sterkere T7Max promoteren. Individuelle data for alle varmekart er gitt i figurene S2−S4. Representative individuelle tidskurs for proteinekspresjonen til T7-verten og parasitten er gitt i figurene S5-S7 og for T7Max-parasitten i figurene S8-S10. (e−g) Infeksjon av verten med parasitten. I hvert eksperiment blandes vertsliposomer med parasittliposomer. Fusjonen av parasitten til verten leverer parasittisk mCherry DNA, som uttrykkes sammen med vertens GFP DNA. Ulike forhold mellom verten og parasitten ble testet, som indikert av ikonene under søylediagrammene. Vertsgenomet under T7-promoteren ble infisert med en parasitt med sitt genom under T7-promoterpanelet (e) og med en parasitt med sitt genom under T7Max-promoterpanelet (f), verten ble også laget med et T7Max-genom og infisert med parasitten med et T7-genompanel (g). Representative individuelle tidskurs for proteinuttrykk er gitt i figur S11. Lignende eksperimenter ved høyere og lavere totale lipidkonsentrasjoner er gitt i figur S12. Størrelseseksklusjonsrensespor som viser vesikkelstabilitet etter fusjon er gitt i figur S13. (h) Infeksjon med uforenlig parasitt: parasitten bærer T7-promotoren, men ikke-kodende DNA. Feilfelt indikerer SEM, n=3. Fluorescensverdier i paneler (e−h) er normalisert til den blå fluorescensen til et membranfargestoff for å normalisere resultatene til konsentrasjonen av vertsceller. Alle prøveserier merket "vert GFP-infisert" er eksperimenter, der verten og parasitten hadde komplementære DNA-merker på overflaten, noe som muliggjorde fusjon av liposomene, kalt infeksjon. Seriemerket "vert GFP sunn" viser prøver, der verten og parasitten ble blandet i de viste forhold, men ikke inneholdt komplementære fusjonsmerker, noe som gjorde infeksjon umulig. Diamanten i paneler (e−h) indikerer en spesiell infeksjonstilstand som best illustrerer forskjellene i verts- og parasittekspresjonsstyrker i paneler (e−g) og fordelene med vertsimmunitet i panel (h). En direkte sammenligning av verts- og parasittverdiene angitt av stjernen er gitt i figur S14. Data for infeksjon med en parasitt uten noe plasmid er vist i figur S15.
Infeksjon av en syntetisk celle kan ødelegge vertsgenomet.
Parasitten beskrevet ovenfor uttrykte en genom-kodende mCherry ved å bruke ressurser fra verten, men verten opprettholdt noe av metabolismen og fortsatte å uttrykke GFP til tross for infeksjonen. Deretter bestemte vi oss for å undersøke et system der infeksjonen resulterer i en fullstendig overtakelse av vertsmetabolismen av parasitten via ødeleggelse av vertsgenomet (Figur 3a). For å konstruere et slikt scenario, undersøkte vi en restriksjonsenzymfordøyelse av et plasmid i TxTl. I proof-of-princip-eksperimentene ble et MunI-restriksjonsenzym uttrykt i TxTl uten liposomer. MunI-plasmidet ble blandet med GFP-plasmid i forskjellige forhold. Hvis GFP-plasmidet ikke inneholder MunI-restriksjonsseter, kan den relativt lille reduksjonen i observert GFP-fluorescens forklares av den tidligere beskrevne konkurransen mellom de to plasmidene om TxTl-ressurser. Hvis GFP-plasmidet har et MunI-restriksjonssete, reduseres GFP-fluorescensen betydelig, og reduksjonen skaleres proporsjonalt med en økende mengde av det MunI-kodende plasmidet (figur 3b). MunI-ekspresjonen ble overvåket via Western Blot og skalert proporsjonalt med plasmidkonsentrasjonen (figur 3c).

cistanche tubulosa-forbedre immunsystemet
Oppmuntret av disse resultatene satte vi opp et infeksjonseksperiment med syntetiske celler. Verten bar GFP-plasmidet og patogenet bar MunI-plasmidet. Konsentrasjonen av GFP- og MunI-plasmider ble satt til 2 mM, godt under konsentrasjonen av plasmidmetning for TxTl.21 Vi hadde til hensikt å forbli under den totale plasmidkonsentrasjonen hvor verts- og parasittekspresjon ville være høy nok til å konkurrere direkte om begrensede ressurser ( som i det ovenfor beskrevne tilfellet med en enkel parasitt), i stedet for å måle effekten av at parasittenzymet aktivt ødelegger vertsgenomet. Som i de tidligere beskrevne parasitteksperimentene, inneholdt verten bakteriell TxTl og T7 RNA-polymerase, patogenet bar bare celleekstrakt uten T7 RNA-polymerase, og både verten og patogenet ble merket med komplementære DNA-fusjonsmerker. Vertsmembranen ble merket med Marina Blue DHPE for å normalisere fluorescensresultater til konsentrasjonen av vertsliposomer. Verten og patogenet ble blandet i forskjellige forhold, hvor patogenet var 25, 50 eller 75 % av den totale befolkningen. Fluorescensen til den "infiserte" verten, der verten og patogenet inneholdt komplementære fusjonsmerker, avtok med en økende mengde patogen. GFP-fluorescensen fra den "friske" verten, der patogenet ikke inneholdt komplementære fusjonsmerker, avtok ikke i nærvær av noen mengde patogen. Prøver med bare patogenet resulterte i ingen målbar fluorescens (figur 3d). Det patogene MunI-proteinuttrykket ble kvantifisert ved bruk av Western Blot-analyse, med data vist for prøveserien til den infiserte verten (figur 3e). Deretter undersøkte vi infeksjon i tilfelle av en vert immun mot patogenet: verts-GFP-plasmidet hadde ikke et MunI-restriksjonssted (figur 3f). Vertsfluorescensen etter infeksjon avtok, men var ikke på langt nær så signifikant som i det tidligere tilfellet med en vert med et MunI-sete i genomet. MunI-patogenproteinet ble uttrykt ved nivåer som var sammenlignbare med tidligere infeksjonsforsøk (figur 3g), så den metabolske belastningen på verten var lik. Den infiserte vertsfluorescensreduksjonen i disse eksperimentene er forårsaket av at noen av vertsressursene blir kapret av patogenet som uttrykker MunI, men fordi den totale plasmidkonsentrasjonen er mye lavere enn i de tidligere enkle patogeneksperimentene, er vertsfluorescensreduksjonen mindre signifikant. Dette eksperimentet bekrefter også at reduksjonen i fluorescens til verten med et MunI-sted (figur 3d) ble forårsaket av proteinekspresjonstidskurs gitt i figur S22. (g) Ekspresjon av MunI ble sporet via western blot-analyse gjennom eksperimentet for prøvene vist i serien "GFP-infisert" i panel (f). Feilfelt på alle paneler indikerer SEM, n=3. Fluorescensverdier i paneler (d, f) er normalisert til den blå fluorescensen til membranfargestoffet som brukes for å normalisere resultatene til konsentrasjonen av vertscellene. Fluorescens i panel (b) er normalisert til 0 mM MunI-plasmid for hver prøveserie. Diamantsymbolene i panelene (d, f) fremhever en bestemt tilstand som best illustrerer forskjellene i respons på infeksjonen fra en vert som er mottakelig for patogenpanelet (d) og immun mot patogenpanelet (f). Alle prøveseriene merket "GFP-infisert" er eksperimenter, der verten og patogenet hadde komplementære DNA-merker på overflaten, noe som muliggjorde fusjon av liposomene, kalt infeksjon. Serien merket "GFP sunn" viser prøver, der verten og patogenet ble blandet i de viste forholdene, men ikke inneholdt komplementære fusjonsmerker, noe som gjorde infeksjon umulig.

Figur 3. Infeksjon ødelegger vertsgenomet og kaprer vertsressurser. (a) Vertscellene inneholder plasmid som koder for GFP, med to MunI-restriksjonsseter; patogenet inneholder plasmid som koder for MunI-restriksjonsenzymet. Etter fusjonen av verten og patogenet uttrykker verten TxTl MunI-restriksjonsenzymet, som deretter fordøyer vertsgenomet. (b) Prinsippbevis-eksperimentene for infeksjonen: GFP-plasmid ble fremstilt med og uten MunI-restriksjonsseter. GFP-plasmid ble blandet med MunI-plasmid og GFP-ekspresjon ble registrert. Disse eksperimentene ble utført i løsning TxTl uten liposomer. Prinsippbevis for infeksjonsforsøket, med MunI-enzymet tilsatt eksternt i stedet for å bli uttrykt i TxTl, er vist i figurene S16 og S17. Representative proteinekspresjonstidskurs er gitt i figur S18. (c) MunI-ekspresjon ble overvåket ved western blot-analyse; intensiteten til MunI-båndet ble kvantifisert i de samme prøvene som fluorescensresultatene vist i panel (b) for "MunI-sted fraværende"-serien. En representativ western blot av MunI-restriksjonsenzymet er gitt i figur S19. (d) GFP-fluorescens av verten blandet med patogenliposomer i forholdet vist under datagrafen. Verts-GFP-plasmidet har to MunI-restriksjonsseter. Representative proteinekspresjonstidskurs er gitt i figur S20. Data for infeksjonseksperimenter med inkompatible fusjonsmerker er gitt i figur S21. (e) Ekspresjon av MunI ble sporet via western blot-analyse gjennom eksperimentet for prøvene vist i serien "GFP-infisert" i panel (d). (f) GFP-fluorescens av verten blandet med patogenliposomer i forholdet vist under datagrafen. Vertens GFP har ingen MunI-restriksjonsseter, noe som gir den immunitet mot patogenproteinet. Representative proteinekspresjonstidskurs er gitt i figur S22. (g) Ekspresjon av MunI ble sporet via western blot-analyse gjennom eksperimentet for prøvene vist i serien "GFP-infisert" i panel (f). Feilfelt på alle paneler indikerer SEM, n=3. Fluorescensverdier i paneler (d, f) er normalisert til den blå fluorescensen til membranfargestoffet som brukes for å normalisere resultatene til konsentrasjonen av vertscellene. Fluorescens i panel (b) er normalisert til 0 mM MunI-plasmid for hver prøveserie. Diamantsymbolene i panelene (d, f) fremhever en bestemt tilstand som best illustrerer forskjellene i respons på infeksjonen fra en vert som er mottakelig for patogenpanelet (d) og immun mot patogenpanelet (f). Alle prøveseriene merket "GFP-infisert" er eksperimenter, der verten og patogenet hadde komplementære DNA-merker på overflaten, noe som muliggjorde fusjon av liposomene, kalt infeksjon. Serien merket "GFP sunn" viser prøver, der verten og patogenet ble blandet i de viste forholdene, men ikke inneholdt komplementære fusjonsmerker, noe som gjorde infeksjon umulig.
Infeksjon av en syntetisk celle kan være "dødelig", tømme vertscelleressurser, og slike infeksjoner kan "behandles" til redningsfunksjon.
Parasitt- og patogeneksperimentene ovenfor viste at syntetiske celler kan brukes som en modell for infeksjon, der et patogen kaprer ressursene til verten. Deretter bestemte vi oss for å undersøke et scenario der infeksjonen fører til at metabolismen til verten slutter å fungere etter ekspresjonen av det patogene proteinet. I dette tilfellet er patogenet sammenlignbart med infeksjon med en bakterie som uttrykker et dødelig toksin minus replikasjonsaspektet til verten eller parasitten siden disse syntetiske cellene ikke replikerer (Figur 4a). For å konstruere dette systemet valgte vi hemolysin (aHL), et naturlig toksin og membranprotein som er mye brukt i syntetisk celleteknikk for å lage uspesifikke membranporer.22,23 Vi setter pris på ironien i dette valget, da aHL naturlig uttrykkes av Staphylococcus aureus som en toksin, og proteinet ble senere tilegnet for å konstruere membrantransport og forlenge syntetisk cellemetabolisme.24 Her går vi tilbake til å bruke aHL for sin naturlige rolle som et skadelig giftstoff produsert av en infeksjon. Et annet bemerkelsesverdig syntetisk celleteknikkrelatert eksempel på bruk av aHLs toksisitet for å forårsake naturlig celledød kommer fra anvendelsen av syntetiske celler som en kreftterapiteknologi.25 Som et bevis på prinsippet slo vi fast at uttrykker en høy konsentrasjon av aHL i syntetiske cellevesikler. resulterer i lekkasje av celleinnhold og en betydelig reduksjon i uttrykket av GFP inne i cellen. Denne effekten kan reverseres hvis utsiden av liposomene inneholder alle de små molekylene som er nødvendige for TxTl (Figur 4b). I vårt vertspatogenmodellsystem inneholder verten et GFP-kodende plasmid og patogenet inneholder et aHL-kodende plasmid. Alle infeksjonseksperimentenes design ligner på parasitt- og patogenscenarioene beskrevet ovenfor, med patogenet som ikke bærer T7 RNAP og både verten og patogenet dekorert med DNA-fusjonsmerker. Interessant nok observerte vi at ved lavere patogenkonsentrasjoner (patogenet er 25 eller 50% av den totale befolkningen), reduseres vertsfluorescensen bare litt. Å øke patogenkonsentrasjonen til 75 % resulterer imidlertid i en betydelig reduksjon i vertens GFP-fluorescens (figur 4c). Vi spekulerer i at dette resultatet kan være forårsaket av relativt langsomme lekkasje av næringsstoffer fra syntetiske celler ved en lavere aHL-konsentrasjon. GFP-fluorescensen ble målt først etter 12 timers inkubering, og GFP er et veldig stabilt protein. Derfor er det mulig at i tilfelle av lavere aHL-konsentrasjoner (lavere patogenmengde), var den aHL-forårsakede lekkasjen av næringsstoffer sakte nok til at vertscellene akkumulerte betydelige mengder GFP før effekten av den aHL-induserte lekkasjen ble lammende for stoffskiftet. For å frakoble resultatene av enkel konkurranse om ressurser mellom verts- og parasittgenomet, utførte vi "infeksjon med redning"-eksperimenter der den utvendige bufferen inneholdt alle de små molekylene som utgjør TxTl-energi-, aminosyre- og saltblandingene. Dette ble satt opp på samme måte som tilstanden "næringsstoffer utenfor" testet i figur 4b. Nedgangen i vertsfluorescens i disse eksperimentene var lik de tidligere "infeksjon uten redning"-prøver med 25 og 50 % nivåer av patogenet. Reduksjonen av vertsfluorescens ved 75 % av patogenet var betydelig mindre enn reduksjonen observert i prøver uten redning (Figur 4d). Den store forskjellen i resultater for eksperimentet med 75 % av parasitten, med datapunkter i figur 4 paneler (c, d) markert med en stjerne, ser ut til å støtte vår hypotese om at høyere aHL-konsentrasjoner forårsaker skade tidlig i reaksjonen. Ved en lavere patogenkonsentrasjon er lekkasjen sakte nok til at vertens GFP akkumuleres (som sett både med og uten redningsnæringsstoffer), så den observerte GFP-fluorescensen avtar etter infeksjon, hovedsakelig på grunn av konkurransen om ressurser. Ved høyere patogenkonsentrasjoner avtar GFP-fluorescensen i prøver med eksterne næringsstoffer hovedsakelig på grunn av ressurskonkurranse. Disse eksperimentene viser at vi kan konstruere syntetiske celler for å modellere infeksjon, noe som resulterer i to forskjellige utfall: den metabolske straffen for selve infeksjonen (redusert GFP på grunn av ressurskonkurranse) og en mer "dødelig" infeksjon som følge av å avskaffe vertens proteinuttrykk. Oppmuntret av denne observasjonen bestemte vi oss for å undersøke et system der syntetiske celler aktivt kunne motstå en patogen infeksjon og undersøke den metabolske straffen for en slik respons.

cistanche fordeler for menn styrker immunforsvaret
Syntetiske celler kan forsvare seg mot infeksjoner ved å bruke en bakterieinspirert strategi.
Inspirert av den velkjente funksjonen til restriksjonsendonukleaser for å beskytte bakterier mot fremmed DNA, forsøkte vi å bruke denne strategien innen syntetiske celler. Vi utvidet på parasittsystemet presentert i figur 2: i tillegg til GFP, la vi MunI-holdig plasmid til verten. Parasitten inneholdt mCherry, som i tidligere forsøk. mCherry-plasmidet inneholder et MunI-restriksjonssete (figur 5a). Først utførte vi proof-of-princip-eksperimenter for å vurdere den metabolske belastningen ved å uttrykke MunI på verten. I disse uinnkapslede TxTl-eksperimentene overvåket vi uttrykket av GFP og uttrykket av mCherry, hver blandet med en økende mengde av enten MunI- eller EcorI-plasmid. Alle gener var under kontroll av den samme T7-promotoren. GFP-genet hadde et EcorI, men ikke et MunI-restriksjonssete, og mCherry-genet hadde et MunI, men ikke et EcorI-restriksjonssete. Når restriksjonsenzymplasmidet ble blandet med et fluorescerende proteinplasmid uten et gjenkjennelsessted for det restriksjonsenzymet, sank det fluorescerende proteinekspresjonen proporsjonalt med økningen av restriksjonsenzymplasmidet, noe som indikerer konkurranse mellom de to plasmidene om TxTl-ressurser, som vist tidligere for GFP og mCherry i figur 2. Disse ikke-skjærende parene var GFP med MunI (Figur 5b) og mCherry med EcorI (Figur 5e). Når et fluorescerende protein ble paret med et restriksjonsenzym som var i stand til å kutte genet for det fluorescerende proteinet, sank fluorescensen betydelig til nesten bakgrunnsnivåer ved høyere restriksjonsenzymplasmidkonsentrasjoner. Disse skjæreparene var GFP med EcorI (Figur 5c) og mCherry med MunI (Figur 5d). Dette indikerte en reduksjon i fluorescens betydelig utover den enkle konkurransen om ressurser og ligner på infeksjonsscenarioet vist i figur 3. MunI-ekspresjon i nærvær av GFP reduserer GFP-ekspresjonen. Hvis vi bruker GFP som en proxy for verts "baseline" metabolisme, så kan MunI sees på som en metabolsk belastning på verten.

Figur 4. Verten er mottakelig for "dødelig" infeksjon, men verten kan reddes. (a) Verten inneholder GFP-plasmid, og patogenet inneholder plasmid som koder for hemolysin (aHL) membrankanalen. Etter infeksjonen uttrykker verten aHL, som skaper porer i membranen, forårsaker lekkasje av næringsstoffer og resulterer i en reduksjon i metabolsk aktivitet til verten. (b) Prinsippbevis for en vertsuttrykkende aHL (ingen infeksjon, vert ble opprettet med både 5nM GFP og den angitte mengden av aHL-plasmid). Verten ble inkubert i en buffer med eller uten næringsstoffer (alle komponenter i energi-, salt- og aminosyreblandingen som ble brukt til å forberede det vertscellefrie translasjonssystemet). Den optimale konsentrasjonen av redningsnæringsstoff ble etablert eksperimentelt, data vist i figur S23. (c) Infeksjon av verten med patogenet, med varierende mengder patogen per vertscelle. Lekkasjen av små molekyler fra de "friske" og "infiserte" cellene ble direkte målt ved hjelp av et lite molekylfargestoff, data er vist i figurene S24 og S25. (d) Eksperimenter som ligner på disse er vist i panel (c), men den utvendige bufferen inneholder små molekylære næringsstoffer som ligner på "næringsstoffer utenfor" eksperimentelle forhold vist i panel (b). Feilfelt på alle paneler indikerer SEM, n=3. Fluorescensverdiene i paneler (b-d) er normalisert til den blå fluorescensen til membranfargestoffet som brukes til å normalisere signalet til konsentrasjonen av vertscellene. Diamantsymbolene i panelene (c, d) fremhever en bestemt tilstand som best illustrerer forskjellene i respons på infeksjonen fra en vert uten ytre næringspanel (c) og immun mot patogenet på grunn av tilstedeværelsen av ytre næringspanel (d). For paneler (c, d), er serien "GFP-infisert" verten fusjonert med patogenet som bærer aHL-protein, og "GFP sunn" er verten fusjonert med patogenet uten plasmid.
Vi fortsetter til infeksjonsforsøkene, og blander verten (med GFP- og MunI-plasmider) med en parasitt (med mCherry-plasmid). Som tidligere undersøkte vi scenarier med økende mengde parasitter i befolkningen (Figur 5f). Den positive kontrollen av bare en vertsuttrykkende mCherry (med EcorI i stedet for MunI for å balansere den metabolske belastningen) skapte en målestokk for den teoretiske maksimale mengden patogenprotein som kan uttrykkes i verten (Figur 5f). Etter hvert som mengden parasitt økte, avtok vertens GFP-fluorescens, men reduksjonen i infisert vertsfluorescens var betydelig mindre enn reduksjonen av GFP-ekspresjon observert i tidligere eksperimenter med samme parasitt. GFP og parasitt mCherry-fluorescens av denne infiserte vertsuttrykkende MunI (datapunkt merket med en stjerne i figur 5f) kan sammenlignes direkte med lignende infeksjonsverter uten MunI (datapunkt merket med en stjerne i figur 2e). I verten som uttrykker MunI, startet verts-GFP med et absolutt lavere nivå mens den var frisk (fordi noen ressurser blir omdirigert til å uttrykke MunI), men etter infeksjonen er vertsfluorescensreduksjonen mye mindre signifikant, og verten lager mye mindre parasitt-mCherry-protein enn i tilfelle verten ikke uttrykker MunI. Dette eksperimentet demonstrerer fordelen med at verten bruker noen ressurser på forsvar mot parasitter. Dette systemet kan sees på som en veldig enkel biokjemisk modell for organismer som uttrykker proteiner for å forsvare seg mot fremtidige infeksjoner eller til og med skadelige miljøfaktorer. Verten er opprinnelig mindre robust (hvis vi tar GFP-uttrykk som et benchmark for vertshelse), men i tilfelle en infeksjon, lønner de ekstra ressursene verten brukte på å uttrykke defensive proteiner, og gir beskyttelse mot den smittende parasitten. Derfor, i denne enkle ikke-levende syntetiske cellen, rekonstituerte vi et eksempel på et grunnleggende biologisk våpenkappløp.

Figur 5. Vertsceller forsvarer seg mot infeksjon. (a) Vertscellene inneholder to plasmider: ett som koder for GFP (uten et MunI-restriksjonssete) og det andre som koder for MunI-restriksjonsenzymet ("parasittresistensgenet"). Parasitten inneholder mCherry-plasmid, i et system som ligner på eksperimenter vist i figur 2. Infeksjonen formidles ved fusjon via DNA-merker på overflaten av verten og parasitten. Etter infeksjonen blir mCherry-plasmidet introdusert av parasitten fordøyd av vertens MunI-restriksjonsenzym. (b−e) Måling av de metabolske kostnadene ved å uttrykke parasittresistensen. Eksperimenter er i et bulk TxTl-system, ikke innkapslet i vesikler. I hvert eksperiment ble det fluorescerende proteinplasmidet (GFP eller mCherry) blandet med restriksjonsenzymplasmid (MunI eller EcorI) i forholdet angitt på x-aksen for den totale plasmidkonsentrasjonen på 10 mM. GFP har et EcorI-restriksjonssted, men ikke et MunI-sted, og mCherry har et MunI, men ikke et EcorI-restriksjonssted. Trendlinjen er en visuell guide, men ikke en datatilpasning. Feilfelt indikerer SEM, n=3. Kontrolleksperimenter med rensede restriksjonsenzymer, i stedet for å uttrykke dem fra et plasmid, er gitt i figur S26. Stabiliteten til liposomer med økt mengde parasittplasmid ble også målt, data vist i figur S27. (f) Infeksjon av verten med en økende mengde parasitt. "Vert GFP sunn" er uttrykket av GFP fra vertsceller fusjonert med parasitten uten noe plasmid. "Vert GFP infisert" er verten smeltet sammen med parasitten som bærer mCherry. Den røde fluorescensen er mCherry-fluorescens fra parasitten smeltet sammen med verten (bare data fra den infiserte verten er tilgjengelig. De friske vertsprøvene bar ikke mCherry-plasmid). Feilfelt på alle paneler indikerer SEM, n=3. Fluorescensverdier er normalisert til den blå fluorescensen til membranfargestoffet som brukes for å normalisere resultatene til konsentrasjonen av vertscellene. Diamantsymbolet indikerer ekspresjonen av parasittproteinet under spesielle infeksjonsforhold, direkte sammenlignbart med datapunktet uthevet med en stjerne i figur 2e et eksperiment under de samme forholdene, men med verten som mangler MunI-resistensgenet.

Figur 6. Inokulering gir forsvar mot infeksjoner. (a) Verten inneholder GFP-plasmid. Patogenet i disse eksperimentene er ett av de tre infeksjonsskjemaene som er vist i denne artikkelen: en parasitt (som vist i figur 2), et patogen med MunI-restriksjonsenzymet som fordøyer vertens GFP-genom (som vist i figur 3), eller et patogen bærer membrankanalen aHL som forårsaker lekkasje av næringsstoffer fra verten (som vist i figur 4). I hvert tilfelle inneholder verten og patogenet komplementære DNA-fusjonsmerker. Før patogenet introduseres, blir verten "inokulert": inkubert med overflødig ssDNA-oligoer som er komplementære til fusjons-DNA-merkene på overflaten av verten (merker identiske med disse på patogenet minus kolesteroldelen som brukes til å forankre taggen til membranen av patogenet). Inokuleringen fører til at fusjonsmerkene på overflaten av verten blir dobbelttrådet, og dermed gjør fusjonen med patogenet umulig. (b) Prinsippbeviset for inokulasjonsordningen. Populasjonen av liposomer som bærer GFP under kontroll av T7 RNA-promotoren, men uten T7 RNA-polymerase, er smeltet sammen med liposomer som inneholder T7 RNA-polymerase. GFP-proteinet kan bare uttrykkes hvis de to populasjonene smelter sammen. En eller begge av blandingspartnerne ble "inokulert" ved inkubering med en DNA-tag kompatibel med fusjonsmerkene på overflaten av liposomet, noe som gjorde fusjonsmerkene dobbelttrådet og dermed uforenlige med fusjon. Et representativt tidsforløp for proteinuttrykk er vist i figur S28. Kontrolleksperimenter uten noen fusjonsmerker er i figur S29, og kontroller med inkompatible fusjonsmerker er gitt i figur S30. Inokulasjonsoligokonsentrasjonen ble etablert eksperimentelt, data vist i figur S31. (c) Parasittinfeksjonsforsøk. En vert som bærer GFP ble smeltet sammen med en parasitt som bærer mCherry, som beskrevet i figur 2. Verten og parasitten ble blandet med et varierende forhold mellom verten og parasitten; vertsceller ble enten inokulert (med dobbelttrådet DNA-fusjonsmerker som ikke var kompatible med fusjon) eller ikke inokulert (dermed mottakelig for fusjon med parasitten). mCherry-fluorescens rapporteres bare for prøver med verten ikke inokulert fordi det ikke var noen målbar mCherry-fluorescens i de inokulerte vertsprøvene. En omvendt inokulering ble testet ved å inokulere parasitten i stedet for verten, data vist i figur S32. (d) Infeksjonseksperimenter med vertsgenomet som er mottakelig for patogenet som bærer MunI-restriksjonsenzymet, som beskrevet i figur 3. Den infiserte dataserien representerer en vert uten inokulering, og den inokulerte dataserien representerer prøver med verten inkubert med inokulasjonsoligoer, dermed ikke mottakelig for fusjon med patogenet. (e) Infeksjonsforsøk med patogenet som bærer aHL-genet, resulterer i at aHL-kanaler lekker næringsstoffer ut av vertscellene etter infeksjon, som beskrevet i figur 4. Den infiserte dataserien representerer verten uten inokulering og den inokulerte dataserien representerer prøver med vert inkubert med inokulasjonsoligoer, og dermed ikke mottakelig for fusjon med patogenet. Feilfelt på alle paneler indikerer SEM, n=3. Fluorescensverdier i paneler (c−e) er normalisert til den blå fluorescensen til membranfargestoffet som brukes for å normalisere resultatene til konsentrasjonen av vertscellene. Noen data vist i denne figuren er eksperimenter med oppsett identisk med eksperimentene vist i tidligere figurer (som angitt i hver bildetekst). Disse eksperimentene ble gjentatt for denne figuren for å produsere data ved å bruke samme batch av TxTl for direkte sammenligning av resultatene, og eliminere batch-til-batch variabilitet av TxTl-preparater.
Inokulering av syntetiske celler forhindrer infeksjon.
I det ovenfor beskrevne eksemplet demonstrerte vi at verten forsvarte seg mot påvirkningen av et patogens genom ved å uttrykke et ekstra protein. Deretter spurte vi om det er mulig å modellere et scenario, der noen inngrep gjør en tidligere mottakelig vert immun mot infeksjon i utgangspunktet. Vi kalte det en inokulasjonsmodell. Selv om vi erkjenner at dette er langt fra en perfekt analogi, er aspektet vi fokuserte på at den syntetiske vertscellen ikke bruker noen ressurser på å generere immunitet. I vår immuniseringsmodell designet vi en behandling som gjør den syntetiske vertscellen som er mottakelig for infeksjon til celler som ikke kan smelte sammen med et patogen. Det syntetiske cellefusjonssystemet som brukes gjennom denne artikkelen, er avhengig av enkeltstrengede DNA-merker for å indusere liposommembranfusjon. For å inokulere mot fusjon med et patogen, inkuberte vi cellene med DNA-oligonukleotid komplementært til fusjonsoligoen på overflaten av cellene (Figur 6a). Først trengte vi å bekrefte at inokulering ved inkubasjon med komplementær oligo virker for å avskaffe fusjon. I proof-of-princip-eksperimentene ble to populasjoner av liposomer forberedt: en populasjon hadde TxTl med et plasmid som koder for GFP under kontroll av T7-promotoren og den andre populasjonen hadde TxTl og T7 RNA-polymerase, men ingen plasmid. Etter fusjonen av disse to populasjonene, ble GFP-plasmidet blandet med T7 RNA-polymerase og induserte GFP-ekspresjon. Hvis de to populasjonene hadde enkeltstrengede og komplementære fusjonsmerker, skjedde fusjon og GFP-fluorescens ble oppdaget. Hvis en eller begge populasjoner ble inkubert med et oligonukleotid komplementært til fusjonsmerket, skjedde ikke liposomfusjonen og GFP ble ikke uttrykt (figur 6b). Etter å ha etablert inokuleringssystemet, fortsatte vi med å introdusere inokulering for å beskytte vertssyntetiske celler i tre av infeksjonsscenariene beskrevet tidligere i dette arbeidet. Først brukte vi parasittscenarioet beskrevet i figur 2. Vertscellene, som inneholdt et GFP-genom, ble inokulert med en oligo komplementær til fusjonsmerket på overflaten av verten, og verten ble blandet med mCherry-parasitten. Vi blandet verten med parasitten i forskjellige forhold. Under alle infeksjonsforhold var parasitten mCherry-fluorescens uoppdagelig hvis verten ble inokulert og GFP-fluorescensen til den inokulerte verten ikke avtok. Kontrolleksperimentene med den ikke-inokulerte verten viste en reduksjon i vertens GFP-ekspresjon og en økning i parasitt-mCherry-signalet, som forventet (figur 6c). Deretter brukte vi inokuleringssystemet på tilfellet med en vert infisert med et patogen som bærer et genomkodende MunI-restriksjonsenzym som er i stand til å fordøye vertens GFP-genom, som i eksperimenter vist i figur 3. Den inokulerte verten viste ingen reduksjon i GFP-fluorescens etter blanding med økende mengder av patogenet, mens den ikke-inokulerte verten ble infisert og vertens GFP-fluorescens redusert proporsjonalt med den økende mengden patogen (Figur 6d). Inokulering var også effektiv mot aHL-patogenet. De inokulerte vertene viste ingen reduksjon i fluorescens ved blanding med patogenet, mens den ikke-inokulerte vertens GFP-fluorescens avtok signifikant med infeksjon (figur 6e). I alle tilfeller var denne enkle inokuleringsprosedyren, inkubering av verten med en DNA-oligo komplementær til fusjonsoligoen på vertens overflate, tilstrekkelig til å oppheve evnen til de patogene syntetiske cellene til å infisere vertscellene. Derfor demonstrerte vi en enkel fysisk-kjemisk intervensjonsmodell som beskytter vertsceller mot infeksjon.

cistanche fordeler for menn styrker immunforsvaret
KONKLUSJONER
I denne artikkelen demonstrerer vi metoder for å bruke syntetiske minimale celler for å modellere parasitt- og patogene infeksjoner. Motivasjonen bak arbeidet vårt var todelt. Vi ønsket å konstruere kompleks, naturtro oppførsel til syntetiske celler, og lette målet om å konstruere syntetiske celler som ligner mer på naturlige levende celler. Vi ønsket også å dra nytte av det enkle og kontrollerbare syntetiske cellesystemet for å modellere de grunnleggende egenskapene til infeksjons-, inokulerings- og resistensprosesser. Mens syntetiske celler ikke utvikler seg eller replikerer seg selv, tillater dette systemet å studere infeksjonsdynamikk i en enkel og lett å analysere modell. Vi håper infeksjonsprinsippene beskrevet her vil bidra til å skape praktiske og anvendelige modeller for ulike patogener og infeksjonsreduksjon. Å studere dette forenklede syntetiske cellesystemet fremhevet de grunnleggende interaksjonene mellom parasitten og patogenet. Mens syntetiske celler ikke (ennå) er i live, og de ikke har evnen til å gjennomgå darwinistisk evolusjon, lar dette systemet oss observere patogen- og vertsinteraksjoner uten evne til å utvikle naturlig immunitet eller endre patogenets virulens. Mens vertsinfeksjonsdynamikken som presenteres her bruker bakteriebaserte syntetiske celler, er dette systemet ikke iboende begrenset til bakteriell TxTl. Det ville til og med vært mulig å forestille seg å bruke systemet som presenteres her for å modellere infeksjonsdynamikk i populasjoner som ligner naturlige økosystemer, og dra nytte av enkelheten som er iboende til syntetiske celler for å fullstendig kontrollere og studere interaksjonene mellom forskjellige medlemmer av store populasjoner.
REFERANSER
(1) Søknader. Mater. I dag 2016, 19, 516−532.
(2) Gaut, NJ; Adamala, KP Rekonstituering av naturlige celleelementer i syntetiske celler. Adv. Biol. 2021, 5, nr. 2000188.
(3) Tan, C.; Saurabh, S.; Bruchez, MP; Schwartz, R.; Leduc, P. Molecular Crowding former genuttrykk i syntetiske cellulære nanosystemer. Nat. Nanoteknologi. 2013, 8, 602-608.
(4) Glantz, ST; Berlew, EE; Chow, BY Syntetiske cellelignende membrangrensesnitt for å undersøke dynamiske protein-lipid-interaksjoner, 1. utg.; Elsevier Inc, 2019; Vol. 622.
(5) Zhao, J.; Zhang, Y.; Zhang, X.; Li, C.; Du, H.; Sønderskov, SM; Mu, W.; Dong, M.; Han, X. Etterligner cellulær metabolisme i kunstige celler: Universal molekyltransport over membranen gjennom vesikkelfusjon. Anal. Chem. 2022, 94, 3811-3818.
(6) Damiano, L.; Stano, P. Om "Life-Likeness" av syntetiske celler. Front. Bioeng. Bioteknologi. 2020, 8, nr. 953.
(7) Salehi-Reyhani, A.; Ces, O.; Elani, Y. Artificial Cell Mimics as Simplified Models for Study of Cell Biology. Exp. Biol. Med. 2017, 242, 1309–1317.
(8) Chakraborty, T.; Wegner, SV Celle-til-celle-signalering gjennom lys i kunstige cellesamfunn: Glødende rovdyr lokker byttedyr. ACS Nano 2021, 15, 9434−9444.
(9) Dupin, A.; Simmel, FC-signalering og differensiering i emulsjonsbaserte multi-kompartmentaliserte in vitro-genkretser. Nat. Chem. 2019, 11, 32–39.
(10) Toparlak, OD; Zasso, J.; Bridi, S.; Serra, MD; Macchi, P.; Conti, L.; Baudet, M.-L.; Mansy, SS kunstige celler driver nevral differensiering. Sci. Adv. 2020, 6, nr. eabb4920.
(11) Robinson, AO; Venero, OM; Adamala, KP Mot syntetisk liv: biomimetisk syntetisk cellekommunikasjon. Curr. Opin. Chem. Biol. 2021, 64, 165-173.
(12) Smith, JM; Chowdhry, R.; Booth, MJ kontrollerer syntetisk celle-cellekommunikasjon. Front. Mol. Biosci. 2022, 8, nr. 1321.
(13) Elani, Y. Interfacing Living and Synthetic Cells as an Emerging Frontier in Synthetic Biology. Angew. Chem., Int. Ed. 2021, 60, 5602– 5611.
(14) Rustad, M.; Eastlund, A.; Jardine, P.; Noireaux, V. Cellefri TXTL-syntese av infeksiøs bakteriofag T4 i en enkelt prøverørsreaksjon. Synth. Biol. 2018, 3, nr. ysy002.
(15) Marshall, R.; Noireaux, V. Kvantitativ modellering av transkripsjon og oversettelse av en All-E. coli cellefritt system. Sci. Rep. 2019, 9, nr. 11980.
(16) Garamella, J.; Marshall, R.; Rustad, M.; Noireaux, V. The All E. coli TX-TL Toolbox 2.0: A Platform for Cell-Free Synthetic Biology. ACS Synth. Biol. 2016, 5, 344–355.
(17) Deich, C.; Kontanter, B.; Sato, W.; Sharon, J.; Aufdembrink, L.; Gaut, NJ; Heili, J.; Stokes, K.; Engelhart, AE; Adamala, KP T7Max transkripsjonssystem. 2021, 1–28.
(18) Gaut, NJ; Gomez-Garcia, J.; Heili, JM; Kontanter, B.; Han, Q.; Engelhart, AE; Adamala, KP Programmerbar fusjon og differensiering av syntetiske minimale celler. ACS Synth. Biol. 2022, 11, 855− 866.
(19) Stengel, G.; Zahn, R.; Höök, F. DNA-indusert programmerbar fusjon av fosfolipidvesikler. J. Am. Chem. Soc. 2007, 129, 9584-9585.
(20) Chizzolini, F.; Forlin, M.; Yeh Martín, N.; Berloffa, G.; Cecchi, D.; Mansy, SS cellefri oversettelse er mer variabel enn transkripsjon. ACS Synth. Biol. 2017, 6, 638–647.
(21) Shin, J.; Noireaux, V. En E. coli-cellefri uttrykksverktøykasse: Anvendelse på syntetiske genkretsløp og kunstige celler. ACS Synth. Biol. 2012, 1, 29–41.
(22) Noireaux, V.; Libchaber, A. En vesikkelbioreaktor som et skritt mot en kunstig cellesamling. Proc. Natl. Acad. Sci. USA 2004, 101, 17669−17674.
(23) Adamala, KP; Martin-Alarcon, DA; Guthrie-Honea, KR; Boyden, ES Engineering Genetic Circuit Interactions in and between Synthetic Minimal Cells. Nat. Chem. 2017, 9, 431–439.
(24) Noireaux, V.; Bar-Ziv, R.; Godefroy, J.; Salman, H.; Libchaber, A. Mot en kunstig celle basert på genuttrykk i vesikler. Phys. Biol. 2005, 2, P1–P8.
(25) Krinsky, N.; Kaduri, M.; Zinger, A.; Shainsky-Roitman, J.; Goldfeder, M.; Benhar, I.; Hershkovitz, D.; Schroeder, A. Syntetiske celler syntetiserer terapeutiske proteiner inne i svulster. Adv. Healthcare Mater. 2018, 7, nr. 1701163.
(26) Kwon, YC; Jewett, MC High-Throughput-fremstillingsmetoder for råekstrakt for robust cellefri proteinsyntese. Sci. Rep. 2015, 5, nr. 8663.
(27) Sun, ZZ; Hayes, CA; Shin, J.; Caschera, F.; Murray, RM; Noireaux, V. Protokoller for implementering av et Escherichia Coli-basert TXTL-cellefritt uttrykkssystem for syntetisk biologi. J. Vis. Exp. 2013, 79, 1–15.
(28) Fujii, S.; Matsuura, T.; Sunami, T.; Nishikawa, T.; Kazuta, Y.; Yomo, T. Liposomskjerm for in vitro-seleksjon og utvikling av membranproteiner. Nat. Protoc. 2014, 9, 1578–1591.
(29) Löffler, PMG; Ries, O.; Rabe, A.; Okholm, AH; Thomsen, RP; Kjems, J.; Vogel, S. En DNA-programmert liposomfusjonskaskade. Angew. Chem., Int. Ed. 2017, 56, 13228−13231.