

Del 2: Koble nevrobiologien til utviklingsskade: Nevronal arborisering som regulator av dysfunksjon og potensielt terapeutisk mål
Mar 21, 2022
Hvis du vil ha mer information:ali.ma@wecistanche.com

Cistanche cistanche pulver helsemessige fordeler --neuroprotective effekt
4.3. Reguleringsmekanismer for Dendrite Arborisatin- og ryggformasjonen
Aktin og mikrotubul bunting og omorganisering er ryggraden i dendritisk arborisering, som støtter plasmamembranutvidelse. Actin ligger ved kantene av dendritter og driver utforskende aktivitet. Mikrotubuler danner midten av dendritiske akselen og konsoliderer denne nydannede akselen. Den dynamiske prosessen med forlengelse, forgrening, tilbaketrekning, samt orientering av grener, koordineres av mange signalmekanismer. Disse signalmekanismene er beskrevet i detalj av andre forfattere (se vurderinger fra [1–3]) og vil bli oppsummert her og i tabell 1.

Actin monomer polymerisering tillater dannelse av aktinfilamenter, stabilisert av mikrotubuler, som støtter axonal og dendritisk grenutvidelse fra innledende aktinplaster (gjennomgått av [1]). Actin- og mikrotubulinteraksjoner selv stabiliseres ved krysskobling av proteiner som mikrotubule-aktin krysskoblingsfaktor (MACF1; [94]). Mens mikrotubul invasjon av filipodia støtter grendannelse, demontering av mikrotubuler, regulert av allestedsnærværende protein ligase 3a (Ube3a, også kalt E6AP ubiquitin-protein ligase), bidrar like til tilbaketrekking av dendrittiske grener [95]. Den dynamiske utvidelsen og omorganiseringen av dendritiske grener er en svært aktivitetsavhengig prosess; Dette kan derfor hemmes av prosesser som påvirker ATP-produksjonen. Som et eksempel vil forstyrrelsen av Drp-avhengig fisjon hemme produksjonen av mitokondrier som er små nok til å bevege seg inn i dendrittiske grener og har vist seg å resultere i betydelig svikt i primærforgrening innen musen Purkinje-celler i cerebellum (in vivo og in vitro) [96]. Endringer i mikrotubule transportsystemer kan også påvirke forgreningen ved å endre kapasiteten for normal aktin- og mikrotubulorganisasjon (f.eks. Relatert er det en betydelig avhengighet av proteinoversettelse; Endringer i mRNA-transport og lokal proteinoversettelse påvirker derfor ogsåNeuronalarborisering (gjennomgått av [98]). Vær oppmerksom på at genet skjøre X mental retardasjon 1 (Fmr1, genet primært forstyrret i skjøre X syndrom) er en viktig regulator for lokal mRNA-oversettelse i dendritter (gjennomgått av [99]).
Tabell 1. Ekstrinsiske regulatorer for dendritisk arborisering og ryggradsutvikling.
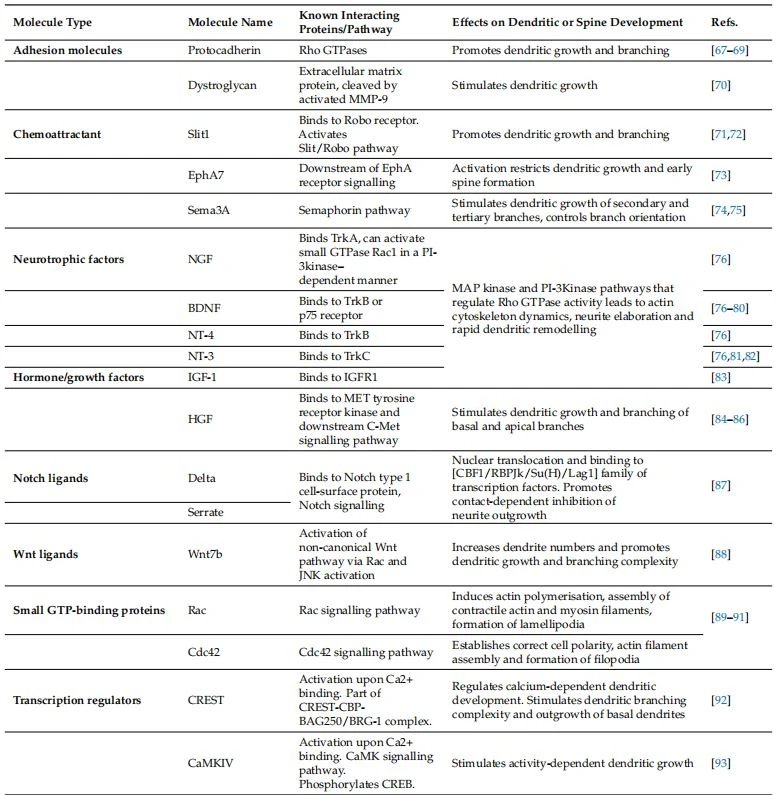
Forkortelser: Slit1 – Slit guidance ligand 1, Epah7 – ephrinreseptor A7, Sema3A – semaphorin 3A, NGF – nervevekstfaktor, BDNF – hjerneavledet nevrotrofisk faktor, NT – nevrotrofin, IGF1 – insulinlignende vekstfaktor 1, HGF1 – hepatocytt vekstfaktor 1, Rac – Rac-familien 1 liten GTPase 1, Cdc42 – celledelingssyklus 42, TrK – tyrosinkinasereseptor, CREST – kalsiumresponsiv transaktivator, CaMKIV – calmodulinavhengig proteinkinase IV, CREB – cAMP-response elementbindende protein.
Ekstrinsiske regulatorer for arborisering inkluderte kontaktavhengig signalering (celle-til-celle eller med den ekstracellulære matrisen), utskilte kjemoattractant- eller chemorepellentmolekyler og vekstfaktorer. Protocadherins er imidlertid en stor familie av molekyler som skal være involvert i kontaktavhengig regulering av dendritisk arborisering (og axonal forlengelse). Clustered protocadherins har spesielt blitt funnet å regulere arborization via signalering gjennom Rho GTPases (gjennomgått av [100]). En betinget knockout av y-protocadherins i musehjernen resulterer i forstyrret dendrittisk kompleksitet, selv om effekten av dette først og fremst er relativt sent i kortikale utvikling, fra P18 til P28 [67]. Denne relativt forsinkede aldersavhengige effekten er spesielt interessant ettersom protocadherins også har vist seg å regulere dendrit selvunngåelse innen arbors, et fenomen som er tydelig avgrenset av P12 [69]. Andre proteiner som regulerer celle-til-celle-kontakter som påvirker dendritisk arborisering inkluderer dystrogllykan, kontaktin 4 (CNTN4) og neurexin (NRXN)-neuroligin (NRLG) interaksjoner. Dystroglykan, et ekstracellulært matriseprotein, har vist seg å stimulere veksten av dendritiske arbours i mus hippocampalNeuronsin vitro på en måte som er avhengig av celledelingskontrollprotein 42 (Cdc42) GTPase [70]. CNTN4, et protein assosiert med schizofreni og oftest funnet å endre synaptisk funksjon, har også vist seg å regulere arborisering av hippocampalNeuronsi musen [101]. Men i dette tilfellet var effekten relativt liten, noe som muligens gjenspeiler CNTN4s primære rolle i synapseorganisasjon og derfor den sene fasen der den fungerer i utvikling. Neurexin og nevroligin er adhesjonsproteiner, som også hovedsakelig er forbundet med synaptisk dannelse på grunn av deres respektive tilstedeværelse på axonterminaler og dendritiske spines. Det har vist seg i musehjernen at interaksjoner mellom disse molekylene er viktige for den første forbigående stabiliseringen av synapser som krever aktivitet for å stabilisere seg permanent [102]. Blokkering av disse interaksjonene resulterer i redusert vekst av dendrittiske arbour samt mindre synapseformasjon [102].
Utskilte kjemoattractants som regulerer dendritisk arborisering inkluderer semaphorin 3A (Sema3A), Slit veiledning ligand 1 (Slit1) og ephrin A7 reseptor (EphA7). Sema3A, som er en chemorepellent for axoner, fungerer som et kjemoattractant for dendritter, som støtter vekst og orientering av den primære apikale dendritten [74] og er nødvendig for sekundær og tertiær forgrening [75]. Slit1 er en annen utskilt faktor, i dette tilfellet arbeider gjennom Robo reseptoren som stimulerer dendritisk vekst og forgrening [71]. Interessant nok ser EphA7 ut til å være et annet regulatorisk molekyl som har forskjellige effekter gjennom utviklingen, da EphA7-signalisering begrenser dendrittisk vekst og tidlig ryggradsdannelse under tidlig utvikling (før P10 i musen), men fremmer dendritisk ryggradsdannelse i senere utviklingsstadier [54].

Familien av nevrotrofiske faktorer, inkludert nervevekstfaktor (NGF), hjerne-avledet nevrotrop faktor (BDNF) og nevrotrofin-3 og -4 (NT-3, NT-4), som har flere roller i regulering av hjerneutvikling og funksjon, har også blitt identifisert som medvirkende tilNeuronalarborisering og synapsedannelse. Funksjonene til BDNF i denne sammenhengen har blitt mest utforsket og funnet å fremme dendritisk arborisering, hovedsakelig via aktivering av tropomyosinreseptorkinase (Trk) B-reseptoren (TrkB, gjennomgått i detalj av [56]). NT-3, som virker gjennom TrkC-reseptoren, har også vist seg å fremme arbour vekst [81]. Eldre BDNF og NT-3 har begge utviklingsspesifikke uttrykk og ser ut til å bidra primært til de senere stadiene av dendritisk ekspansjon. I en elegant studie viste Joo et al. (2014) at avtagende NT-3-signalering, avledet fra presynaptiskeNeuronspå en aktivitetsavhengig måte redusert forlengelse av dendritter fra Purkinje-nevroner til mushjernens pialoverflate mellom P7 og P14 (noe som resulterer i forstyrrelser som fortsetter på lang sikt) [81]. Imidlertid har andre forskere vist kapasiteten til hemming av NT-3 fra E21 til P7 i musen for å resultere i kortikale nevroner med reduserte apikale dendritter ved P7 [56], noe som tyder på at de aldersspesifikke effektene kan være forskjellige avhengig av hjerneregionen eller NT-3-kilden. BDNFs handlinger på dendrittisk utvikling er vanskeligere å oppsummere og kan være både konstituerende og aktivitetsavhengige [79]. Det er sannsynlig at et molekyl så pleiotropt som BDNF har betydelig oppdeling av sine signal- og signalveier. Til støtte for denne ideen har det nylig blitt vist, ved hjelp av inndelte kulturer av primære gnagernevroner, at BDNF fra postsynaptiske mål er i stand til å binde seg til TrkB-reseptorer på aksoner og simulere dendritisk arborisering via en distinkt og kompleks intracellulær signalvei [78]. Hepatocytt vekstfaktor (HGF) virker også gjennom sin tyrosin kinase reseptor (Met i dette tilfellet), er viktig for å stimulere mange utviklingsmessige hendelser, og har vist seg å fremme dendritisk vekst og forgrening [78,84]. Hepatocytt vekstfaktor (HGF) virker også gjennom sin tyrosin kinase reseptor (Met i dette tilfellet), er viktig stimulere mange utviklingsmessige hendelser, og har vist seg å fremme dendritisk vekst og forgrening [84]. Dette er av særlig interesse, ettersom HGF, som med mange andre vekstfaktorer, har vist seg å være redusert hos ASD-pasienter [86]. På samme måte har neureguliner, medlemmer av egf-familien (epidermal vekstfaktor), vært knyttet til endret synaptisk funksjon ved nevrologisk sykdom [86]. Som et eksempel har neuregulin 1 binding til EGF-reseptoren ErbB4 vist seg å endre dendrit utarbeidelse og synapsedannelse i glutamatergic og noen GABAergic primære hippocampalNeurons[103].

Selv om nedstrøms signalveier ikke er etablert for alle ekstrinsiske regulatorer for arborisering, er det tydeligvis flere vanlige og samhandlende veier som til slutt regulerer aktin- og mikrotubulorganisasjon. BDNF er for eksempel godt etablert for å endre dendritisk arborisering via PI3K/Akt, cAMP responsbindende protein (CREB) og andre tidlige responsgener som Arc og Rho-GTPases (gjennomgått i [79]). Ras- og Rho-GTPases, sammen med mange proteinkinaser, for eksempel glykogensyntase kinase- 3 (GSK-3) og PI3K og CREB/CREB-bindende protein (CBP) kan betraktes som hovedregulatorer for dendrittisk arborisering (gjennomgått i [2]). Disse molekylene har mange interaksjoner og kan direkte eller indirekte påvirke cytoskeletal omorganisering. For eksempel endrer aktive GSK-3 fosforylater MACF1 sine interaksjoner med mikrotubuler og f-aktin i de ledende kantene av utvidede nevritter [94]. Knockout eksperimenter i musen antyder at MACF1 er viktig gjennom hele utviklingsprosessen, med knockout som resulterer i økt antall primære dendritter, men en redusert dendrittisk lengde og unormal dendrittisk orientering når den endres på forskjellige stadier av utvikling in vitro, samt in vivo [94]. En alternativ metode for å modifisere disse veiene, og derfor dendritisk arborisering, er via transkripsjonsregulatorer og kromatin ombygging av proteiner. ARD1B er et eksempel på et kromatinreguleringsmolekyl som påvirker produksjonen av cfos og Arc (via fosforylering av CREB), og mange nedstrømsveier som bidrar til dendrittisk forgrening [55]. Effektene av å endre ARD1B-binding i musehjernen (redusert antall og lengde på apikale og basale dendritter, betydelig forstyrrelse i pialkontakt, redusert antall og økt umodenhet av dendrittiske spines) er komplekse, noe som gjenspeiler de kombinerte handlingene til disse veiene [55].
Mens mange av mekanismene beskrevet ovenfor er aktivitetsuavhengige, er en stor del av den dynamiske fasen av dendritisk omorganisering aktivitetsavhengig. Signalisering etter nevrotransmitterutløsning og binding er avgjørende for å stabilisere dendrittisk vekst og ryggrad og synapsedannelse, med mange av signalmolekylene og nedstrømsveiene beskrevet ovenfor viktig for den cytoskeletale omorganiseringen som er medført (gjennomgått i [2]). Sin et al. (2002) viste i det optiske tectum av Xenopus tadpoles at lysstimulering økte dendritisk arborisering av en mekanisme som involverte glutamatreseptorsignalering, noe som resulterte i redusert RhoA-aktivitet og økt Rac og Cdc42-signalisering [89]. Interessant nok viste en påfølgende studie på musen, ved hjelp av mørk oppdrett for å utforske aktivitetsavhengige effekter på dendritisk arborisering, lignende endringer, men av en sterkt redusert størrelse [89,104]. Dette tyder på at det kan være forskjeller i arter eller hjerneregioner i bidraget til aktivitetsavhengig kontroll eller arborisering. Forstyrrelser i prosessen med nevrotransmittersignalering er derfor helt klart en bidragsyter til nevrologisk lidelse. Transfeksjon av en ASD-spesifikk mutasjon av GRIN2 (koding av GluN2B NMDA-reseptorunderenheten) til en subpopulasjon av kultivertNeuronsi nærvær av wildtype GluN2B viser at selv små endringer i nærvær av viktige gener/proteiner kan påvirke dendrittisk arborisering [104]. I dette eksemplet var det ingen signifikant endring i primære nevroner, men en betydelig nedgang i forgrening, og en nedgang i lengden på grener på alle nivåer av det dendrittiske treet [104].
Til dags dato har forskning på glial involvering i vellykket ledninger i hjernen fokusert på effekter av astrocytter og mikroglia på synapsenivå, spesielt regulere dendrittisk ryggradsnummer og struktur og synapsedannelse, plastisitet og funksjon. Det er betydelige bevis på at astrocytter påvirker synapsedannelse gjennom en blanding av kontaktavhengige mekanismer og utskilte faktorer, inkludert trombospondin, kolesterol og ApoE, hevin, transformerende vekstfaktor (TFG)-β, og kondroitinsulfatproteoglykan (gjennomgått av [105,106]). Astrocytt–Neuronalkontakt, regulert av y-protocadherin, synes å være viktig for å legge til rette for tidlige faser av synapseformasjonen [68]. Utskilt BDNF synes å være en stor driver for mikroglial-påvirket dendritisk ryggrad dannelse, og det er også betydelige bevis på mikroglial fagocytose av pre-og post-synaptiske elementer som en del av normal beskjæring av overflødig synaptiske forbindelser, spesielt de med lav aktivitet (gjennomgått av [107]). Fagocytose er regulert av klassiske immunsignaleringssystemer, som kjemokiner (spesielt Cx3cr1) og komplement (inkludert C3 og C1q; [107–110]). Viktigst, men utover omfanget av denne gjennomgangen, er det også betydelige data som støtter en rolle av mikroglia og astrocytter i reguleringen av synaptisk plastisitet i den voksne hjernen (gjennomgått av [106,107]). Begrensede data er tilgjengelige om disse glialcellene bidrar til tidligere stadier av nevronutvikling som dendritisk arborisering, selv om Yang et al. (2012) [82] har vist astrocyttavhengig dendritisk arborisering i musehjernen. Interessant nok antydet denne studien at astrocytt knockout av Fmr1 var tilstrekkelig til å indusere den reduserte dendritiske arboriseringen, som følge av en overproduksjon av NT-3 [82]. Nyere data tyder også på at astrocytter kan regulereNeuronalarborisering gjennom lipoproteinreseptorklassen A gjentar domenet til lipoproteinreseptorrelatert protein 4 med lav tetthet (LRP4, [111]).
5. Potensielle beskyttende regulatoriske mekanismer og farmakoterapier
5.1. Genetiske risikofaktorer som endrer nevronal arborisering og forbinder med nevrodevelopmentale lidelser
Den høye frekvensen av dendrit og ryggradsavvik i nevrodevelopmentale lidelser skyldes en blanding av genetisk følsomhet og et endret miljø under utvikling (muligens reflekterer en bestemt skade i noen tilfeller). Mange av de genetiske risikofaktorene forbundet med nevrodevelopmentale lidelser (og nevrodegenerasjon) samhandler med molekylære regulatorer for dendrittisk utvikling skissert ovenfor og oppsummeres i tabell 2. Den klareste sammenhengen mellom genetikk og nevrodevelopmentale lidelser oppstår ved kromosomale slettinger/duplisering (f.eks. Metyl CpG bindingsprotein 2, MeCP2; 22q13 etc.); Men ettersom så mange gener påvirkes, kan nevrobiologien være vanskelig å unpick (gjennomgått i [112]). MeCP2 er en transkripsjonsregulator som har betydelige effekter av hjerneutvikling. Effektene av dette genet er dose- og kjønnsavhengige: Rett syndrom forekommer hos kvinner med en reduksjon i MeCP2 [112-114], og duplisering av genet resulterer i økt risiko for ASD og intellektuell funksjonshemming, hovedsakelig hos menn (gjennomgått i [113]). Når det gjelder arborisering, resulterer mangel på MeCP2 i reduserte dendrittiske grener, ryggtetthet og unormal ryggmorfologi [113]. Interessant nok har den proinflammatoriske cytokin interleukin-1β vist seg å samhandle med MeCP2 og påvirke dens funksjon (gjennomgått av [115]), en mulig mekanisme der genetiske og miljømessige faktorer kan samhandle for å øke risikoen for nevroutviklingsforstyrrelse.


