Døgnklokken regulerer rytmisk erytropoietinuttrykk i den murine nyren
Mar 11, 2022
For mer informasjon:ali.ma@wecistanche.com
Lina K. Sciesielsk et al
Cistanche tubulosa forhindrer nyresykdom, klikk her for å fåprodukter og Cistanches
Generering av døgnrytmer er celleautonom og er avhengig av en transkripsjons-/translasjonstilbakemeldingssløyfe kontrollert av en familie av sirkadiske klokketranskripsjonsfaktoraktivatorer inkludert CLOCK, BMAL1 og undertrykkere som CRY1 og CRY2. Målet med denne studien var å undersøke både den molekylære mekanismen og den hemopoietiske implikasjonen av sirkadian erytropoietin-uttrykk. Mutante mus med homozygot delesjon av kjernen circadian klokkegenene kryptokromer 1 og 2 (Cry-null) ble brukt for å belyse circadian erytropoietinregulering. Villtype kontrollmus viste en signifikant forskjell inyreerytropoietin-mRNA-ekspresjon mellom døgntidene 06 og 18. Parallelt er et betydelig høyere antall erytropoietin-produserende celler inyre(byRNAscope ) og signifikant høyere nivåer av sirkulerende erytropoietinprotein (ved ELISA) ble påvist døgntid 18. Slike endringer ble opphevet i Cry-null-mus og var uavhengig av oksygenspenning, oksygenmetning eller uttrykk for hypoksi-induserbar faktor 2alfa, noe som indikerer at cirkadisk erytropoietin-uttrykk er transkripsjonelt regulert av CRY1 og CRY2. Reportergenanalyser viste at CLOCK/BMAL1-heterodimeren aktiverer et E-boks-element i 5'-erytropoietin-promotoren. RNAscope in situ hybridisering bekreftet tilstedeværelsen av Bmal1 i erytropoietin-produserende celler inyre. Hos Cry-null-mus ble det funnet et betydelig redusert antall retikulocytter mens erytrocyttall og hematokrit var uendret. Således døgnkontinuerlig erytropoietinregulering i den normoksiske voksen murinenyreer transkripsjonelt kontrollert av master circadian aktivatorer CLOCK/BMAL1, og undertrykkere CRY1/CRY2. Dette funnet kan ha implikasjoner fornyrefysiologiog sykdom, laboratoriediagnostikk og anemiterapi.
SØKEORD:kronobiologi; døgnrytme; klokke; kryptokrom; erytropoietin; hematopoiesis; hypoksi-induserbar faktor
Translasjonsuttalelse Molekylære klokker i nesten alle celletyper driver gentranskripsjon i samarbeid med vevsspesifikke faktorer. Så langt, døgnrytme oscillerende mekanismer inyrehar ikke vært knyttet til biologien til erytropoietin (Epo). Her har det blitt belyst at døgnkontinuerlig Epo-uttrykk reguleres av masterklokkeproteiner (kryptokrom 1 og 2, Clock og Bmal1). Ettersom EPO virker særegent innenfor det komplekse regulatoriske nettverket av erytropoese, optimal bruk av rekombinant humant Epo hos pasienter mednyreInsuffisiens kan omfatte påføringen like før dets fysiologiske døgnmaksimum rundt midnatt.
Døgnrytmer i nefrologi er stort sett uutforskede, men svært relevante fordi forstyrrelser av skiftarbeid, livsstilsvalg og alderdom er assosiert med økt risiko for ulike sykdommer, inkludert kardiovaskulære lidelser.1–4Dyremodeller av forstyrrede døgnklokker gir det første beviset på den negative virkningen av dysregulering på det hematopoetiske systemet (f.eks. ved økt antall eldre erytrocytter).5,6
Når det gjelder erytropoiesis, er ikke bare cellulære effekter, men også rytmisiteten til dens primære regulator, erytropoietin (Epo), av spesiell interesse fordi idrettsutøvere gjentatte ganger har blitt anklaget for bloddoping med rekombinant human Epo (who) på grunn av tidsavhengige forskjeller i sirkulerende Epo-konsentrasjoner og hematologiske parametere.7,8 Daglige variasjoner i humant serum Epo (S-Epo)-nivåer ble først beskrevet i 1981 hos pasienter med kronisk lunge- og kullarbeideres luftveissykdom,9og deretter hos friske personer.10,11Til dags dato indikerer flere rapporter høye S-Epo-nivåer om natten (kl. 20.00 til 04.00) og lave S-Epo-nivåer tidlig om morgenen (kl. 04.00 til 08.00). Fasen og amplituden til S-Epo-svingninger, hvis de er tilstede i det hele tatt, varierer mellom menneskelige individer.9,10,12,13I gjennomsnitt endret S-Epo-nivåer seg omtrent 1.5-fold i forhold til minimumsnivået.14–22Denne døgnrytmen ble vist å være upåvirket av aldring,20 trening,16 eller høydeeksponering.17 I motsetning til dette er døgnsvingningen til S-Epo opphevet hos pasienter med kronisk obstruktiv lungesykdom komplisert av hypoksemi på dagtid, ved myelom med nyresvikt , og i myelodysplasi.15,21,23
I 2009 beskrev vi døgnkontinuerlig Epo-mRNA-uttrykk i den murine nyren i en storstilt analyse av promotørene til klokkekontrollerte gener, men var ikke i stand til å identifisere verken et distinkt genetisk element i EPO-genet eller en transaktiverende faktor som er ansvarlig for døgnsvingninger. 24 Nylig antydet en rottemodell for hemorragisk sjokk, i henhold til parallelle uttrykksmønstre, at klokkegenene (Bmal1 og Per2) var involvert i reguleringen av EPO-sekresjon under hypoksi/iskemi.25
Generering av døgnrytmer er celleautonom og er avhengig av en transkripsjon-oversettelse feedback-sløyfe kontrollert av en familie av døgnrytme-transkripsjonsfaktorer, inkludert CLOCK, BMAL1, PER1, PER2, CRY1 og CRY2.26 CLOCK/BMAL1-heterodimeren aktiverer transkriptionen. av døgnklokkegenene PER1/2 og CRY1/2 via binding til E-bokselementer i deres promotorer. PER- og CRY-proteiner gir imidlertid negativ tilbakemelding ved å hemme CLOCK/BMAL1-aktivitet, og dermed redusere deres eget uttrykk. Nettoresultatene fører til oscillasjonsmønstrene for døgngenuttrykk og rytmiske endringer i cellulær og organfysiologi.27
For å forstå implikasjonene av den biologiske klokken, har ulike typer mutante mus med forstyrrede eller ablaterte enkeltkjerne-klokketranskripsjonsfaktorer blitt studert så langt.28,29 Her har vi utnyttet Cry1–/–/Cry2–/– dobbelmutant mus (Cry-null), som mangler evnen til å uttrykke endogene døgnrytmer.26,30Kombinerte in vivo- og in vitro-data viser at Cry1/2 regulerer døgnkontinuerlig Epo-ekspresjon via CLOCK/BMAL1-indusert transkripsjon i den normoksiske nyren.

METODER
Dyreforsøk
Homozygote Cry1–/– /Cry2–/– dyr (Cry-null; hann og hunn; C57BL/6J-basert)31 og villtype (WT) kontroller ble avlet (For-schungseinrichtungen für Experimentelle Medizin Charité) og oppdrettet i 5 til 7 måneder. WT-musene kom fra oppdrett av Cry-null-kolonien.
Cry-null genotypen ble bekreftet ved polymerasekjedereaksjon (tilleggstabell S1). For medføring ble mus holdt i grupper og hadde mat og vann ad libitum i en 12-time:12-time lys/mørke-syklus i 14 dager. På dag 2 etter løslatelse i konstant mørke, ble dyrene ofret ved døgntid (CT) 06 eller 18 (n ¼ 13–15 for hver gruppe og tidspunkt). Vev (lever og nyre) ble raskt oppnådd og hurtigfrosset i flytende nitrogen. En undergruppe av mannlige og kvinnelige WT- og Cry-null-dyr ble analysert i detalj for kroppsvekt og differensialhemogram.
For blodgassanalyse ble dyr bedøvet (fentanyl, {{0}},075 mg/kg, midazolam, 1,5 mg/kg og medetomidin, 0,75 mg/kg), trakeotomisert, intubert og ventilert (tidevann). volum, 9 ml/kg, respirasjonsfrekvens, 160 min- 1, positivt endeekspirasjonstrykk, 2 cm H2O), som beskrevet.32 Et polyetylenkateter ble kirurgisk innført i venstre halspulsåre. Etter 5 minutter med stabilisering ble eksperimentet avsluttet gjennom rask utblåsning via halskateteret, blodgasser ble analysert (ABL-800; Radiometer; temperaturkontrollert), og nyrene ble skåret ut for post hoc-analyser.
Alle prosedyrer ble godkjent av Local Animal CareCommittee (T0307/08; G0100/17 med et tillegg fra januar 2021) og utført i samsvar med retningslinjene og forskriftene i den tyske dyrebeskyttelsesloven.
Utarbeidelse av RNA og kvantitativ polymerasekjedereaksjonsanalyse
Totalt RNA ble ekstrahert som beskrevet.33 Totalt 1000 ng totalt RNA ble reverstranskribert med SuperScript III revers transkriptase (Thermo Fisher; nr. 18080085) og tilfeldige heksamerer (Thermo Fisher; nr. SO142), i henhold til produsentens instruksjoner. Kvantitative polymerasekjedereaksjoner ble kjørt på en StepOnePlus-syklus (Life Technologies) med intronspennende primere eller TaqMan-analyser (tilleggstabell S2). Absolutt mRNA-kvantifisering ble oppnådd ved sammenligning med en standardkurve fra seriefortynninger av polymerasekjedereaksjonsmal.
Deteksjon av Epo mRNA-ekspresjon i nyrene ved RNAscope-teknikk
RNAscope-analysen ble utført i henhold til produsentens protokoller (ACD; teknisk merknad 320536). De 10-mm midnyre tverrgående kryosnittene ble farget med en C1-probe mot DapB (negativ kontroll; ACD; nr. 310043) eller Epo (ACD; nr. 315501). Hybridiseringstrinn ved bruk av Amp 4-6 og deteksjon av de røde signalene ble utelatt. To uavhengige, blindede forskere telte Epo-positive celler ved 200 opprinnelig forstørrelse, på 3 til 8 kryoseksjoner per dyr ved et Axioplan 2-bildesystem (Zeiss).
Representative Epo kvantifiseringsbilder og dobbel fluorescerende farging ble utført ved bruk av RNAscope Multiplex FluorescentDetection Reagent V2 Kit (ACD; nr. 323110), i henhold til produsentens protokoller. De 1,5-mm midnyre-tverrgående paraseksjonene ble farget med en C1-probe mot Bmal1 (ACD; nr. 438741) og en C2-probe mot Epo (ACD; nr. 315501-C2). Opaleye 520 (Akoya BioSciences; nr. FP1487001KT) ble brukt med theC1-sonden, og opalfargestoff 650 (Akoya BioSciences; nr. FP1496001KT) ble brukt med C2-sonden. Ved - 400 opprinnelig forstørrelse ble Epo-positive celler avbildet for Bmal1-kolokalisering ved et Eclipse Ti2-bildesystem (Nikon). 40,6-diamidino-2-fenylindol ble brukt som motfarging.
EPO serumkonsentrasjoner
Blodprøver fikk koagulere i 1 time ved romtemperatur før sentrifugering i 20 minutter ved 2000 - g. Serum ble fjernet og umiddelbart frosset ved –80 C inntil den enzymkoblede immunosorbentanalysen for Epo (Quantikine; R&D Systems; nr. MEP006) ble utført med ufortynnede prøver. Absorbansen ble lest med en iMARK Microplate Absorbance Reader (Bio-Rad) ved 450 nm, med bølgelengdekorreksjon ved 570 nm og en standardkurve for 4-parametertilpasning, som beskrevet tidligere.33
Antall blodceller
totale og differensierte celletall fra EDTA-antikoagulert blod ble målt av Synlab. veterinær Berlin med en ADVIA2120i(Siemens) automatisert celleteller for murint blod.
Reporter-genanalyser
Humane embryonale nyre 293-celler (DSMZ; nr. ACC305; passasjenummer 3–10; mykoplasma negativ) ble dyrket i Dulbeccos modifiserte Eagle's medium/Ham F12 (Biochrom; nr. FG4815) supplert med 10 prosent føtalt bovint serum (Mer. F7524). Celletransfeksjon ble utført i 12-brønnplater som inneholdt 1.67 - 105 celler/brønn. Hver brønn ble transfektert med 333 ng plasmid-DNA (1 av 10 av disse var vaniljekonstruksjon) og 1 ml Fugene 6-transfeksjonsreagens (Promega; nr. E2691) som beskrevet.34 Alle konstruksjoner som ble brukt er oppført i tilleggstabell S3. Celler ble lysert 48 timer etter transfeksjon med passiv lysisbuffer (Promega; nr. E1941). Luciferaseaktivitet ble bestemt med Beetle-Juice og Renilla-Juice-settene (begge pjk GmbH; henholdsvis nr. 102511/102531), ved et Lumat LB9501 luminometer. Hvert eksperiment ble utført i tekniske duplikater, og middelverdier ble brukt til beregninger.
Statistisk analyse
In all animals, the circadian gene expression was analyzed; 2 animals were excluded as they showed outlier values (>1.5-fold det interkvartile området) i 4 av 6 døgnuttrykte gener. Data ble analysert ved hjelp av IBM SPSS Statistics 27 og presenteres som individuelle prikker med medianen eller som søyler med gjennomsnitt og SD. Mann-Whitney U-test eller Kruskal-Wallis med Bonferroni som post hoc-test ble utført.
RESULTATER
Ablasjon av circadian Epo-uttrykk i Cry-null-mus
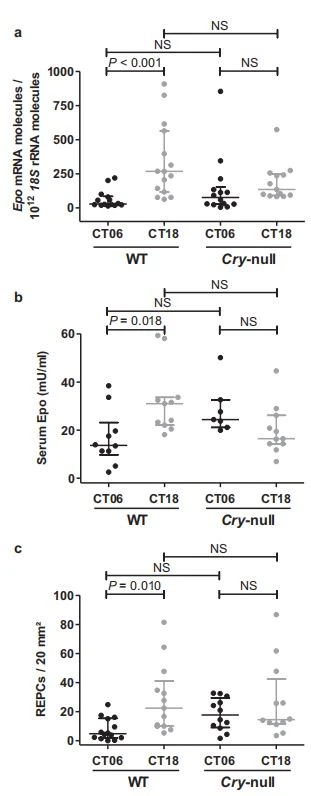
For å belyse den molekylære mekanismen for døgnkontinuerlig Epo-regulering, analyserte vi Epo mRNA og proteinuttrykk i WT og Cry-null mutante mus. I WT-nyre viste kanoniske klokkegener et tidsavhengig uttrykk, mens dette ble opphevet i Cry-null-mus, som forventet (tilleggsfigur S1). Vi rapporterte tidligere døgnsvingninger av Epo mRNA-ekspresjon over 24 timer for voksne WT murine nyrer.24 Med fokus nå på de minimale og maksimale verdiene, observerte vi en signifikant, w9-fold forskjell mellom CT06 (musesøvnperiode; forventet minimumsverdi). ) og CT18 (aktivitetsfase; forventet maksimum; figur 1a). I nyrene til Cry-null-mus ble det imidlertid ikke påvist noen signifikant forskjell i nyre-Epo-mRNA-uttrykk. Spesielt i Cry-null-mus var de absolutte mengdene av nyre-Epo-transkriptnivåer på begge tidspunkter mellom median WT Epo-mRNA-nivåer ved CT06 og CT18 (figur 1a). EPO mRNA i tilsvarende lever var under deteksjonsgrensen (data ikke vist).
Daglige endringer i Epo-serumkonsentrasjoner
For å estimere oversettelsen av døgnkontinuerlig Epo-mRNA-uttrykk til sirkulerende Epo-protein, analyserte vi serumprøver ved hjelp av enzymkoblet immunosorbentanalyse. Blodprøver ble tatt før organprøver. Serum Epo økte w2.3- ganger mellom CT06 og CT18 i WT-mus, men denne forskjellen ble opphevet i Cry-null-mus (Figur 1b). Spesielt var gjennomsnittlig gjennomsnittlig S-Epo-konsentrasjon over tid (CT06 og CT18) lik i WT- og Cry-null-mus (22 mU/ml [område, 3–59 mU/ml] vs. 21 mU/ml [område, 7 –50 mU/ml]).
Cirkadisk Epo-uttrykk i forhold til arterielle blodgassparametre og pulsoksymetri
For å undersøke om potensielle daglige endringer i oksygennivåer i blod og vev kunne forårsake døgnsvingninger av Epo-ekspresjon, ble arterielle blodprøver tatt og blodgassanalyser ble utført i bedøvde, trakeotomiserte og mekanisk ventilerte Cry-null- og WT-mus ved CT06 eller CT18, som tilsvarer henholdsvis laveste og høyeste døgnkontinuerlige Epo-mRNA-nivåer (Figur 1a). Vi oppdaget verken signifikante forskjeller i arteriell pH, partialtrykk av CO2 eller partialtrykk av O2 eller i standard baseoverskudd eller laktatkonsentrasjoner (figur 2a–e) mellom CT06 og CT18 eller WT og Cry-null mus. Oksygenmetningsnivåer, målt ved pulsoksymetri, viste heller ingen forskjeller (Figur 2f). Genekspresjon av EPO master regulator hypoksi-induserbar faktor (HIF) 2a var ikke forskjellig mellom CT06 og CT18, verken i WT eller Cry-null mus (figur 3). Under normoksiske forhold er altså ikke døgnkontinuerlig Epo-regulering forårsaket av endringer i oksygenspenning.
Cirkadisk av/på-bryter av Epo-uttrykk i nyre-Epo-produserende celler
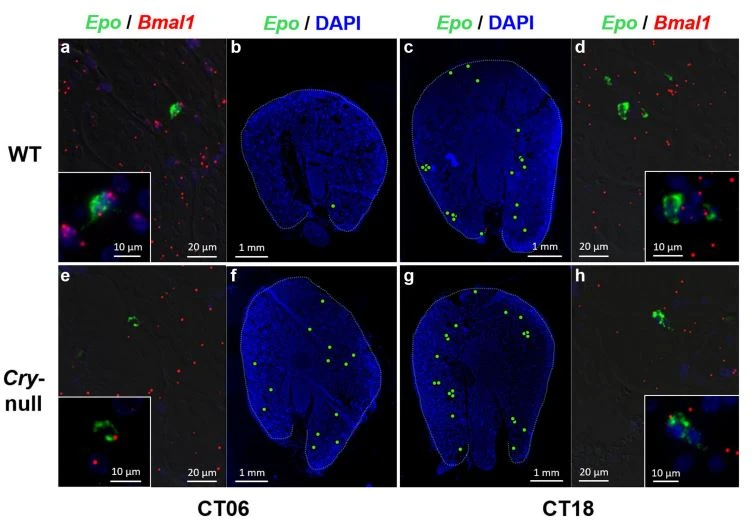
For å studere om døgnkontinuerlig Epo-mRNA-ekspresjon medieres ved å slå på ytterligere nyre-Epo-produserende celler (REPCs) eller utelukkende ved å øke Epo-ekspresjonen per celle, ble RNAscope in situ hybridisering brukt på tverrgående seksjoner av midtre nyrer (eksempel i tilleggsfigur S2). Hos WT-mus økte antallet REPCer signifikant mellom CT06 (median, 5; område, 0–25) og CT18 (median, 22; område, 5–82; 4.{{ 11}}fold; P ¼ 0,010). I kontrast viste Cry-null nyrer lignende antall REPCer ved CT06 (median, 18; område, 2–33) og CT18 (median, 15; område, 4–87; ikke signifikant; figur 1c). Vi vurderte at Cry-null-mus viser vekstbegrensning på grunn av svekket signalering av insulinlignende vekstfaktor 1 (IGF1), noe som resulterer i en kontinuerlig økende forskjell i kroppsvekt og organstørrelse mellom Cry-null- og WT-mus.30 Som vi brukte relativt unge dyr, den absolutte nyrevekten til Cry-null-mus var bare litt lavere enn i WT-mus (–12 prosent i Cry-null-mus), men det relative nyre-til-kroppsvektforholdet var ikke forskjellig (tilleggsfigur S3) . Dermed ser den døgnkontinuerlige økningen i Epo mRNA-ekspresjon ut til å være regulert av en påkobling av ytterligere REPC-er.
Aktivering av den minimale EPO-promoteren av CLOCK/BMAL1
For å identifisere de regulatoriske sekvensene som er ansvarlige for døgnkontinuerlig Epo-ekspresjon (Figur 4a), ble luciferase-reportergenanalyser utført i humane embryonale nyre 293-celler. Den humane embryonale nyre 293-cellelinjen ble valgt ikke for sin nyreopprinnelse, men for sin mangel på en endogen døgnklokke. Dermed kan den stimulerende effekten av CLOCK/BMAL1 testes i en lav, ikke-oscillerende CLOCK/BMAL1-bakgrunn. Overekspresjon av CLOCK/BMAL1 stimulerte betydelig aktiviteten til den minimale humane EPO-promotoren (figur 4b, I vs. II). Hvis E-boks-motivet (–36 til –31 bp i forhold til det transkripsjonelle startstedet) er mutert,35 blir denne effekten sløvet (Figur 4b, III).
For å studere om den observerte døgnreguleringen var celletypeavhengig, screenet vi flere EPO-uttrykkende cellelinjer for endogen klokkeaktivitet ved å overvåke Bmal1-promotormedierte oscillasjoner av en luciferase-reporter. De med en endogen rytme inkluderte humane hepatom-avledede HEP3B-celler, humane neuroblastom-avledede KELLY-celler og PDGFRbþ musenyreceller (tidligere EPO-uttrykkende musecellelinje FAIK1-10).36,37 Blant de 3 cellelinjene er det bare KELLY-celler viste EPO-promoter-drevne luciferase-oscillasjoner (tilleggsfigur S4A). Selv om PDGFRbþ-celler viste en sterk døgnrytme av Bmal1-promoteraktivitet, oppdaget vi ikke EPO-promotermedierte oscillasjoner, noe som tyder på en lavere amplitude av den EPO-promoterdrevne reporterkonstruksjonen (tilleggsfigur S4B).
Kolokalisering av Bmal1 og Epo i nyrene til Cry-null versus WT mus
For ytterligere å belyse (i) døgnreguleringen av nyre-Epo-produksjon ved å rekruttere nyre-Epo-produserende celler og (ii) kolokalisering av Bmal1- og Epo-ekspresjon, utførte vi RNAscope in situ-hybridisering. Epo og Bmal1 kolokaliserte, og mikroskopi på lav forstørrelse representerer forskjeller i rekrutteringen av REPCer (figur 5), som kvantifisert i figur 1c.

Hematologiske funn ved Cry1/Cry2-mangel For å vurdere (i) de hematopoietiske effektene av mangelen på døgnkontinuerlig Epo-ekspresjon og (ii) mulige andre hematologiske abnormiteter hos mus uten funksjonell klokke, ble blodcelletall analysert. Dagsforskjellene mellom Epo mRNA-ekspresjon og S-Epo-konsentrasjon ble ikke speilet av signifikante forskjeller i perifere retikulocytttellinger ved CT06 versus CT18 i WT-mus. Antall retikulocytter var imidlertid signifikant lavere ved både CT06 og CT18 i Cry-null-dyr sammenlignet med WT-mus (Figur 6a). Det var ingen signifikant forskjell i erytrocyttall eller hematokritverdier i WT versus Cry-null mus. Begge parametrene varierte imidlertid ikke mellom CT06 og CT18 i begge stammene (Figur 6b og c) og samsvarte ikke med det nedre perifere retikulocytttallet i Cry-null-mus (Figur 6a). For å teste om ernæringsmangler (f.eks. jern og folat) på grunn av svekket IGF1-signalering er involvert i avviket mellom redusert retikulocytt, men normalt erytrocyttall i Cry-null mus, ble størrelse og form av røde blodlegemer analysert, men viste ingen signifikante forskjeller mellom Cry-null- og WT-mus (tilleggsfigur S5).
Spesielt hadde median blodplatetall i Cry-null-mus en tendens til å være høyere enn i WT-mus, men blodplatetall var ikke signifikant forskjellig mellom CT06 og CT18 i begge stammer (Figur 6d). Derimot skilte antallet hvite blodlegemer (WBC) seg signifikant mellom CT06 og CT18 i WT, men ikke i Cry-null mus. Median WBC-tallet i Cry-null-mus var tilsvarende høyt, som i WT-mus ved CT06 (Figur 6e).

DISKUSJON
Her viser vi at døgnkontinuerlig Epo-uttrykk er regulert på transkripsjonsnivå. Analysen av Epo mRNA og S-Epo konsentrasjoner i arytmiske Cry1 og Cry2 mangelfulle mus omdirigerte søket vårt etter "Epos klokke" til deres nedstrøms måltranskripsjonsfaktorer CLOCK og BMAL1, som er undertrykt av CRY1 og CRY2.26 Ablation of Cry1/Cry2 ledninger til tap av rytmisk undertrykkelse av CLOCK/BMAL1, noe som resulterte i konstante Epo-transkripsjonsnivåer som var mellom mediannivåene ved CT06 og CT18 i WT-mus (figur 1a). In situ hybridisering med RNAscope indikerer at døgnsvingningen oppnås ved å slå på Epo mRNA-ekspresjon i interstitielle celler (Figur 1c), og in situ hybridisering med RNAscope avslørte også uttrykket av Bmal1 i REPC-er (Figur 5).
Enda viktigere er at de betydelig høyere S-Epo-nivåene ved CT18 bekrefter at den sirkadiske, transkripsjonelle Epo-reguleringen oversetter seg til døgnsvingninger av sirkulerende Epo-protein under normoksiske forhold (Figur 1b). Det virkelige maksimum av S-Epo-nivåer forventes litt senere enn CT18 fordi de novo-syntese av EPO-protein krever w80 til 120 minutter,38 og døgntider ble valgt på grunnlag av maksimale Epo-mRNA-nivåer. 24 Vi fant at døgnkontinuerlig Epo-regulering sannsynligvis er mediert av transkripsjonell aktivering av et E-boks-motiv i 5' EPO-promoteren av CLOCK/BMAL1 (figur 4 og tilleggsfigur S4), som er i samsvar med den beskrevne positive korrelasjonen mellom BMAL1-protein og S-Epo-nivåer i en rottemodell av akutt blødning.25
Det er bevis for en toveis regulering mellom CLOCK/BMAL1 og HIF-veiene gjennom direkte protein-protein-interaksjon.39,40Oppregulering av HIF2a, hovedaktivatoren til EPO-promotoren,41,42 resulterte i endrede ekspresjonsnivåer av klokkegener i humane hepatomceller.43 Videre dimeriserer BMAL1 med HIF1a- og HIF2a-proteiner,44,45,og døgnkontrollen av HIF-aktivitet er regulert på en vevsspesifikk måte.39 Hos mus, eksponert for akutt hypoksi (4 timer ved 6 prosent vs. 21 prosent O2), ble EPO mRNA overdreven økt, men viste ikke lenger døgnforskjeller .46 Dermed er normoksiske forhold sannsynligvis mest hensiktsmessige for å dissekere den molekylære mekanismen til døgnrytme Epo-regulering. Hos gnagere er det imidlertid rapportert om daglige endringer i oksygennivået i blod og vev.39,47 Hos rotter er det et lavt utvalg av rytmiske daglige endringer i nyreoksygenering på zD3 prosent, med en topp i mørket (¼ gnageraktivitet) .47 Slike forskjeller kunne ikke oppdages i våre eksperimenter, der kun bedøvede, trakeotomiserte og mekanisk ventilerte mus kunne studeres av dyreregulerende årsaker. Imidlertid indikerte analyse av arteriell pH, partialtrykk av CO2 og partialtrykk av O2, standard baseoverskudd eller laktat samt oksygenmetning ikke store forskjeller mellom WT- og Cry-null-mus ved begge CT-ene (Figur 2). Videre var Hif2a-transkripsjonsnivåene i nyrene også like under alle forhold (figur 3). Under normoksiske forhold ser således døgnkontinuerlig Epo-regulering ut til å være uavhengig av daglige endringer i oksygenspenning. Spørsmålet i hvilken grad høy høyde eller hypoksi (lav pO2) påvirker døgnsvingningen av Epo-produksjonen fortjener imidlertid ytterligere oppmerksomhet. Menneskelige S-Epo-nivåer er generelt høyere i stor høyde, mens fase og amplitude er uendret,17,22 og hos friske frivillige utsatt for normobarisk hypoksi, viser S-Epo-konsentrasjoner en uttalt svingning.48
Cirkadisk Epo-regulering er trolig mest aktuelt for klinisk nefrologi og hematologi, men også når det gjelder laboratoriediagnostikk, som blodprøver for doping med erytropoesestimulerende midler. For evaluering av sirkulerende Epo-konsentrasjoner i dopinganalyser, må tidspunktet på døgnet (ekstern tid) ved innsamling av blodet og kronotypen til personen (intern tid) vurderes.49,50
I erytropoese er utbruddsdannende enheter – erytroid de første avstamningsspesifikke cellene, etterfulgt av kolonidannende enheter – erytroid, som viser rikelig ekspresjon av Epo-reseptor. Etter 2 dager i kultur med Epo, produserer murine kolonidannende enheter – erytroider erytroblastkolonier. Når stadiet med ortokromatiske erytroblaster er nådd etter 7 dager, ekstruderer cellene kjernene sine til retikulocytter som mangler Epo-reseptoruttrykk.51 Med tanke på tiden det tar for de kolonidannende enhetene – erytroiden å modnes til retikulocytter eller til og med fullt modne erytrocytter, er sannsynligvis ikke overraskende at ingen forskjeller ble observert mellom CT06 og CT18 i WT-mus (figur 6a–c). Spesielt var det totale retikulocytttallet betydelig høyere i WT enn i Cry-null-mus (Figur 6a), noe som tyder på at differensiering til retikulocytter er svekket i Cry-null-mus. Tidligere data indikerer at tidlige erytroide stamceller også viser et døgnmønster for DNA-syntese. In vivo-administrasjon av rhEpo øker døgnrytmen til erytroide kolonitall.52 Lavere retikulocyttall, til tross for relativt høye totale S-Epo-konsentrasjoner i Cry-null-musene, kan være et resultat av avskaffelse av døgn-DNA-syntese på nivået av erytroide progenitorer. En slik konstellasjon av høy S-Epo og redusert erytropoese har blitt observert hos mus med genetisk ablasjon av pinealmelatoninproduksjon (C3H/HeN-mus som mangler en hastighetsbegrensende N-acetyltransferase),53 som argumenterer for iboende døgnaktiviteter på den erytroide stamfadercellen nivå.
Spesielt viser Cry-null-mus en ca. 80 prosent reduksjon i IGF1-nivåer, noe som fører til redusert IGF1-signalering og en 30 prosent reduksjon av kroppsvekt og organstørrelse sammenlignet med WT, en effekt som forverrer seg over et helt liv.30 Selv om dyr brukes i vår eksperimentene var relativt unge (median alder,21–29 uker), viste de en moderat effekt på total kroppsvekt og absolutt nyrevekt hos Cry-null-mus, men nyre-til-kroppsvektforholdet var normalt (tilleggsfigur S3). Sistnevnte faktum kan være relevant for kapasiteten til Epo-proteinsyntese (Figur 1b).
Analyser av røde blodcellers størrelse eller form (MCV, MCH og MCHC; tilleggsfigur S5) antydet imidlertid ikke ernæringsmangler (f.eks. jern og folat) som en forklaring på avviket mellom redusert retikulocytt- og normale erytrocyttall i Cry- nullmus (figur 6a og b). Spesielt Epo- og IGF1-signalering synkroniserer celleproliferasjon og -differensiering under erytropoese via interaksjon med GATA-1/vennen til GATA-1-transkripsjonskomplekset.54 I denne prosessen aktiverer Epo den cellulære AKT-banen og øker derved. affiniteten til GATA-1, den viktigste transkripsjonsregulatoren av erytropoesen, til dens kofaktorvenn av GATA-1. Denne mekanismen hemmes imidlertid hvis IGF1-signalering oppheves.54 Dermed kan en positiv effekt av relativt høyere Epo i Cry-null-mus på rødcelledifferensiering oppveie den reduserte IGF1-aktiviteten i de relativt unge Cry-null-musene som er studert her.
Den generelle implikasjonen av fullstendig døgnrytmearytmisitet på hematopoiesis blir ytterligere belyst av vår analyse av blodplate- og WBC-tall. Tidligere resultater fra mus som uttrykker en dominant-negativ form av Clock (ClockD19/D19) indikerte at forstyrrelsen av ekspresjonen av trombopoietin (den primære regulatoren av megakaryopoiesis) og dens reseptor Mpl resulterer i økt antall modne marg-megakaryocytter og sirkulerende blodplatetall. 55 Den beskrevne signifikante døgnsvingningen av blodplatetall med på topp ved zeitgeber-tid (ZT) 20 i WT-mus, så vel som høyere blodplatetall ved ZT08 i ClockD19/D19-mus,55 som resulterte i mangel på døgnsvingning av blodplatetall, kunne ikke bekreftes i vår musemodell (figur 6d). Et annet viktig funn er tapet av forskjeller på tidspunktet for sirkulerende WBCs i Cry-null-mus i motsetning til WT-mus (Figur 6e), som er i samsvar med den rapporterte aktiviteten til CLOCK/BMAL1 på moden WBC-produksjon.56,57

For tolkningen av våre data, må forskjeller i dag-natt-aktiviteter hos mus og mennesker vurderes: Tiden CT06 hos mennesker tilsvarer omtrent midnatt (sovefase), mens CT18 omtrentlig tilsvarer middag (aktivitetsfase). Det motsatte er sant for nattaktive mus, men begge organismer viser det samme døgnkontinuerlige Epo-ekspresjonsmønsteret (lavt ved CT/ZT06, høyt ved CT/ZT18). Dette indikerer at ytterligere mekanismer (f.eks. metabolske faktorer) kan endre rytmene til Epo-uttrykk i begge organismer. Synkroniseringen mellom Epo-toppnivåer og Epo-reseptoruttrykk i tidlige erytroide stamceller (utbruddsdannende enheter – erytroide og til og med kolonidannende enheter – erytroide celler)52 antyder at pasienter som får rhEpo-behandling (f.eks. i sluttstadium av nyreanemi eller hematologiske lidelser) vil ha nytte av å etterligne normal døgnfysiologi ved å bruke hypo om natten. Hematopoietiske lidelser er ikke rapportert hos mennesker med CRY1 (Online Mendelian Inheritance in Man *601933) eller CRY2 (Online Mendelian Inheritance in Man *603732) mutasjoner med tap av funksjoner ennå. Kliniske rapporter assosierer CRY1-varianter primært med oppmerksomhetsunderskudd/hyperaktivitetsforstyrrelser, ofte ledsaget av søvnløshet, angst, depresjon eller forsinket søvnfaseforstyrrelse.58,59Dette fortjener videre undersøkelse fordi slike sykdommer kan forverres av anemi eller hematopoietiske lidelser.
Som konklusjon gir denne studien det første beviset på at døgnkontinuerlig Epo-uttrykk i den normoksiske voksne murine nyren reguleres på transkripsjonsnivå av CLOCK/BMAL1-mediert aktivering av et E-boks-element i 5'EPO-promotoren. Ettersom EPO opptrer særegent innenfor det komplekse regulatoriske nettverket av erytropoiesis, kan optimal bruk av repo hos pasienter med nyresvikt inkludere påføringen like før dets fysiologiske døgnmaksimum om natten.