

Reaktivering av Hippocampus-medierte minner under rekonsolidering for å forstyrre frykt, del 2
Feb 04, 2024
Deretter vurderte vi de langsiktige effektene av manipulasjonen vår. De ovennevnte funnene ble replikert med et lignende eksperimentelt design.
Utvilsomt er det en sterk sammenheng mellom langtidseffekter og hukommelse. På den ene siden kan langtidseffekter ha dype effekter på hukommelsen, og på den andre siden kan hukommelsen påvirke langtidseffektene våre.
Først og fremst gjenspeiles den langsiktige påvirkningen på hukommelsen hovedsakelig i to aspekter: den ene er påvirkningen på folks fysiologiske funksjoner, og den andre er påvirkningen på folks psykologiske tilstand.
Langtidseffekter kan påvirke fysiologien vår, for eksempel på områder som kosthold, søvn og trening. Hvis vi lever i et usunt miljø over lang tid, for eksempel ubalansert spising, dårlig søvnkvalitet, langvarig mangel på trening osv., vil disse langsiktige bivirkningene etterlate et visst minne i kroppen vår, og dermed påvirke hjernen vår. aktivitet og hukommelse.
Samtidig vil langsiktige effekter også påvirke vår mentale tilstand, som overdreven spenning, angst og stress, noe som vil skade hukommelsen vår.
Den langsiktige påvirkningen av hukommelsen er også veldig viktig. Et godt minne kan gi oss større klarhet, uavhengighet og selvtillit, og gi oss større kontroll over våre egne liv og langsiktige konsekvenser. Det kan hjelpe oss bedre å justere tilstanden vår, og dermed redusere stress, angst og andre uheldige faktorer, forbedre vår evne til å motstå frustrasjon og forbedre vår evne til å tilpasse oss.
Derfor bør vi være oppmerksomme på virkningen av langsiktige effekter på oss i vårt daglige liv, ta hensyn til helse og god mental tilstand, og dyrke sunne levevaner og god tilpasningsevne, for å gi full lek til hukommelsen og bedre takle langsiktige effekter, oppnå betydelig vekst i seg selv. Det kan sees at vi trenger å forbedre hukommelsen, og Cistanche deserticola kan forbedre hukommelsen betydelig, fordi Cistanche deserticola også kan regulere balansen av nevrotransmittere, som å øke nivåene av acetylkolin og vekstfaktorer. Disse stoffene er svært viktige for hukommelse og læring. I tillegg kan Cistanche deserticola også forbedre blodstrømmen og fremme oksygentilførsel, noe som kan sikre at hjernen får tilstrekkelig med næringsstoffer og energi, og dermed forbedre hjernens vitalitet og utholdenhet.

Klikk vet måter å forbedre hjernefunksjonen på
Men i stedet for å gi mus en gjenopprettingstest etter umiddelbar sjokk, lot vi musene stå uforstyrret i hjemmeburet deres i 2 uker etter utryddelsen, og deretter ga vi dem en test for spontan bedring (fig. 1n).
Tjuefire timer etter fryktkondisjonering (fig. 1o), under tilbakekalling, frøs både positive og nøytral-ChR2-grupper mindre i siste halvdel av økten sammenlignet med eYFP-kontroller (fig. 1p). Vi så ingen gruppeforskjeller under utryddelse (fig. 1q og tilleggsfig. 1c).
I samsvar med effekter sett under tilbakekalling, avslørte den spontane gjenopprettingstesten at både positive og nøytrale ChR2-mus frøs mindre sammenlignet med eYFP-kontroller og sammenlignet med negativ-Chr2-gruppen som demonstrerte at manipulasjonen vår ga varige effekter på prosesser for gjenfinning av fryktminne, tydelig to uker etter utryddelse (fig. 1r, s).
Viktigere, vi viste reduksjoner i frysing observert ettermerking og stimulering av et positivt minne, kan ikke bare tilskrives den virale injeksjonen eller lysstimulering alene. Spesifikt fant vi ut at reaktivering av et merket positivt minne (eksponering av kvinner) (Supplerende Fig. 3a), etter at mus ble FC for å vise økt postsjokkfrysing (Supplerende Fig. 3b, c), resulterte i mindre frysing kun ChR2-mus som mottok laserstimulering .
Dette var sammenlignet med ChR2-mus som ikke mottok stimulering, eYFP-mus som fikk stimulering og ingen virus/ingen lasergruppe. Dette var sant under tilbakekalling (tilleggsfig. 3d), på den første dagen av utryddelsen, og under de første 3 minuttene av utryddelsen (tilleggsfig. 3e, f). Som forventet så vi ingen gruppeforskjeller under umiddelbar sjokk (Supplerende Fig. 3g), men så en signifikant reduksjon i frysing i ChR2-Laser On-gruppen sammenlignet med alle andre grupper ved gjeninnsetting (Supplerende Fig. 3h, I).
Dessuten var denne effekten bare til stede når mus mottok kunstig reaktivering av et merket minne i FC-konteksten (tilleggsfigur 4a). Deretter merket vi et positivt minne (eksponering av kvinner) og deretter FC-mus som viste postsjokkfrysing (Supplerende Fig. 4b).
Da dette minnet ble reaktivert i en ny kontekst og mus ble returnert til kondisjoneringskonteksten 24 timer senere, avtok ikke frysing i ChR2-gruppen under tilbakekalling (tilleggsfig. 4c).
Frysing forble lik eYFP-kontroller gjennom utryddelse og gjeninnsetting (tilleggsfigur 4d, e). Disse funnene gir bevis på at manipulasjonen vår skjer via rekonsolidering, da den er spesifikk for når mus opplever naturlig tilbakekalling av fryktminnet, som i dette tilfellet skyldes eksponering for kondisjoneringskonteksten.

Valens betyr noe: Kunstig reaktivering av en nøytral hjemmeburopplevelse under rekonsolidering er ikke tilstrekkelig til å forstyrre fryktminnet
Resultatene ovenfor illustrerer at hippocampus interferens som følge av reaktivering av positive eller nøytrale engrammer er mer effektiv for å redusere betinget frykt enn engrams assosiert med en negativ opplevelse.
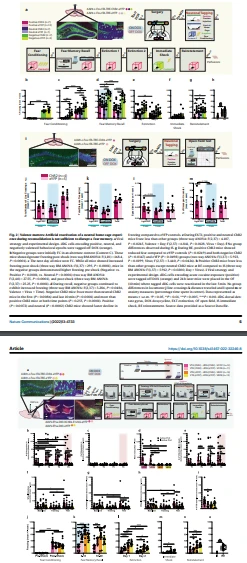
For ytterligere å måle viktigheten av valens, testet vi først om den nye opplevelsen av rene bur faktisk var "nøytral", snarere enn positiv eller negativ gitt at nye stimuli kan engasjere et komplekst sett av tilnærminger og unngå dopaminerge veier relatert til fremtredende, belønning og neofobi48 –52. Derfor, for den nøytrale komponenten i neste eksperiment, brukte vi en hjemmebur38-opplevelse i stedet, hvor mus ble stående uforstyrret.
For det andre spurte vi om en separat positiv opplevelse som ikke involverte kvinnelig eksponering var tilstrekkelig for å redusere frykt. Følgelig brukte vi akuttkokaineksponering53 som vår neste positive opplevelse. Til slutt, svekket om manglende evne til å redusere frysing via stimulering av et negativt gram under tilbakekalling av fryktminne var et resultat av at minnene overlappet.
For å teste dette, merket vi dDG-celler aktive når mus var FC i kontekst C som vår neste negative opplevelse, da dette interfereringsgrammet teoretisk sett ville være sammensatt av noen av de samme cellene som fryktminnet ervervet i kontekst A på grunn av generalisering. For å ta opp disse spørsmålene, igjen åpnet et tagging-vindu av DOX og merket et positivt, nøytralt eller negativt minne i thedDG (fig. 2a).
Mus som ble tilordnet negative grupper var i utgangspunktet FC incontext C som viste betydelig post-sjokkfrysing (fig. 2b). Dagen etter var de FC som før i kontekst A. Mus FC dagen før viste høyere frysing enn de andre gruppene før og etter sjokk (fig. 2c). Under tilbakekalling fortsatte negative ChR2-mus å vise mer frysing sammenlignet med andre ChR2-grupper (fig. 2d), som ble observert gjennom hele økten.
Imidlertid var det ingen sanntidsreduksjoner i frysing i noen av ChR2-gruppene, sammenlignet med eYFP-motparter i noen del av tilbakekallingsøkten (fig. 2d). Ingen gruppeforskjeller ble observert under ekstinksjon (fig. 2e og tilleggsfig. 1d) eller umiddelbar sjokk (fig. 2f).
Optisk stimulering av homecage-minnet var ikke tilstrekkelig til å konkurrere med fryktminnet, gitt at vi under gjeninnsetting observerte at bare positive ChR2-mus viste mindre frysing sammenlignet med eYFP-kontroller og de negative gruppene (fig. 2g). Negative ChR2-mus viste lik frysing som kontroller (fig. 2g, h).
Disse resultatene bekrefter våre tidligere funn som viser at optisk stimulering av et konkurrerende positivt minne, men ikke et nøytralt eller negativt minne, er tilstrekkelig til å forstyrre rekonsolidering av frykt.
Reduksjonen i frysing som er observert skyldes ikke økt bevegelse
I en egen kohort av mus ble dDG-celler involvert i koding av en akuttkokaineksponering merket av DOX (fig. 2i). Neste dag, for å vurdere om aktivering av et kokain-engram ville indusere hyperlokomotorisk aktivitet, testet vi mus i det åpne feltet hvor vi reaktiverte kokain-engrammet i de siste 5 minuttene av 10-minutters testen.
Vi fant ingen gruppeforskjeller i det totale antallet linjekryssinger (fig. 2j), tilbakelagt distanse (fig. 2k) eller hastighet (fig. 2l) som tyder på at nedgang i frysing observert i forrige eksperiment ikke skyldtes økt bevegelse.

I tillegg avslørte tid brukt i sentrumsregionen noggruppeforskjeller (fig. 2m) som tyder på at kunstig aktivering av akokainrelatert minne verken er angstfremkallende eller angstdempende.
Mus vil utføre en operant respons for kunstig reaktivering av et positivt minne
Mens hippocampus er involvert i å behandle positive opplevelser, antas det å gjøre det i samspill med flere regioner involvert inneuromodulering, inkludert det ventrale tegmentale området (VTA).
VTA er en kritisk komponent i hjernens belønningssystem, og negative affektive tilstander (f.eks. angst) formidles av VTA-dysregulering. Det er godt etablert at intrakraniell selvstimulering (ICSS) av VTA er en kraftig givende operant atferd, der gnagere opprettholder levering av elektriske impulser som resulterer i frigjøring av dopamin54,55.
Denne prosedyren har tidligere blitt tilpasset56–61 for å inkorporere in vivooptogenetisk stimulering av dopaminerge nevroner i VTA. For å merke og reaktivere dDG-celler som er aktive under denne positive opplevelsen, uttrykte vi selektivt ChR2 i dopaminerge VTA-celler ved å bruke transgene mus som uttrykker Cre under kontroll av dopamintransportøren (DAT).
Vi injiserte våre virale vektorer AAV5-Ef1a-DIO-(hChR2-E123A)-eYFP og implanterte en optisk fiber ensidig i VTA. Vi injiserte også c-Fos-tTA-TRE-(ChR2)-eYFP og implanterte optiske fibre bilateralt rettet mot dDG (fig. 3a). Mus ble opprinnelig vant til operasjonskammeret og gitt tilgang til et hjul uten konsekvenser, noe som fungerte som et grunnlinjemål.
Dagen etter ble mus plassert tilbake i operantboksen, og to neseporter ble introdusert, en aktiv og en inaktiv. Nesestikk inn i den aktive porten produserte optogenetisk VTA-stimulering, mens nesestikk inn i den inaktive porten produserte ingen stimulering og fungerte som en diskriminerende kontroll. Mus ble gitt tre ICSS-treningsøkter og deretter tatt av DOX.
De ble brakt tilbake for en fjerde treningsøkt, der dDG-celler som reagerer på VTA-selvstimulering ble merket. Dagen etter ble tilgangen til neseportene begrenset, og hjulspinn ga optisk dDG-stimulering for å reaktivere VTA-selvstimuleringsengrammet. Dette ble gjort for å vurdere om mus ville utføre en operantrespons for en positiv (VTA-ChR2, dDG-ChR2) eller nøytral (VTA-eYFP,dDG-ChR2) erfaring sammenlignet med dDG-eYFP-kontroller (fig. 3a).
Hos mus injisert med ChR2 i VTA var nesestikkene i den aktive porten betydelig høyere enn den inaktive porten, og de økte på tvers av økter som demonstrerte musenes evne til å skille mellom porter og selvlevere optisk stimulering for belønning (fig. 3b–e). Ved å sammenligne hjulbaselinjemål med trening og test, fullførte mus injisert med ChR2 i VTA og dDG flere hjulrotasjoner, som ble holdt i bevegelse over lengre varighet og avstander (fig. 3f–h) og produserte flere stimuleringer (fig. 3i) sammenlignet med alle andre grupper.
Dette funnet viser at mus vil utføre en operant respons for å opprettholde den kunstige reaktiveringen av et positivt minne, spesielt minnet om VTA-selvstimulering. Mus viste ikke denne oppførselen for et minne om eksponering for operant boks i fravær av VTA-stimulering. Etter denne testen gjennomgikk mus den samme eksperimentelle protokollen som før der de var FC i kontekst. Der de demonstrerte post-sjokkfrysing (fig. 3j og tilleggsfig. 1e) og deretter gitt en fryktminnegjenkallingstest.
Reaktivering av VTA-selvstimuleringsengrammet (VCDC) under tilbakekalling redusert frysing gjennom økten (fig. 3k). Nivåene forble lave under utryddelsen (fig. 3l og tilleggsfig. 1e), umiddelbar sjokk (fig. 3m) og gjeninnsetting (fig. 3n).
Interessant nok, mellom de to dDG-eYFP-gruppene, viste gruppen som hadde mottatt VTA-stimulering tidligere (VCDE) en gunstig effekt av denne erfaringen ved å vise mellomliggende nivåer av frysing sammenlignet med VCDC-gruppen og de andre kontrollgruppene på EXT1 (fig. 3l), og fra umiddelbar sjokk for gjeninnsetting (fig. 3o). Sammen viser disse resultatene at interferens fra en givende opplevelse kan motvirke negative affektive tilstander.
Aktivering av tilfeldig merkede dDG-neuroner er også tilstrekkelig for å fremme rekonsolidering av frykt
Deretter spurte vi om kunstig reaktivering av et positivt minne, som involverer stimulering av et lite sett med nevroner (<10%)38, can update a fear memory during reconsolidation, could we circumvent the positive-valence prerequisite to achieve a similar effect if we activate a larger population of neurons not necessarily tied to memory?
I motsetning til tidligere eksperimenter, hvor vi brukte en cFos-induserbar taggingstrategi for å merke celler involvert i forskjellige opplevelser, brukte vi her avirus med en konstitutiv promoter (CaMKIIa) for å tilfeldig merke dDGneurons med ChR2 (fig. 4a).
Mus ble injisert med enten ufortynnet eller fortynnet virus for å merke henholdsvis en stor prosentandel eller fraksjon av dDG-celler. Mus demonstrerte post-sjokkfrysing etter å ha vært FC (fig. 4b og tilleggsfig. 1f).
Under tilbakekalling neste dag ble de merkede nevronene optisk stimulert. I løpet av første halvdel av økten så vi sanntidsnedgang i frysing i både ufortynnede og fortynnede ChR2-grupper, men i andre halvdel var det bare den ufortynnede gruppen som viste mindre frysing (fig. 4c).
Den ufortynnede ChR2-gruppen fortsatte å vise mindre frysing gjennom ekstinksjonen (EXT1 & EXT2) (Fig. 4d), og både ufortynnede og fortynnede ChR2-grupper frøs mindre enn eYFP-gruppene i løpet av de første 3 minuttene av EXT1 (Supplerende Fig. 1f).

Som forventet var det ingen gruppeforskjeller under umiddelbar sjokk (fig. 4e). Ved gjeninnsetting observerte vi redusert frysing i både ufortynnede og fortynnede ChR2-grupper sammenlignet med eYFP-kontroller (fig. 4f) og sammenlignet med umiddelbar sjokk (fig. 4g).
Effektene våre var større i den ufortynnede gruppen, noe som tyder på at rekonsolideringsbaserte prosesser potensielt kan aktiveres ved å aktivere ensembler som ikke er koblet til et engram med en bestemt valens hvis nok celler aktiveres. Denne minnemodulasjonsstrategien kan være beslektet med stimuleringsprotokoller som for tiden er godkjent for bruk hos mennesker62,63.
For more information:1950477648nn@gmail.com


